Introducción
La prevalencia de las enfermedades metabólicas ha ido aumentando peligrosamente a lo largo de los años y con ella, la necesidad de desarrollar tratamientos efectivos y medidas de prevención. La Organización Mundial de la Salud (OMS) considera la obesidad como una enfermedad crónica que puede prevenirse y cuya importancia radica en que es un factor de riesgo para desarrollar enfermedades crónicas no transmisibles como hipertensión arterial (HTA), diabetes tipo 2 (DT2), ateroesclerosis, coronariopatía, síndrome metabólico (SM), las cuales son importantes causas de morbimortalidad, disminución de la capacidad laboral, ausentismo laboral e invalidez; ello se traduce en costos elevados en salud pública, tanto para los individuos como para el estado y por lo tanto, disminución de la calidad de vida de estos y de la sociedad en conjunto (1).
El SM es una entidad clínica de etiología multifactorial, en la que intervienen diversos factores ambientales, genéticos y sociales. Este síndrome suele considerarse consecuencia directa de la obesidad y de la resistencia a la insulina (RI), puede ser prevenido al actuar oportunamente los factores de riesgo que predisponen al individuo a desarrollar la enfermedad.
La prevalencia y magnitud de los trastornos metabólicos asociados al sobrepeso se correlacionan directamente con el mayor desarrollo del tejido graso. En población infantil, se ha determinado que alrededor del 30% de la grasa corporal es un punto de corte crítico para el riesgo de presentar hipercolesterolemia, valores elevados de presión arterial e hiperinsulinismo, es decir, un indicador más de la existencia de SM. Tal riesgo es explicado fisiopatológicamente a partir de la mayor disponibilidad de ácidos grasos libres que generan un desbalance metabólico con aumento del estrés oxidativo y disrupción de los mecanismos de regulación hormonal (2).
La concentración de lípidos plasmáticos depende no sólo de la ingesta alimentaria, sino también de la síntesis y metabolismo de las lipoproteínas, que a su vez están condicionadas por la actividad de diversos productos de la expresión génica. Dada la importancia y la gran diversidad de las lipoproteínas que participan en el transporte y metabolismo de lípidos, las variaciones genéticas de los genes codificantes y/o reguladores de las lipoproteínas constituyen condicionantes genéticos que pueden ser asociados con la aparición de dislipidemias bien definidas (3) y en consecuencia, al desarrollo de enfermedades como la obesidad, RI y SM.
Los productos de la expresión de los genes PPARg2, FABP2 y ApoE, afectan el equilibrio de los carbohidratos y/o de los lípidos y presentan polimorfismos asociados a las manifestaciones fenotípicas diferentes desde el punto de vista bioquímico y clínico.
Los PPARs, (Peroxisome proliferator-activated receptors) son factores de transcripción activados por ligandos que pertenecen a la superfamilia de receptores nucleares. Se han identificado tres subtipos de PPARs (PPARsα, PPARsβδ y PPARsγ). Estos modifican la expresión de numerosos genes, entre los que se encuentran los reguladores del metabolismo de los lípidos, la homeostasis de glucosa, el control del ciclo celular, la inflamación y la respuesta inmune (4, 5).
Estudios epidemiológicos han sugerido la existencia de una asociación entre el polimorfismo Pro12Ala en el exón B2 del receptor PPARg2, C/G en el codón 12, con obesidad y otras alteraciones metabólicas relacionadas con el SM (6, 7), pero los resultados no han sido siempre concordantes en las diversas poblaciones estudiadas ni concluyentes con las hipótesis planteadas.
Por otra parte, la FABP2 (Proteína Enlazante de Ácidos Grasos Intestinal) está íntimamente ligada al metabolismo de los triglicéridos provenientes de la dieta, interviene en la absorción intestinal de las grasas, facilitando el ingreso de los ácidos grasos de cadena larga desde la luz intestinal al enterocito, para luego ser esterificados y formar triacilgliceroles que serán transportados en los quilomicrones (8, 9). Asimismo, tiene una participación directa en la modulación de la expresión de ciertos genes, entre ellos la superfamilia de los PPARs, ya que los ácidos grasos absorbidos actúan como señales de transducción en el núcleo de diversas células (9, 10, 11).
El gen de la FABP2 presenta varios polimorfismos, siendo el más estudiado el Ala54Thr, G/A en el codón 54 del exón 2, originando el cambio de un residuo de alanina por uno de treonina. Estudios han demostrado que esta variación aumenta al doble la afinidad de la FABP2 por los ácidos grasos de cadena larga y hace que se secreten ésteres de colesterol y triacilgliceroles a la circulación de manera más eficiente que la forma nativa (12); por lo que se ha asociado a niveles elevados de triglicéridos plasmáticos (12, 13, 14, 15), especialmente en individuos homocigotos para el alelo 54Thr, lo que se puede asociar con el desarrollo de hipertrigliceridemia y RI (12), aumentando el riesgo del individuo a desarrollar trastornos metabólicos como obesidad, DT2 y SM, trayendo consecuencias negativas para el individuo.
Finalmente, la Apolipoproteína E (ApoE), proteína de 299 residuos de aminoácidos, es uno de los componentes principales de los quilomicrones, lipoproteínas de muy baja densidad (VLDL) y las lipoproteínas de alta densidad (HDL). Su función principal es el aclaramiento hepático de quilomicrones y VLDL, mediante su papel de ligando de los receptores hepáticos y la regulación de la producción de VLDL, así como la lipólisis de las mismas por la lipoproteín lipasa (LPL). En condiciones normales, los quilomicrones y las VLDL son removidos rápidamente de la circulación por endocitosis mediada por receptores hepáticos (16).
El gen codificante de la Apo E es polimórfico con tres alelos codominantes: E2, E3 y E4 (ε2, ε3 y ε4), los cuales difieren en los aminoácidos 112 y 158 (16, 17). La combinación de los tres alelos da origen a seis genotipos posibles: E2/E2, E3/E2, E3/E3, E3/ E4, E4/E4, E4/E2 (16, 18). Estudios realizados en poblaciones caucásicas demostraron que la ApoE3 es la isoforma de la proteína más común, con una frecuencia de 77-81%; ApoE2, posee la frecuencia más baja (8%-11%) mientras que ApoE4 se presenta en 12-15% (17). Asimismo, los polimorfismos de ApoE se asocian con variaciones en los niveles plasmáticos de colesterol, los individuos con el alelo ε2 presentan niveles un 10% menores que el valor promedio, mientras que los que expresan el alelo ε4 exhiben valores de colesterol un 10% por encima del promedio de individuos homocigotos para ε3 (18).
Es por ello que conocer si existe una asociación de los polimorfismos de los genes de PPARγ2, FABP2 y ApoE con trastornos en los niveles de insulina y glucosa, dislipidemias, obesidad y SM, permitirá considerarlos como marcadores de riesgo de desarrollar enfermedades metabólicas, además de desarrollar planes para realizar un diagnóstico temprano, disminución del riesgo de aparición de las enfermedades y estrategias para mejorar el estilo de vida de los individuos que tienen predisposición genética.
Aunque los marcadores genéticos no se han introducido como herramienta diagnóstica de rutina en el laboratorio clínico, en algunos países se están utilizando para la estimación de gradientes fenotípicos de riesgo individual y a nivel de poblaciones, con la esperanza de intervenir oportunamente en el estilo de vida de las poblaciones de riesgo y alcanzar estrategias terapéuticas adecuadas para cada genotipo (3).
Este estudio tuvo como objetivo evaluar la relación entre los polimorfismos Pro12Ala del gen PPARg2, Ala54Thr del gen FABP2 y del gen de ApoE con factores de riesgos cardiometabólicos: insulina (RI), hipercolesterolemia e hipertrigliceridemia en habitantes del Sector Los Eucaliptos de La Parroquia San Juan.
materiales y métodos
Se estudiaron 308 individuos, 98 hombres y 210 mujeres, con edades comprendidas desde los 15 hasta los 87 años del sector “Los Eucaliptos” de la Parroquia San Juan, Municipio Libertador, bajo normas de bioética y con un consentimiento informado escrito y firmado por todos los participantes, el cual fue leído y explicado a cada uno de los individuos, y se aclararon las posibles dudas que surgieron al momento de su lectura. Las muestras fueron tomadas en el período comprendido entre Mayo de 2009 y Agosto de 2010, excluyéndose niños muy pequeños debido a la dificultad que representa para ellos realizar un ayuno de 12 horas para la determinación de glicemia, triglicéridos, colesterol y sus fracciones.
Los individuos fueron clasificados en: grupo de individuos hipercolesterolémicos (niveles plasmáticos de colesterol > 200 mg/dL), grupo de individuos hipertrigliceridémicos (valores de triglicéridos plasmáticos > 150 mg/dL), grupo de individuos resistentes a la insulina (HOMA > 2,6) y grupo de individuos aparentemente sanos o controles (que no presenten hipercolesterolemia, hipertrigliceridemia, hiperglicemia en ayunas ni RI), de acuerdo a los valores obtenidos para los niveles de colesterol total, triglicéridos y HOMA.
A cada uno se les tomó 10 mL de sangre venosa en ayunas (10-12 horas aproximadamente), colectada en un tubo sin anticoagulante y un tubo con anticoagulante (EDTA), con el fin de realizar determinaciones bioquímicas y estudios moleculares.
A partir del suero obtenido por centrifugación a 3.000 rpm durante 15 min se determinaron los niveles de glicemia, triglicéridos y colesterol total en un equipo analizador automático de química sanguínea (Modular Analytics de Roche Diagnostics) bajo el principio potenciométrico (ISE); además se realizó electroforesis de colesterol para la separación de las lipoproteínas en suero empleando un gel de agarosa (Kit SAS-I Nivel de Colesterol-12), en el equipo automatizado de Helena Laboratories SAS-1 y posterior integración de los datos obtenidos con el programa QuickScan 2000 Win. Finalmente se realizó la determinación de insulina en suero empleando la técnica de ELISA con el kit Insulin ELISA tipo sándwich de la casa DRG Diagnostics.
La resistencia a la insulina se determinó a través del modelo de registro homeostático (HOMA) propuesto por Matthews y col. (19), utilizando la siguiente fórmula para realizar su cálculo:
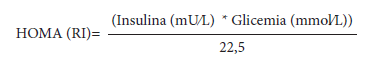
El diagnóstico resistencia a la insulina fue asignado a sujetos con un HOMA mayor a 2,6
Para la identificación de los genotipos de PPARγ2, FABP2 y ApoE se realizo extracción y purificación del ADN por el método de Bunce modificado (20) y se resuspendio en buffer TE. Se cuantificó la cantidad de ADN extraido, y se realizo reacción de PCR empleando el Termociclador modelo Lab Cycler de Senso Quest. El producto amplificado se evaluó mediante una electroforesis en gel de agarosa al 2%.
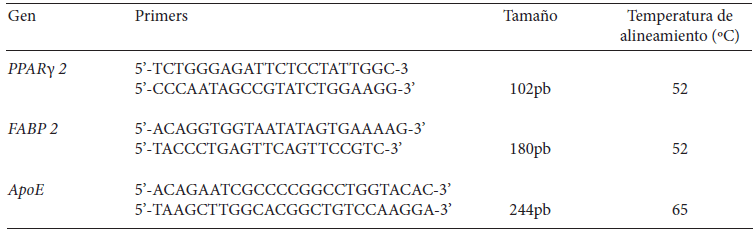
Posteriormente se cuantificó la cantidad y calidad del ADN extraído y se procedió a la amplificación de los genes estudiado mediante reacción de cadena polimerasa (PCR). La tabla 1 muestra los primers empleados, el tamaño del fragmento amplificado y la temperatura de alineamiento. Las condiciones generales de la PCR empleada fueron las siguientes: Buffer green 1X (Promega), 1,5 mM MgCl2, 0,2 mM dNTPs, 0,2 mM de cada primer, 0,25 U de la enzima Taq-Polimerasa (Promega) y agua tridestilada hasta completar un volumen final de 20mL. Se utilizaron 5 ml de ADN genómico (aproximadamente 100ng), para un volumen total de reacción de 25ml. La PCR fue realizada empleando el Termociclador modelo Lab Cycler de Senso Quest; la mezcla de reacción se sometió a una desnaturalización inicial a 94º C durante 5 minutos seguida de 35 ciclos compuestos por desnaturalización de 1 minuto a 94º C, alineamiento por 1 minuto a diferentes temperaturas (Tabla 1), extensión de 1 minuto a 72º C, seguidos de una extensión final de 10 minutos a 72º C.
Tabla 1. Primers y condiciones generales para la identificación de los polimorfismos estudiados
La calidad del producto de amplificación se verificó realizando una electroforesis, en la cual se agrega 8 ml del producto de PCR en el gel de agarosa al 2% coloreado con SYBR SAFE, se incluyó un ADN ladder de 25pb como marcador de peso molecular y un control negativo (mezcla de PCR + agua destilada en lugar del ADN genómico).
Para la identificación de los diferentes polimorfismos se utilizó la técnica de RFLP con la enzima de restricción HhaI, posteriormente se realiza electroforesis en un gel de poliacrilamida al 10% y finalmente tinción con nitrato de plata.
Para el análisis estadístico se recogieron los datos obtenidos en hojas de cálculo de Microsoft Excel 2010. Se determinaron las frecuencias alélicas y genotípicas por contaje directo. Se utilizó una prueba de chi-cuadrado con el programa MAXLIK, para evaluar el equilibrio de Hardy-Weinberg (H-W). Se utilizaron tablas de contingencia simple, evaluando la asociación entre las variables del estudio y los diferentes alelos de PPARγ2, FABP2 y ApoE mediante pruebas de ANOVA, regresiones, Chi2 y odds ratio, considerándose como significativo un valor p < 0,05.
Resultados
De los 308 pacientes, 64 se clasificaron como hipercolesterolémicos o HC (21%), 61 como hipertrigliceridémicos o HT (20%), 61 con resistencia a la insulina o RI (20%) y 122 como controles (39%).
Todos los grupos presentaron diferencias estadísticamente significativas en los valores de glicemia, colesterol total, HDL-c, LDL-c y triglicéridos con respecto al grupo control; mientras que únicamente los valores de insulina del grupo de resistentes a la insulina (RI) fueron estadísticamente significativos con respecto al grupo control, tal como se observa en la Tabla 2.
Tabla 2. Características fenotípicas de los sujetos en estudio por grupo.
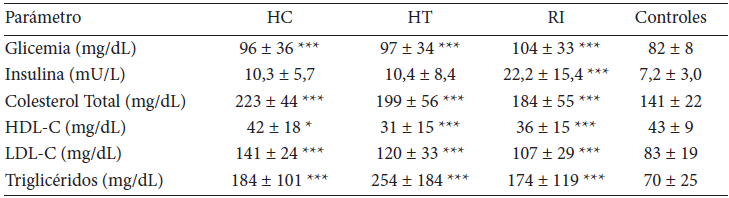
* p < 0,050 con respecto al grupo Control
** p < 0,005 con respecto al grupo Control
*** p < 0,001 con respecto al grupo Control
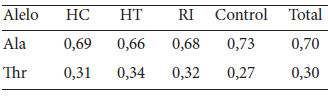
En la Tabla 3 se muestra la frecuencia alélica del gen PPARγ2, con respecto a este gen no se encontró una diferencia significativa entre éstas y los diferentes grupos estudiados. Asimismo, en la Tabla 4 se presentan las frecuencias de los alelos del gen de FABP2, mostrándose que no existe relación entre las mismas con los grupos en estudio pues no se encontró diferencia estadísticamente significativa con respecto al grupo control.
Tabla 3. Frecuencia de aparición de los alelos del gen
PPARγ2 en los grupos estudiados
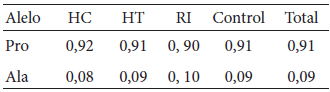
Tabla 4. Frecuencia de aparición de los alelos del gen
FABP2 en los grupos estudiados.
Por otro lado, la distribución alélica del gen de ApoE se muestra en la Tabla 5, observándose una distribución similar en la frecuencia alélica del polimorfismo e3 entre los grupos estudiados; sin embargo, la frecuencia del alelo e2 del grupo de los dislipidémicos y resistentes a la insulina es menor estadísticamente significativa con respecto al grupo control (presentándose con una frecuencia de aparición 4 veces superior a la de los tres restantes). Asimismo, la frecuencia de aparición del alelo e4 en el grupo de hipercolesterolémicos presenta una mayor diferencia significativa con respecto a los controles, observándose la primera el doble de la segunda. Esto corrobora el hecho que la presencia del alelo e2 confiere cierta protección al individuo a desarrollar dislipidemias y RI, mientras que el e4 condiciona al desarrollo de hipercolesterolemia.
Tabla 5. Frecuencia de aparición de los alelos del gen
ApoE en los grupos estudiados
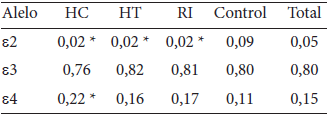
* p < 0,050 con respecto al grupo Control
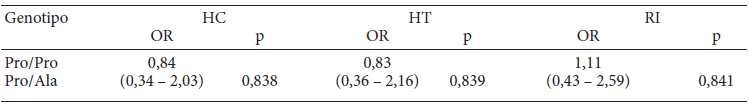
Al evaluar una posible asociación entre diferentes genotipos de PPARg2 con las alteraciones estudiadas, a través del odds ratio (OR), se estableció que los individuos con hipercolesterolémia, hipertrigliceridemia y RI con el polimorfismo Pro/Ala no presentan riesgo a desarrollar dichas enfermedades, como se puede observar en la Tabla 6.
Tabla 6. Asociación entre los diferentes genotipos de PPARg2 con la Hipercolesterolemia (HC), Hipertrigliceridemia (HT) y Resistencia a la Insulina (RI).
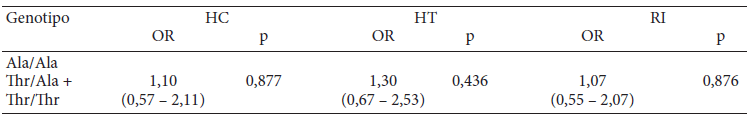
Al buscar una asociación entre los diferentes genotipos de FABP2 y dislipidemias como hipercolesterolemia, hipertrigliceridemia o RI (Tabla 7), se obtiene un OR cercano a 1,00 y un p valor > 0,05 para los tres grupos, indicando que no existe una probabilidad de desarrollar dichas patologías por el hecho de poseer al menos un alelo Thr.
Tabla 7. Asociación entre los diferentes genotipos de FABP2 con la Hipercolesterolemia, Hipertrigliceridemia y Resistencia a la Insulina.
Al comparar los niveles promedio de los analitos del perfil lipídico de los individuos que presentan cada uno de los diferentes genotipos de ApoE (Tabla 8), se observa que los valores de los portadores dele2 son estadísticamente diferentes a los de los portadores de e3 y e4, notándose que los primeros se encuentran claramente disminuidos en comparación con los otros grupos. Por otro lado, no se observó diferencia estadísticamente significativa al comparar los analitos del perfil lipídico en los portadores del genotipo e4 y los individuos homocigotos para el alelo e3. Por último, no se encontró relación entre los valores de glucosa e insulina y los diferentes polimorfismos del gen de ApoE.
Tabla 8. Valores de Colesterol Total y sus fracciones, Triglicéridos, Glucosa e Insulina de acuerdo a los genotipos de ApoE.
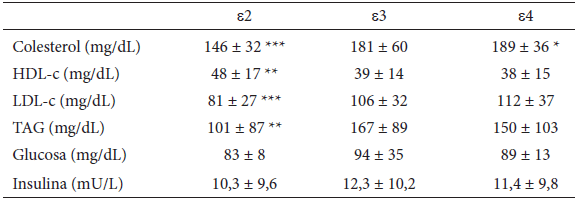
e2 (genotipo e3/ e2)
e3 (genotipo e3/ e3)
e4 (genotipos e4/ e4 y e3/e4)
* p < 0,05 con respecto al genotipo e3
** p < 0,005 con respecto al genotipo e3
*** p < 0,001 con respecto al genotipo e3
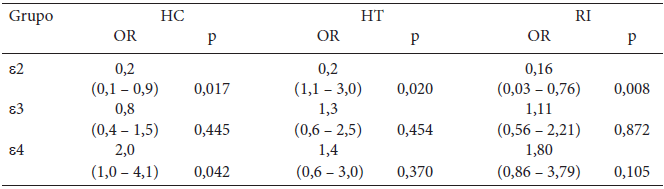
Los análisis estadísticos indican que sí existe una asociación entre el polimorfismo e4 del gen de ApoE con la hipercolesterolemia al obtenerse un OR mayor a 1,00 y un p valor < 0,05, lo que indica que hay una mayor probabilidad de desarrollar la patología al presentar dicho alelo en el genotipo, hecho que no ocurre con la hipertrigliceridemia o la RI, ya que se obtuvo un OR cercano a 1,00 y un p valor > 0,05 para ambos. En el caso del alelo e2, se obtuvo un OR < 1,00 junto con un p valor < 0,05 para las tres patologías, indicando que la presencia de dicho alelo podría actuar como un factor protector contra el desarrollo de dichas alteraciones (Tabla 9).
Tabla 9. Asociación entre los diferentes polimorfismos de ApoE con la Hipercolesterolemia, Hipertrigliceridemia y RI.
Discusión
Las enfermedades cardiovasculares son una de las principales causas de muerte en el mundo y se han vuelto cada vez más frecuentes en nuestro país. Según la OMS, éstas son responsables de 32 millones de eventos coronarios y accidentes cerebrovasculares, de los cuales entre el 40-70% son fatales en países desarrollados (1). Se estima que este problema es mucho mayor en países en vías de desarrollo y se considera que millones de personas presentan los factores de riesgo de desarrollar eventos coronarios.
Por otro lado, el síndrome metabólico (SM) se define como el conjunto de problemas de salud causados por la combinación de factores genéticos y factores asociados al estilo de vida, especialmente la sobrealimentación y la ausencia de actividad física. Este síndrome comprende un conjunto de signos y síntomas como la hipertensión arterial (HTA), la hipercolesterolemia, la obesidad abdominal y la resistencia a la insulina (RI), factor que se ve favorecido por la presencia de exceso de grasa corporal (abdominal) y la inactividad, estando algunos individuos predispuestos genéticamente a desarrollar algunas de estas alteraciones (21, 22, 23). Y como ya se ha mencionado, estas alteraciones metabólicas son factores de riesgo para la aparición de eventos cardiovasculares (1, 3).
En Venezuela, se ha reportado alrededor de un 30% de prevalencia de SM en los adultos (24, 25), mientras que en niños y adolescentes se ha encontrado hasta un 17% que reúnen criterios de presentar dicho síndrome (26).
En el presente trabajo se estudiaron 308 individuos del sector “Los Eucaliptos” de la Parroquia San Juan, Municipio Libertador, de los cuales 64 (21%) presentaban hipercolesterolemia, 61 (20%) hipertrigliceridemia, 61 (20%) individuos resistentes a la insulina y 122 (39%) fueron clasificados como controles al ser individuos aparentemente sanos (al no presentar ninguna de las alteraciones anteriormente mencionadas).
Al determinar la química sanguínea, se encontraron diferencias estadísticamente significativas entre los valores de glicemia, colesterol total y sus fracciones y triglicéridos entre los grupos en estudio y el grupo control, mientras que en el caso de la insulina, esta diferencia significativa sólo se observó entre el grupo con RI y el control (Tabla 3).
Varias investigaciones sobre estudios de familia y poblacionales muestran que el SM está influenciado por un fuerte componente genético, con una gran variabilidad entre diferentes poblaciones. De hecho, se ha demostrado que el 45% de los familiares de primer grado de pacientes con diabetes tipo 2, incluso con niveles de glucosa normales, presentan RI (27, 28). Dicha predisposición genética está modulada por factores ambientales relacionados con los hábitos de vida, tales como la dieta rica en calorías y grasas saturada y baja en fibras, sedentarismo, consumo excesivo de alcohol y tabaquismo.
Al mismo tiempo, se ha demostrado que el efecto de la interacción entre factores genéticos y ambientales es mayor que el de estos dos componentes por separado. La búsqueda de los efectos de interacciones entre genes y ambiente en estudios epidemiológicos es esencial para comprender las variaciones individuales y poblacionales de incidencia del SM, pero su interpretación requiere un planteamiento adecuado sobre las bases de un tamaño muestral apropiado y de una metodología bien definida (29).
Por lo anteriormente expuesto, es de vital importancia establecer lineamientos para la definición e identificación temprana de los factores de riesgo cardiometabólicos en sus etapas incipientes, para la intervención precoz que permitan la prevención de su progresión y la aparición de complicaciones (30). Por otro lado, los factores genéticos son importantes en el comportamiento de la grasa corporal en respuesta a alteraciones crónicas en el balance energético y una variedad de genes que regulan el metabolismo en los adipocitos pueden predisponer al sujeto al desarrollo de la obesidad, uno de los componentes del SM. Entre los genes relacionados con la obesidad destaca el gen PPARγ2. Éste es expresado preferencialmente en los adipocitos diferenciados y media la expresión de genes específicos de células adiposas, los cuales codifican proteínas directamente relacionadas con las vías lipogénicas. Entre los principales ligandos de este gen se encuentran los ácidos grasos poliinsaturados.
El polimorfismo Pro12Ala del gen PPARγ2, ha sido asociado con la reducción en el índice de masa corporal (IMC). Así, el cambio en el contenido de ácidos grasos poliinsaturados de la dieta podría aumentar la lipogénesis en sujetos que no presentan la variante en el gen PPARγ2. Diferentes estudios realizados con individuos obesos y de peso normal mostraron resultados diferentes al considerarse la relación entre la variante del gen PPARγ2 y la obesidad, puesto que algunos demuestran aumento significativo en el índice de masa corporal y en la circunferencia de la cintura en individuos con la variante Pro/Ala, mientras otros relatan que la variante está asociada con menor IMC (29, 32). Asimismo, polimorfismos en el gen PPARγ2 se han asociado con RI, hipertensión y alteración el metabolismo de lípidos (29).
En un estudio realizado en Venezuela, la frecuencia para el alelo Pro fue de 0,88 y para el Ala fue de 0,12. Cuando se clasificaron de acuerdo con la presencia o ausencia de SM, se observó que en los sujetos con SM la frecuencia del alelo Pro fue de 0,930 y para el Ala fue de 0,068; en los sujetos sin SM fue de 0,839 y 0,160 para el alelo Pro y Ala, respectivamente. También en dicho estudio se encontró una asociación entre el polimorfismo y los elementos que definen el SM, observándose que los individuos con y sin SM con el alelo Ala presentaron los niveles más bajos de triglicéridos y HDL-c más alto, cuando se los comparó con los sujetos con el alelo Pro, encontrándose que no hubo significancia estadística (33).
En otras investigaciones se reportó que en un grupo pequeño de pacientes caucásicos hay una asociación entre la presencia de la mutación y la diabetes tipo 2 (34); posterior a ello se demostró que dicha mutación está asociada con un aumento del IMC y de peso, con un incremento en la predisposición al desarrollo de obesidad; sin embargo, no hallaron asociación entre la presencia del polimorfismo y los niveles elevados de insulina y glucosa en dichos pacientes (6). Un hecho similar ocurre en el presente estudio, donde no existen diferencias significativas en cuanto a los niveles de lípidos sanguíneos, glucosa e insulina dependientes del genotipo presentado (Tabla 6). Por otro lado, recientemente se ha descrito una asociación entre el alelo Ala12 y una mejora en la sensibilidad a la insulina con tolerancia normal a la glucosa (35); además, otros estudios observaron que los adultos con IMC elevado que portan el genotipo Pro/Pro fueron más resistentes a la insulina que los sujetos que portan al menos un alelo Ala (36), contrastando con lo establecido en las investigaciones anteriores.
En nuestro estudio, la frecuencia para el alelo Pro fue de 0,91 y para el Ala fue de 0,09 (Tabla 3), no encontrándose una diferencia estadísticamente significativa en la distribución de los diferentes grupos en estudio. Esta frecuencia presenta un patrón ligeramente diferente a lo reportado con anterioridad en Venezuela (37) lo cual puede deberse a las diferencias poblacionales.
En base al presente estudio, una vez establecido el porcentaje de aparición de dicho genotipo en la población y la evaluación de una posible relación entre el polimorfismo Pro12Ala con la aparición de hipercolesterolemia, hipertrigliceridemia y RI mediante el índice odds ratio con su intervalo de confianza y Chi2, se encontró que no existe asociación la presencia del polimorfismo Pro12Ala y las dislipidemias o RI en la muestra estudiada (Tabla 7).
Otro de los genes candidatos al desarrollo de la obesidad y SM es el que codifica la FABP2, proteína expresada únicamente en el epitelio absortivo cilíndrico simple del intestino delgado (9) e influye directamente en los niveles de triglicéridos circulantes, al estar involucrada en el proceso de absorción de ácidos grasos a nivel intestinal y secreción de ésteres de colesterol y triglicéridos a la circulación (12), además de modular la expresión de otros genes, tales como los PPARs (9, 11).
El polimorfismo más estudiado del gen FABP2 es el Ala54Thr, generado debido a la sustitución, en la posición 54, de un residuo de alanina por uno de treonina, y ha sido asociado a un aumento de la afinidad de la proteína por los ácidos grasos de cadena larga y una secreción más eficiente de colesterol esterificado y triglicéridos a la circulación, además de un aumento en los niveles de triglicéridos tanto en ayunas como postprandiales, elementos que podrían llevar al individuo al desarrollo de hipertrigliceridemia y RI (12, 13, 14, 38).
Estudios con diferentes poblaciones indican que existen variaciones en la frecuencia de aparición de los alelos Ala y Thr, siendo de aproximadamente 0,73 y 0,27 respectivamente en egipcios, indios, europeos, argentinos y americanos afrodescendientes, al igual que el grupo control de este estudio (Tabla 4). Por otro lado, investigaciones realizadas en población asiática (Japón, China y Corea) arrojan resultados similares a los obtenidos para el total de los pacientes y los que presentan dislipidemias y RI del presente estudio, siendo de alrededor de 0,68 para el alelo Ala y 0,32 para el Thr (13, 15, 39, 40, 41). Es llamativo que los individuos con mayor frecuencia de aparición del alelo Thr sean los hipertrigliceridémicos y resistentes a la insulina (0,34 y 0,32 respectivamente) (Tabla 4), es decir, aquellos que se ven más afectados por un aumento en la afinidad de la proteína por los ácidos grasos de cadena larga y una mayor eficiencia en la secreción de triglicéridos y ésteres de colesterol a la circulación, aunque no hay una verdadera significancia en cuanto a la aparición de estos alelos en estos grupos, ni en la diferencia entre los niveles de lípidos sanguíneos, glucosa e insulina de acuerdo a los diferentes alelos.
Ante esta situación, se evaluó la posible relación entre el polimorfismo Ala54Thr y el desarrollo de RI o dislipidemias como la hipercolesterolemia e hipertrigliceridemia a través de análisis de Chi2 y el índice odds ratio junto con su intervalo de confianza, mas no se encontró relación alguna entre el polimorfismo y dichas patologías, ya que se obtiene un p valor > 0,05 y un OR muy cercano a 1,00 que se encuentra dentro del intervalo de confianza (Tabla 7). Estos resultados concuerdan con otras investigaciones realizadas, donde no se describe asociación alguna entre el polimorfismo Ala54Thr y el desarrollo de dislipidemias o RI (40, 42, 43), pero no son del todo concluyentes, ya que existen estudios a nivel mundial donde sí se encontró una clara asociación entre las dos variables y se afirma la hipótesis de que la presencia del alelo Thr condiciona al individuo a desarrollar obesidad y enfermedades cardiovasculares (13, 40, 43).
Es por estas discrepancias entre los diferentes estudios realizados sobre el polimorfismo Ala54Thr del gen de FABP2 y las diferentes alteraciones metabólicas (39, 40) que se hace necesario continuar las investigaciones, ya sea aumentando el tamaño de la muestra o estudiando diferentes poblaciones para dilucidar esta interrogante.
Siguiendo la misma línea de investigación de los factores de riesgo de enfermedades cardiometabólicas, el gen de ApoE, al igual que los dos anteriores, ha sido seleccionado como uno de los genes que predisponen al establecimiento del SM ya que el polimorfismo que este presenta es un factor genético determinante de los niveles de colesterol total y colesterol en las lipoproteínas de baja densidad (LDL-c) en plasma y, por lo tanto, un factor determinante de las enfermedades cardiovasculares (3, 17, 45, 46), siendo el alelo ε4 el que se asocia con niveles elevados de colesterol y LDL-c (44, 47). En este mismo orden de ideas, es posible observar con nuestros resultados que los sujetos que poseen el alelo ε4 en su genotipo presentan niveles más elevados de colesterol total, mientras que los portadores del alelo ε2 presentan niveles sanguíneos más bajos de este y los restantes analitos al compararlos con los valores del alelo silvestre (Tabla 8), estableciéndose gracias a los análisis estadísticos que existe una significancia en dichas diferencias.
A nivel mundial se ha aceptado que la presencia del alelo ε4 está asociado a niveles de colesterol más elevados (44, 48), tal como reflejan los resultados de este estudio. Por otro lado, investigaciones como la realizada en Colombia (47) indican lo contrario, donde describen que este alelo está asociado a niveles disminuidos de colesterol total y LDL-c junto con valores elevados de HDL-c.
Asimismo en este estudio, después de evaluar a la población a través del índice odds ratio junto a su intervalo de confianza y pruebas de Chi2, se obtuvo que en el grupo de sujetos con hipercolesterolemia hubo diferencias estadísticamente significativas en la frecuencia del genotipo ε4 con respecto al grupo control (Tabla 9), enfatizando la posibilidad de que en este primer grupo se pudiera presentar una susceptibilidad clínica a presentar niveles elevados de colesterol y mayor riesgo de desarrollar enfermedades cardiovasculares, tal como se describe en otros estudios (3, 5); mas esta diferencia no se observa en el grupo de hipertrigliceridémicos ni RI. Sin embargo, para establecer si existe una verdadera relación clínica entre la presencia del genotipo y el desarrollo de la enfermedad es necesario realizar un estudio aumentando el tamaño de la muestra.
Por otro lado, existe una diferencia estadísticamente significativa en la presencia del genotipo ε2 entre el grupo control y los tres grupos restantes, indicando que existe una tendencia a presentar valores de colesterol y triglicéridos disminuidos asociados a la presencia de este alelo, lo que concuerda con investigaciones previas a este estudio, que hablan del efecto protector que tiene este alelo ante el desarrollo de placas de ateroma y enfermedades cardiovasculares y metabólicas (3, 49, 50); en el caso de los resistentes a la insulina se obtienen resultados similares, confiriéndole al individuo cierta protección ante el desarrollo de dicha alteración. Este último resultado aporta una característica al genotipo que ha sido poco estudiada, por lo que es punto de partida para profundizar la investigación.
En un estudio realizado con individuos caucásicos, se obtuvo una frecuencia alélica de los diferentes genotipos de ApoE como se menciona a continuación: alelo ε2 0,08, alelo ε3 0,77 y alelo ε4 0,15 (3), resultados que se asemejan a los obtenidos en el presente estudio: alelo ε2 0,05, alelo ε3 0,80 y alelo ε4 0,15 (Tabla 5), distribución que puede venir dada por la mezcla de razas que existe en nuestro país, donde existe un alto número de mestizos con ascendencia europea.
Finalmente, es importante destacar que en el presente estudio se ha descrito que el SM, que afecta hoy en día a un alto porcentaje de la población, es de etiología poligénica y multifactorial (3, 21); por lo que es posible relacionarlo con los polimorfismos estudiados en este trabajo. En este sentido, nuestros resultados y análisis permitieron identificar un posible factor de riesgo relativo entre el desarrollo de SM y el alelo ε4, una variante del gen de ApoE que está estrechamente relacionada con la aparición de hipercolesterolemia y enfermedades cardiovasculares, factores de riesgo para desarrollar SM, mientras que el alelo e2 representa un factor protector contra la aparición del mismo. Cabe destacar que sólo se encontró asociación entre los polimorfismos de este gen y los factores de riesgo a desarrollar SM estudiados, no así con los dos restantes.
Conclusión
De la población estudiada, se encontró que aunque la mayoría (61%) presentaba alteraciones en el metabolismo de los lípidos y/o de los carbohidratos, no existe asociación entre los polimorfismos Pro12Ala del gen PPARg2 o Ala54Thr del gen FABP2 con dislipidemias como hipercolesterolemia e hipertrigliceridemia o RI, indicando que el hecho de presentar dichos genotipos no condicionan al individuo a desarrollar las patologías anteriormente mencionados. Sin embargo, se encontró una relación entre los valores de colesterol total y los diferentes genotipos de ApoE, siendo los portadores del alelo ε4 los que se han asociado a valores de colesterol más elevados, existiendo una susceptibilidad clínica entre la presencia de este alelo y el desarrollo de la enfermedad; mientras que el alelo ε2 se distribuye de forma estadísticamente significativa en el grupo control con respecto al grupo de hipercolesterolémicos, hipertrigliceridémicos y con RI, indicando que la presencia del mismo podría conferirle al individuo un efecto protector ante el desarrollo de estas condiciones.
Agradecimientos
El proyecto fue financiado por la Coordinación de Investigación y la Coordinación de Extensión de la Facultad de Medicina. Agradecemos a Grupo Evo-Lab C.A y a los habitantes del Sector “Los Eucaliptos” de la Parroquia San Juan, Municipio Libertador, Caracas.
Referencias
- Organización Mundial de la Salud (2011) Obesidad y sobrepeso (en línea) Última modificación: marzo 2011. Disponible en: http://www.who.int/mediacentre/factsheets/fs311/es/index.html. Acceso el 14 de Agosto 2011
- Dwyer T, Blizzard CL. Defining obesity in children by biological endpoint rather than population distribution. Int J Obes 1996;20:472-480.
- Rodríguez N. Alteraciones en genes del metabolismo lipídico y enfermedad cardiovascular. AVFT 2007;26(1):1-9.
- Desvergne B, Wahli W. Peroxisome proliferator-activated receptors: nuclear control of metabolism. Endocr Rev 1999;20:649-688.
- Schoonjans K, Staels B, Auwerx J. Role of the peroxisome proliferator-activated receptor (PPAR) in mediating the effects of fibrates and fatty acids on gene expression. J Lipid Res 1996;37:907-925.
- Beamer B, Yen C, Andersen R, Muller D, Elahi D, Cheskin L, et al. Association of the Pro12Ala variant in the peroxisome proliferator-activated receptor-gamma2 gene with obesity in two Caucasian populations. Diabetes 1998;47:1806-1808.
- Frederiksen L, Brodbaek K, Fenger M, Jorgensen T, Borch-Johnsen K, Madsbad S, et al. Comment: studies of the Pro12Ala polymorphism of the PPAR-gamma gene in the Danish MONICA cohort: homozygosity of the Ala allele confers a decreased risk of the insulin resistance syndrome. J Clin Endocrinol Metab 2002;87:3989-3992.
- Mathews C, Van Holde K, Ahern K. Bioquímica. Madrid: Pearson Educación. 3 ed; 2005. p.701–745
- Waiss EP, Brown MD, Shuldiner AR, Hagberg JM. Fatty acids binding protein-2 gene variants and insulin resistance: gene and gene-environment interactions effects. Physiol Genomics 2002;10:145-157.
- Ordovas JM. Genetics, postprandial lipemia and obesity. Nutr Metab Cardiovasc Dis 2001;11:118-133.
- Berthier MT, Couillard C, Prudhomme D, Nadeau A, Bergeron J, Tremblay A et al. Effects of the FABP2 A54T mutation on triglyceride metabolism of viscerally obese men. Obes Res 2001;9:668-675.
- Baier LJ. A polymorfism in the human intestinal fatty acids binding protein alters fatty acid transport across Caco 2 cells. J Biol Chem 1996;271:10892-10896.
- Hegele RA, Connelly PW, Hanley AJ, Sun F, Harris SB, Zinman B. Common genomic variants associated with variations in plasma lipoproteins in young aboriginal Canadians. Arterioscler Thromb Vasc Biol 1997;17:1060-1066.
- Brown M, Shuldiner A, Ferrell R, Weiss E, Korytkowski-Zmuda J, McCole S et al. FABP2 genotype is associated with insulin sensitivity in older women. Metabolism 2001;50:1102-1105.
- Vimaleswaran K, Radha V, Mohan V. Thr54 allele carriers of the Ala54Thr variant of FABP2 gene have associations with metabolic syndrome and hypertriglyceridemia in urban South Indians. Metabolism Clinical and Experimental 2006;55:1222-1226.
- Davignon J, Gregg RE, Sing CF. Apolipoprotein E Polymorphism and Atherosclerosis. Atherosclerosis 1988;8:1-21.
- Wilson PWF, Schaefer EJ, Larson MG, Ordovas JM. Apolipoprotein E alleles and risk of coronary disease. Arterioscler Thromb Vasc Biol 1996;16:1250-1255.
- Lucotte G, Loirat F, Hazout S. Pattern of gradient of apoliprotein E allele 4 frequencies in Western Europe. Hum Biol 1997;69:253-262.
- Matthews DR, Hosker JP, Rudenski AS, Naylor BA, Treacher DF, Turner RC. Homeostasis model assessment: Insulin resistance and B-cell function from fasting plasma glucose and insulin concentrations in mang. Diabetologia 1985;28(7):412-419.
- Welsh K. I. and Bunce M. Molecular Typing for the MHC with PCR-SSP. Reviews in Immunogenetics 1999;1:157-176.
- Reaven G. Role of insulin resistance in human disease. Diabetes. 1988;37:1595-1607.
- Camejo G, Ljung B and Oakes N. Pharmacological treatment of insulin resistance in obesity. Nutr Metab Cardiovasc Dis 2001;11:275-284.
- Zimmet P, Boyko EJ. Etiology of the metabolic sydrome: potential role of insuline resistance, leptin resistance and other players. Ann NY Acad Sci 1999;892:25-44.
- Acosta A, Chiesa M, y col. Prevalencia De Diabetes Mellitus Tipo 2 Y Síndrome Metabólico En Una Muestra Poblacional Del Estado Falcón, Venezuela. Memorias Del IX Congreso Venezolano De Endocrinología y Metabolismo 2004:49.
- Flores H, Silva E y col. Prevalence And Risk Factors Associated With The Metabolic Syndrome And Dyslipidemia In White, Black, Amerindians And Mixed Hispanics In Zulia State, Venezuela. Diabet Res Clin Pract 2005;69:63-67.
- Schröder A. Relación Entre Los Indicadores De Distribución De Grasa Corporal Y El Síndrome Metabólico En Niñas, Niños Y Adolescentes Obesos. Trabajo Especial De Grado De Especialización En Nutrición Clínica Opción Pediatría. 2007.
- Beck-Nielsen H, Groop LC. Metabolic and genetic characterization of prediabetic states. Sequence of events leading to non-insulin dependent diabetes mellitus. J Clin Invest 1994;94:1714-1721
- Groop L, Forsblom C, Lehtovirta M, Tuomi T, Karanko S, Nissen M, Ehrnstrom BO, Forsen B, Isomaa B, Snickars B, Taskinen MR. Metabolic consequences of a family history of NIDDM (The Botnia Study). Diabetes 1996;45:1585-93.
- Swarbrick M, Chapman C, McQuillan B. A Pro12Ala polymorphism in the human peroxisome proliferator-activated receptor-g2 is associated with combined hyperlipidaemia in obesity. European Journal of Endocrinology 2001;144:277-282.
- Martínez M, Martínez L. Síndrome de resistencia a la insulina y síndrome metabólico: similitudes y diferencias. Síndrome metabólico: concepto, fisiopatología y epidemiología. Cardiovascular Risk Factors 2003;12(2):89-95.
- S.V.P.P. Sociedad Venezolana de Puericultura y Pediatría, Livia Machado de Ponte (Directora), Isbelia Izaguirre de Espinoza , Rafael J. Santiago P. Nutrición Pediátrica 2009;1:264-266.
- Rosado E, Bressan J. Efecto de la dieta y de los genes PPARγ2 y g2-adrenérgico en el metabolismo energético y en la composición corporal de mujeres obesas. Nutr Hosp 2006;21(3):317-331.
- Carvajal K, Hernández-Esquivel M, Moreno-Sánchez R. PPARs, síndrome metabólico y enfermedad cardíaca Arco Cardiol Mex 2007;77(Suppl 4):66-76.
- Yen CJ, Beamer BA, Negri C, et al. Molecular scanning of the human peroxisome proliferator activated receptor g (hPPARg) gene in diabetic Caucasians: identification of a Pro12Ala PPARg2 missense mutation. Biochem Biophys Res Commun 1997;241:270-274.
- Ek J, Andersen G, Urhammer SA, Hansen L, Carstensen B, Borch-Johnsen K, Drivsholm T, Berglund L, Hansen T, Lithell H, Pedersen O. Studies of the Pro12Ala polymorphism of the peroxisome proliferator-activated receptor-gamma2 (PPARgamma2) gene in relation to insulin sensitivity among glucose tolerant caucasians. Diabetologia 2001;44:1170-1176.
- Ghoussaini M y col. Implication of the Pro12Ala polymorphism of the PPAR-gamma 2 gene in type 2 diabetes and obesity in the French population. BMC Medical Genetics 2005;6:11
- Pérusse L, Bouchard C: Gene-diet interactions in obesity. Am J Clin Nutr 2000;72:1285-1290.
- Baier LJ, Sacchettini JC, Knowler WC, Eads J, Paolissog, Tataranni PA, Mochizuki H, Bennett PH, Bogardus C, Prochazka M. An amino acid substitution in the human intestinal fatty acid binding protein is associated with increased fatty acid binding, increased fat oxidation and insulin resistance. J Clin Invest 1995;95:1281-1287.
- Albala C, Jiménez B, Pérez F, Liberman C. Polimorfismo de la proteína ligante de ácidos grasos intestinal (FABP2), obesidad e insulina resistencia. Rev Med Chile 2006;134:372-379.
- Salem AH. A population frequency analysis of the FABP2 gene polymorphism in the Egyptian population. Egypt J Med Hum Genet 2009;10(2):178-185.
- Gómez LC, Real SM, Ojeda MS, Giménez S, Mayorga LS, Roque M. Polymorphism of the FABP2 gene: A population frequency analysis and an association study with cardiovascular risk markers in Argentina. BMC Med Genet 2007;8:39.
- Endo K, Yanagi H, Hirano C, Hayakawa Y, Hamaguchi H, Tomura S. No association found between the Ala 54Thr polymorphism of FABP2 gene and obesity and obesity with dyslipidemia in Japanese school children. J Atheroscler Thromb 2001;8(3):80-83.
- Pihlajamäki J, Rissanen J, Heikkinen S, Karjalainen L, Laakso M. Codon 54 polymorphism of the human intestinal fatty acid binding protein 2 gene is associated with dyslipidemias but not with insulin resistance in patients with familial combined hyperlipidemia. Arterioscler Thromb Vasc Biol 1997;17(6):1039-1044.
- Celaya J, Rodríguez A, Arends A. Estudios de polimorfismos del gen (APO E) de la apolipoproteína-E (Apo E) y su relación con niveles elevados de colesterol total, lipoproteínas y triglicéridos séricos en niños de edad escolar. Rev Soc Med Quir Hosp Emerg Pérez de León 2007;38(1):19-26
- A Hixson JE. Apolipoprotein E polymorphism affect atherosclerosis en young males. Pathobiological determinants of atheroesclerosis in Youth (PDAY) Research Group. Atheroscler Thromb 1991;11:1237-1244.
- Bennet AM, Di Angelantonio E, Ye Z, Wensley F, Dahlin A, Ahlbom A, et al. Association of apolipoprotein E genotypes with lipid levels and coronary risk. JAMA. 2007;298:1300-1311.
- Silvera Redondo C, Barrios R, Pájaro D, Hernández E, Chicangana C, Rolón G y cols. Polimorfismos del gen ApoE: su asociación con los niveles de lipoproteínas plasmáticas en población juvenil de Barranquilla. Iatreia 2010;23(4):22-27.
- Bañares V., Wysynski D., Schreier L. y Tavella M. Polimorfismo -219 G/T en el gen Apo E en relación con los niveles de colesterol y la enfermedad aterosclerótica en Argentina. Invest Clìn 2010;51(1):17-26.
- Eto M, Watanabe K, Ishii K. A racial difference in apolipoprotein E allele frequencies between the Japanese and Caucasian populations. Clin Genet 1986;30:422-427.
- Díaz-Realpe, J, Muñoz J y col. Factores de Riesgo para Enfermedad Cardiovascular en Trabajadores de una Institución Prestadora de Servicios de Salud, Colombia. Rev Salud Pública 2007;9:64-75.