Introducción
Los carbohidratos son los principales componentes de la dieta. Entre ellos, los almidones y el azúcar de mesa son los más importantes para los humanos. Así, un hombre de 70 Kg de peso debe digerir y asimilar 350-400 g de carbohidratos al día. Durante la digestión, los carbohidratos de la dieta son convertidos en glucosa, la cual se absorbe en la zona distal del ileon y en el yeyuno. Tradicionalmente se ha considerado que, después de la absorción, el monosacárido es translocado, intacto, a través de la mucosa intestinal, hasta la sangre, quedando disponible para ser usada, por el hígado y otros órganos, como fuente de energía y como precursor para la síntesis de glucógeno y ácidos grasos (1-2).
Múltiples reportes señalan que los enterocitos, además de la maquinaria para absorber y translocar al plasma el azúcar de la dieta, poseen el complemento completo de enzimas glucolíticas (3). En consecuencia, durante la asimilación de la glucosa ocurre la partición del azúcar que ingresa a los enterocitos (Figura 1) entre su transporte al plasma (con participación del transportador GLUT 2) o su conversión a lactato (maquinaria glucolítica) (2,4).
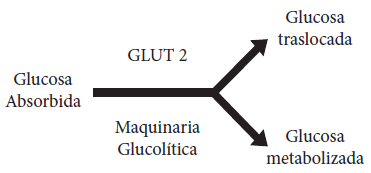
Figura 1. Partición de la glucosa absorbida en el enterocito.Figura 1. Partición de la glucosa absorbida en el enterocito.
Aunque el escenario planteado en la Figura 1 es ampliamente aceptado, existe discrepancia en relación con la proporción del azúcar que es metabolizada a lactato, reportándose desde valores insignificantes hasta otros superiores al 75%. Parte de esta discrepancia se ha atribuido a deficiencias en la oxigenación del tejido (2), llegándose, en ocasiones, a diseños experimentales que enfatizan un estado de hiperoxigenación (5) que puede carecer de sentido fisiológico.
Se ha determinado que el hígado posee una limitada capacidad para utilizar la glucosa de la sangre, prefiriendo a los substratos gluconeogénicos (piruvato, alanina, glutamina y glicerol) para la síntesis del glucógeno y los ácidos grasos. Se ha estimado que, al menos, 2/3 de la glucosa proveniente de la dieta debe transformarse en un intermediario de 3 carbonos, presumiblemente el lactato, antes de que se la pueda incorporar en el glucógeno (6,7,8).
Un problema por resolver de la “teoría de la ruta indirecta de síntesis del glucógeno” es el sitio, o sitios, dónde ocurre la transformación inicial de la glucosa en lactato. El intestino delgado aparece como un lugar de alto potencial, ya que posee todo el complemento enzimático de la glucólisis y muestra una elevada tasa de producción de lactato, bajo condiciones aeróbicas, durante la absorción de la glucosa y su translocación a la sangre.
La hipótesis central de este estudio considera la posibilidad de que el intestino delgado contribuya al metabolismo inicial de la glucosa procedente de la dieta y provea al hígado de un precursor como el lactato, utilizado con alta eficiencia para el anabolismo hepático.
materiales y métodos
Animales
En los experimentos se utilizaron ratas macho de la cepa Sprague-Dawley, con un peso inicial cercano a los 125 g provenientes del bioterio del Instituto de Medicina Experimental de la Universidad Central de Venezuela o del Instituto Nacional de Higiene “Rafael Rangel”.
Dietas
En relación con las dietas, el carbohidrato a probar (glucosa, almidón, sacarosa o una dieta sin carbohidratos a base de caseína) se utilizó en una cantidad igual al 60%, junto con almidón: 13.6%, caseína (libre de vitaminas): 15%, aceite de maíz: 5%, mezcla de minerales: 5% (Mineral Mix, AIN-76 # 170915), 0.3% de DL-metionina y mezcla de vitaminas (Vitamin Mix A.O.A.C. # 40055). Se tuvo un grupo control el cual fue alimentado con dieta comercial no purificada, ratarina (Purina; Valencia, Venezuela). Todos los grupos experimentales fueron mantenidos a temperatura ambiente, en jaulas individuales en el bioterio del Instituto de Medicina Experimental de la U.C.V. El período de luz fue de 12 horas. Los mismos se mantuvieron alimentados por un tiempo mínimo de 21 días, con libre acceso al alimento (ad libitum) y al agua de beber. En algunos experimentos, al agua de beber se le añadió 5% de glucosa.
Obtención de homogenato hepático y mucosa intestinal
Antes de ser sacrificadas las ratas se anestesiaron con éter dietílico, por medio de gasas impregnadas con este compuesto y colocadas en un desecador completamente cerrado, dentro del cual se encontraba el animal.
La obtención del homogenato hepático se hizo extirpando el hígado del animal, se peso y posteriormente se paso por un molino mecánico manual. El material obtenido fue diluido en el buffer de extracción, utilizando una relación ¼ (p/v), y colocado en un homogenizador tipo Potter Eveljhem, para homogeneizarlo con 8 a 10 pases en frío. El homogenato obtenido se centrifugo a una velocidad de 15.000 x g por un tiempo de 30 min (4°C) (9). Finalizada esta etapa, se procedió a eliminar la capa sobrenadante de naturaleza lipídica y se tomó el resto del sobrenadante para realizar las determinaciones enzimáticas. Para la obtención de la mucosa intestinal, se procedió a tomar un segmento del intestino representativo del yeyuno, el cual fue abierto longitudinalmente, procediendo a obtener la mucosa por raspado con un portaobjeto.
Determinación de la actividad in vitro de la glucoquinasa y hexoquinasa
El sobrenadante post-mitocondrial de mucosa intestinal e hígado se usó para determinar, espectrofotométricamente, la actividad de hexoquinasa (H) y la capacidad fosforilativa total (hexoquinasa + glucoquinasa) (CFT); la actividad de glucoquinasa (G) se estimó por diferencia.
Las mezclas de reacción contenían en un volumen final de 1.036 mL los siguientes componentes: glucosa (1 mM para la hexoquinasa ó 100 mM para la capacidad fosforilativa total = hexoquinasa + glucoquinasa), ATP (5 mM), MgCl2 (10mM), NAD (1 mM), glucosa 6-P deshidrogenasa (NAD dependiente) (5 U) y buffer Tris (0.1 M, pH 7.2). Para los ensayos se añadieron a las cubetas 0.1 mL de los respectivos sobrenadantes a 15.000 x g, diluidos apropiadamente (10,11).
Las reacciones se iniciaron con la adición de la glucosa, realizándose las lecturas a 340 nm. La actividad de glucoquinasa se estimo substrayendo la actividad de hexoquinasa de la capacidad fosforilativa total.
Una unidad de hexoquinasa o de glucoquinasa corresponde a la fosforilación de 1 mmol de glucosa por minuto a 37°C, determinado a través de la reducción de 1 mmol de NAD en la reacción de la glucosa-6-P deshidrogenasa de L. mesenteroides.
Resultados
Efecto de la dieta sobre las actividades de fosforilación de glucosa hepáticas e intestinales
En las células de mamíferos la fosforilación de la glucosa es catalizada por una familia de isoenzimas, denominadas hexoquinasas (HQ; ATP:D-hexosa-6-transferasa; EC 2.7.1.1). La fosforilación del azúcar es una reacción termodinámicamente desfavorable, en la que el grupo fosfato procedente del ATP es transferido al grupo hidroxilo libre del carbono 6. Las hexoquinasas difieren en muchas de sus propiedades catalíticas y exhiben además una variada distribución tanto a nivel intracelular como tisular (12). En mamíferos, se han caracterizado cuatro isoenzimas: las hexoquinasas I, II, III y IV de acuerdo a su movilidad electroforética en geles de poliacrilamida (13); la hexoquinasa IV es comúnmente conocida como glucoquinasa (GQ).
A diferencia de las otras HQ, GQ presenta una baja afinidad por la glucosa, una curva de saturación sigmoidal para este sustrato, con un coeficiente de Hill de aproximadamente 1.5 y es inhibida por una proteína reguladora, así como también por acyl-CoAs de cadena larga (11, 12,13).
Estudios realizados en mucosa del yeyuno de rata (14) evidenciaron la existencia de las cuatro isoenzimas en este tejido; señalándose que la HQ IV ó GQ tenía un comportamiento electroforético similar a la enzima hepática. No obstante, los grupos que, utilizando metodologías más modernas, han estudiado la distribución tisular de GQ, la reportan sólo en el hígado y páncreas (11,15). Hasta la fecha no se ha determinado si la actividad de GQ de la mucosa intestinal tiene un comportamiento cinético similar a la del hígado; de ser así, los enterocitos tendrían en común con los hepatocitos y las células ß del páncreas, la expresión de los genes que codifican para GQ (16) y el transportador GLUT 2 (17), dos componentes de la maquinaria enzimática del metabolismo de los carbohidratos a los cuales se les asigna una relevancia especial en el control de la glicemia.
En general (Tabla 1), para todas las dietas la CFT del intestino fue mayor que la del hígado, con excepción de la dieta de glucosa. La GQ es la enzima que hace la mayor contribución a la CFT hepática, fluctuando entre el 66% (Glucosa) y el 93% (Sacarosa). En contraste, en el intestino, la HQ hace la mayor contribución a la CFT, mientras que GQ tuvo una contribución menor que fluctuó entre el 2% (Ratarina) y el 23% (Sacarosa). Los más bajos niveles de CFT, HQ y GQ, tanto en el intestino como en el hígado, se encontraron en los animales alimentados con la dieta a base de caseína (75%). Ello sugiere que altos niveles de carbohidratos en la dieta inducen a las enzimas de fosforilación de la glucosa. El hecho de que el mencionado efecto de la caseína se haya manifestado en el intestino es una evidencia indirecta de que este órgano puede jugar un papel importante en el metabolismo inicial de la glucosa proveniente de la dieta.
Tabla 1. Efecto de la dieta sobre las actividades de fosforilación de la glucosa en intestino e hígado de rata.
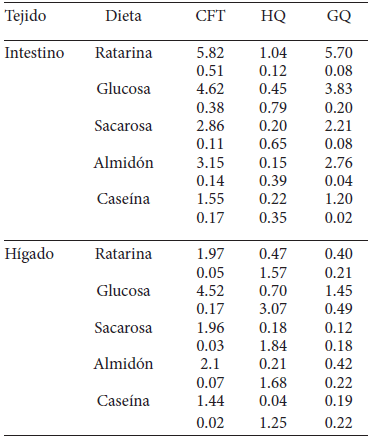
Las actividades se expresaron como nmol de glc/mg prot./ min. Los valores en cada celda corresponden a la media ± error estándar (n=4). CFT: Capacidad fosforilativa, HQ: Hexoquinasa, G: Glucoquinasa
Igualmente sugestiva resulta la respuesta tisular en los animales alimentados con sacarosa. Este tratamiento produjo los mayores valores relativos para la actividad de GQ: 94% en el hígado y 23% en el intestino. A manera de especulación, podría pensarse que, la fructosa derivada del disacárido promueve, a través de su interacción con la proteína reguladora de la GQ, el incremento de esta isoenzima en el citoplasma de los hepatocitos y los enterocitos. Se ha reportado que la proteína reguladora secuestra a la GQ en el núcleo, liberándola cuando aumenta la concentración intracelular de Fructosa –1P (18). Así, si la GQ intestinal muestra propiedades similares a la del hígado, ello pudiese explicar porqué se observan valores elevados de lactato en la vena porta de animales realimentados con sacarosa (19) y porqué dicha dieta tiene un muy elevado potencial lipogénico en el hígado (20).
Efecto diferencial de la adición de glucosa al agua de beber sobre las enzimas fosforiladoras de glucosa.
Se sabe, que el balance en la partición de la glucosa absorbida entre la translocación al lado seroso o su metabolismo a lactato en segmentos intestinales, puede ser modificado por las condiciones nutricionales o de incubación in vitro. Particularmente, la translocación de glucosa al medio seroso disminuye drásticamente cuando se suministra ratarina conjuntamente con solución de glucosa al 5% (SG) (6). Se quiso, así, evaluar el efecto del mencionado tratamiento sobre las actividades fosforiladoras de glucosa.
En los animales alimentados con ratarina, la administración de SG produjo un marcado incremento en la actividad de GQ en el intestino, llegando a representar un 63% de la CFT. Asimismo, se observó una disminución significativa de la HQ y un incremento de la CFT. En contraste, en el hígado la CFT no se modifico, se observó un incremento de la HQ y una ligera disminución de GQ (Figura 2).
Figura 2. Efecto del suministro de SG al 5% sobre las actividades fosforiladoras de glucosa en ratas alimentadas con una dieta a base de ratarina.
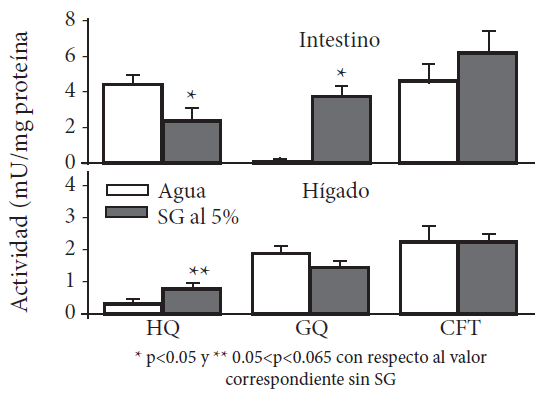
*p <0.05 y **0.05
Si los animales se alimentan con la dieta a base de glucosa, y además reciben SG, en el intestino se produce un aumento diferencial de HQ y una disminución de GQ (Figura 3). En el hígado se observó un aumento diferencial de todas las actividades de fosforilación, aunque en términos relativos el mayor efecto se vio para la HQ.
Figura 3. Efecto del suministro de SG al 5% sobre las actividades fosforiladoras de glucosa en ratas alimentadas con una dieta a base de glucosa.
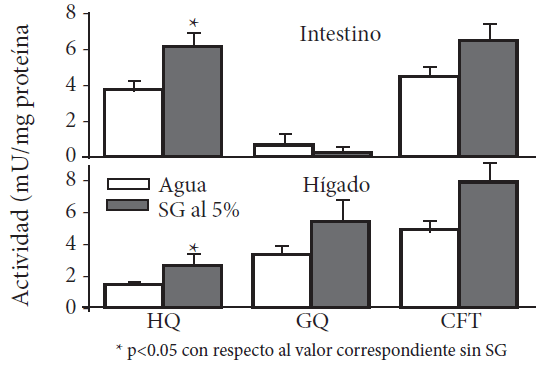
*p <0.05 significativamente diferente del valor correspondiente sin SG (solución de glucosa al 5%). Las barras representan el promedio ± error estándar de 6 animales C.F.T.= Capacidad fosforilativa total.
Los resultados de las Figuras 2 y 3 sugieren que, a nivel hepático, se manifiesta un efecto sinergístico cuando la glucosa se suministra en forma sólida como líquida. En contraste, para el intestino la forma de administración del azúcar tiene efectos diferentes. La explicación de este fenómeno quizás resida en el hecho de que cuando la glucosa proviene de la dieta sólida, está se encuentra presente en el lapso de las comidas (12 horas del período de oscuridad), mientras que la que se suministra en forma líquida está presente de manera continua, como si se tratara de una “inundación” con el metabolito, pues el animal bebe SG, no porque tenga hambre, sino cuando tiene sed. De hecho, el consumo de líquido cuando se suministró SG fue mucho mayor que cuando se suministró sólo agua.
Conclusiones
Desde una perspectiva global, pareciera que cuando aumenta la producción intestinal de lactato (animales que reciben Glucosa, Ratarina + SG y Sacarosa) también se observa un aumento en la actividad de GQ intestinal. Ello fortalece la hipótesis de trabajo sobre el papel del intestino en el metabolismo inicial de la glucosa, proceso en el cual la GQ estaría involucrada.
Teniendo en cuenta la alta capacidad que posee la mucosa intestinal de realizar glucólisis, de la modificación en la partición de la glucosa absorbida en respuesta a diversos tratamientos, y la inducción diferencial de GQ, el intestino delgado se perfila como el principal surtidor de lactato para el anabolismo hepático.
Agradecimientos
Se agradece el financiamiento a través del proyecto CDCH UCV, 09-12-4451-02
Referencias
- Katz, J. y McGarry, D. The glucose paradox. Is glucose a substrate for liver metabolism? J Clin Invest 1984; 74:1901-1909.
- Carmona, A. Metabolic cooperation between intestine and liver. Implications in relation to fat and glycogen synthesis. Arch Lat Nutr 1995; 45(Suppl. 1):284S-288S.
- Srivastava, L.M. y Hubscher, G. Glucose metabolism in the mucosa of the small intestine. Glycolysis in subcellular preparations from the cat and rat. Biochem J 1966; 100:458-466.
- Silverman, M. Structure and function of hexose transporters. Ann. Rev. Biochem 1991; 60:757-794.
- Windmueller, H.G, y Spaeth, A.E. Intestinal metabolism of glutamine and glutamate from the lumen as compared to glutamine from blood. Arch Biochem Biophys 1975; 171:662-673.
- Carmona, A. A simple in vitro perfusion system to measure intestinal nutrient uptake J Nutr Biochem 1998;9:52-57.
- Tseung, C-W. y Carmona, A. Comparative study of phosphofructokinase from rat small intestine and liver. Control by fructose-2,6-bisphosphate and other effectors. Acta Cient Venez 1990; 41:311-316.
- Carmona, A. Drogas, inhibidores y otras historias. De la quimoterapia a la toxicología nutricional. Acta Cient Venez 1999;50:210-219.
- Wood.W. A. Carbohydrate Metabolis. Methods in Enzymology. 1975, Vol XLII
- Middleton R. J. Hexokinases and glucokinases. Biochemical Society Transactions. 1989;18:180-183
- Van Schaftingen E. A protein from rat liver confers to glucokinase the property of being antagonistically regulated by fructose 6-phosphate and fructose 1-phosphate. Eur J Biochem 1989;179:179-184
- Printz R. L., Magnuson M. A., y Granner D.K. Mammalian Glucokinase. Annu Rev Nutr 1993; 13:463-496
- Van Schaftingen E., Detheux M., y Veiga D. M. Short-term control of glucokinase activity: role of a regulatory protein. Faseb J 1994;8:414-419
- Zhong Xu L., Weber I., Harrison R.W., Gigh-Jain M., y Pilkis S. Sugar specificity of human-cell glucokinase: Correlation of molecular models with kinetic measurements. Biochemistry 1995;34:6083-6092
- Anderson, J,W y Tyrrel, J.B. Hexoquinase activity of rat intestinal mucosa: Demostration of four isozymes and changes in subcellular distribution with fasting and refeeding. Gastroenterology 1973;65:69-76
- Miwa I, Mitsuyama S., Toyoda Y., Murata T. y Okuda J. High-Yield purification of glucokinase from rat liver. Preparative Biochemistry 1990;20(2):163-178
- Boyd, M.E., Albright, E.B., Foster, D.W. y Mc Garry, J.D. In vitro reversal of fasting state of liver metabolism in the rat. J Clin Invest 1981;68:142-152
- Silverman,M. Structure and function of hexose transporters. Ann Rev Biochem 1991;60:757-94
- Mohammed, M., Stubbs M., Agius L. Evidence for glucose and sorbitol-induced nuclear export of glucokinase regulatory protein in hepatocytes. Febs Letters 1999;462:453-458
- Carmona, A. Nishina, P. Avery, E. y Freedland Time course changes in glycogen accretion, 6-phosphogluconate, fructose-2, 6-bisphosphate and lipogenesis upon refeeding a high sucrose diet to starved rats. Int J Biochem 1991;23:455-460