Introducción
La Organización Mundial de la Salud (OMS) define la obesidad como una enfermedad crónica de alta prevalencia, que se caracteriza por un aumento desmesurado de la grasa corporal y un mayor riesgo para la salud. Asimismo, es considerada una pandemia, las cifras señalan que desde 1975 hasta el 2016 se ha triplicado el número de individuos que la padecen a nivel mundial (1), este incremento ha sido ligado con la llegada de la urbanización, lo que demuestra el papel decisivo que poseen los factores ambientales a la hora de estudiar esta patología.
Ahora bien, la obesidad se considera una enfermedad multifactorial, es decir, puede ser provocada por distintos factores, entre los cuales destacan, los factores genéticos, ambientales, metabólicos y endocrinos (2). En los últimos años y debido a los avances tecnológicos se ha podido comprobar la importancia de la genética en el desarrollo de diversas enfermedades, incluyendo la obesidad. Muchos han sido los genes asociados a esta condición, y la interacción entre los mismos puede tener la capacidad de propiciar, o por el contrario proteger a los individuos portadores del desarrollo de dicha patología. Entre muchas funciones, el receptor scavenger clase B tipo I, CD36, juega un papel importante facilitando el consumo y utilización de los ácidos grasos celulares. Las investigaciones sobre este receptor son relativamente nuevas, sin embargo, estudios de los polimorfismos en dicho gen demuestran la influencia de estos en los lípidos plasmáticos (3).
Por otra parte, el gen codificante de la apoliproteína E (APOE) es catalogado como uno de los genes más estudiados del genoma (4), su función es el “aclaramiento” de lipoproteínas remanentes sirviendo como ligando para LDL y los receptores de Apo E (5). Existen tres alelos APOE diferentes (e2, e3 y e4), que dan lugar a las isoformas de la proteína en plasma (6). Las alteraciones en proteínas relacionadas con el metabolismo lipídico influyen en el fenotipo de obesidad, y las concentraciones de dichas proteínas estarán determinadas por los polimorfismos de los genes que las codifican (7).
Por lo anteriormente expuesto, se propone evaluar la asociación del polimorfismo -31118 G/A (rs1761667) del gen CD36 y los polimorfismos 388 T/C (rs429358) y 526 C/T (rs7412) del gen APOE con el riesgo a desarrollar obesidad y con los perfiles glucémico y lipídico, en pacientes obesos venezolanos pertenecientes a la Unidad de Cirugía Bariátrica y Metabólica (UNIBAROS), adscrita al Departamento de Cirugía del Hospital Universitario de Caracas.
Materiales y métodos
Tipo y nivel de la investigación
El presente es un estudio descriptivo-correlacional, de cohorte de casos y controles. Los individuos participantes fueron pacientes atendidos en la Unidad de cirugía bariátrica y metabólica (UNIBAROS), del Hospital Universitario de Caracas.
Aspectos éticos y administrativos
El protocolo de estudio cuenta con el aval del Comité de Bioética de la Escuela de Bioanálisis de la Universidad Central de Venezuela, se realiza bajo las normas de ética de la Organización Mundial de la Salud (OMS) para trabajos de investigación en humanos y cuenta con el consentimiento informado escrito y firmado de los participantes en estudio.
Población
La población estudiada fue parte de la Unidad de Cirugía Bariátrica y Metabólica (UNIBAROS), adscrita al Departamento de Cirugía del Hospital Universitario de Caracas. De igual forma, se cuenta con una población control conformada por individuos voluntarios normopeso y aparentemente sanos, que acudieron al Laboratorio de Ciencias Básicas y Aplicadas de la Escuela de Bioanálisis de la Universidad Central de Venezuela (UCV).
Recolección y procesamiento de muestras sanguíneas
A cada individuo en estudio se le extrajeron 10 ml de sangre venosa en ayunas. Posteriormente, se les proporcionó un desayuno, el cual consistió en una empanada de queso y un café con leche, lo que contiene una carga aproximada de 26,3 g de grasa. Luego de la ingesta, se extrajeron dos muestras sanguíneas más, correspondientes a las 2 horas y 4 horas después de comer, denominadas muestras postprandiales.
Determinación de los parámetros bioquímicos
Las muestras se procesaron con el equipo KONELAB prime 60i de THERMOS Scientific, para la determinación de los parámetros de glucosa, colesterol total, colesterol HDL y triglicéridos. La determinación de insulina se realizó mediante la técnica de ELISA, empleando el kit comercial Insulin ELISA de DRG Diagnostics.
Genotipificación
La extracción de ADN se realizó mediante el método de Bunce modificado (8). La cuantificación de ADN se determinó en un biofotómetro (Eppendorf) a 260 nm. Así mismo, se realizó una electroforesis en gel de agarosa al 0,75% para determinar la calidad del ADN.
El ADN genómico se amplificó por reacción en cadena de la polimerasa (PCR) en un termociclador Labcycler SensoQuest.
- Polimorfismo -31118 G/A (rs1761667) del gen CD 36
Se realizó PCR con los oligómeros y mezcla de reacción descrita por Banerjee et al. (9), con ligeras modificaciones. Los oligonucleótidos utilizados fueron los siguientes:
Primer Forward:
5’ - CAAAATCACAATCTATTCAAGACCA - 3’
Primer Reverse:
5’ - TTTTGGGAGAAATTCTGAAGAG - 3’
Las condiciones utilizadas para la PCR fueron las descritas por Salim et al. (10). Se preparó un volumen final de reacción de 25 ml, que contuvo 100 - 150 ng de ADN genómico, 25 pmol/ml de cada oligómero, 100 mM de dNTPs, 25 mM de MgCl2 y 5 U/mm de Taq DNA Polimerasa, junto con su respectivo buffer. Las condiciones de la PCR fueron las siguientes: desnaturalización a 95°C por 5 minutos, seguido de 35 ciclos de desnaturalización de 95 °C por 30 segundos, alineamiento a 54°C por 30 segundos, extensión a 72 °C por 30 segundos y una extensión final a 72 °C por 5 minutos. Los productos amplificados se verificaron mediante electroforesis en gel de agarosa al 2%, teñido con bromuro de etidio y visualizados en el equipo Gel DocÔ XR+ System (Bio-Rad).
Los productos amplificados se sometieron a una digestión con la enzima de restricción HhaI, como lo indicado por Banerjee et al. (9) para la determinación del polimorfismo -31118G/A (rs1761667) del gen CD36, separándose posteriormente por electroforesis vertical en gel de poliacrilamida al 10% en Buffer TAE 1X y coloreado con Bromuro de Etidio.
- Polimorfismos 388 T/C (rs429358) y 526 C/T (rs7412) del gen APOE
La PCR se realizó con los oligómeros y la mezcla de reacción descrita por Hixon et al. (11), con ligeras modificaciones. Los oligonucleótidos utilizados fueron los siguientes:
Primer Forward:
5’ - ACA GAA TTC GCC CCG GCC TGG TAC AC - 3’
Primer Reverse:
5’ - TAA GCT TGG CAC GGC TGT CCA AGG A - 3’
Las condiciones de la PCR fueron las utilizadas en el estudio de Srivastava et al. (7). Se preparó un volumen final de reacción de 25 ml, que contuvo 100 - 150 ng de ADN genómico, 25 pmol/ml de cada oligómero, 100 mM de dNTPs, 25 mM de MgCl2, 100% de dimetil sulfóxido y 5 U/mm de Taq DNA Polimerasa, junto con su respectivo buffer. Las condiciones de la PCR fueron las siguientes: desnaturalización inicial a 94°C por 5 minutos, seguido de 40 ciclos con fases de desnaturalización a 94°C por 1 minuto, hibridación o alineamiento a 58°C por 1 minuto, y extensión a 70°C por 1:30 minutos, seguidos por una extensión final a 70°C por 10 min Los productos amplificados se verificaron mediante electroforesis en gel de agarosa al 2%, teñido con bromuro de etidio, y visualizados en el equipo Gel DocÔ XR+ System (Bio-Rad).
Los productos amplificados se sometieron a una digestión con la enzima HhaI, indicado por Srivastava et al. (7) para la determinación de las variantes del gen APOE, separándose posteriormente por electroforesis vertical en gel de poliacrilamida al 10% en Buffer TAE 1X coloreado con Bromuro de Etidio.
Análisis estadístico
Seutilizóestadísticadescriptiva, la cual incluye; media, desviación estándar y se aplicó la prueba ANOVA (análisis de la varianza) para establecer la diferencia entre los grupos. La significancia estadística de las diferencias de frecuencias de los polimorfismos del gen CD36 y del gen APOE entre el grupo de pacientes y controles, fue estimada por la prueba de Ji cuadrado (X2) usando tablas de contingencia. Para estimar la posible asociación de los diferentes polimorfismos de los genes CD36 y APOE y obesidad se calculó la razón de probabilidades (Odds Ratio: OR), con el correspondiente intervalo de confianza (95%). Para determinar las relaciones entre alelos y/o genotipos de los genes a estudiar y los parámetros bioquímicos se realizaron pruebas de ANOVA. De igual forma se realizó la prueba de equilibrio Hardy-Weinberg (H-W) para determinar si la distribución genotípica en los individuos en estudio se encuentra en equilibrio.
Resultados y discusión
Características de la población estudiada
La población estudiada quedó conformada por 110 individuos obesos, 75,45% (n= 83) de sexo biológico femenino y 24,55% (n= 27) de sexo biológico masculino, con una edad promedio de 47 años ± 11,99 (20 - 80). Por otra parte, el grupo control quedó conformado por 114 individuos normopeso, 69,30% (n= 79) de sexo biológico femenino y 30,70% (n= 35) de sexo biológico masculino, con una edad promedio de 30 años ± 11,16 (18 - 65).
En la tabla 1 se presenta la media aritmética ± desviación estándar, tanto para los individuos obesos como para los controles de los parámetros antropométricos y bioquímicos de cada grupo en estudio. Los individuos obesos presentaron un perfil lipídico alterado en comparación con los individuos normopeso, donde las concentraciones de triglicéridos basales y postprandiales (2 horas y 4 horas), VLDL-c, LDL-c poseen un incremento estadísticamente significativo y las HDL-c una disminución igualmente significativa. En cuanto al perfil glucémico, los individuos obesos presentaron concentraciones de glucosa, insulina y HOMA-IR significativamente incrementadas en comparación con el grupo control. Estos resultados son comparables con los encontrados por Luz E. Ramos Arellanos et al. (12), quienes describieron que las concentraciones de colesterol total, LDL-c y TG en los individuos obesos se encontraban significativamente elevados en comparación con el grupo control de individuos normopeso (p < 0,05).
Tabla 1. Parámetros antropométricos y bioquímicos de los individuos en estudio
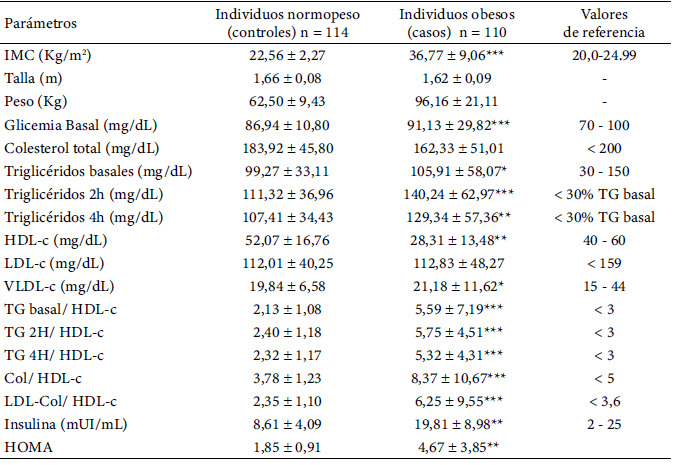
HDL: Lipoproteína de alta densidad. LDL: Lipoproteína de baja densidad. VLDL: Lipoproteína de muy baja densidad. c: Colesterol. HOMA: Modelo de registro homeostático.
*** p < 0,001 con respecto al grupo control
** p < 0,005 con respecto al grupo control
* p < 0,05 con respecto al grupo control
Tipificación del polimorfismo -31118 G/A (rs1761667) del gen del receptor CD36
En la Figura N° 1, se visualizan los productos amplificados correspondientes a la región -31118 G/A del gen del receptor CD36.
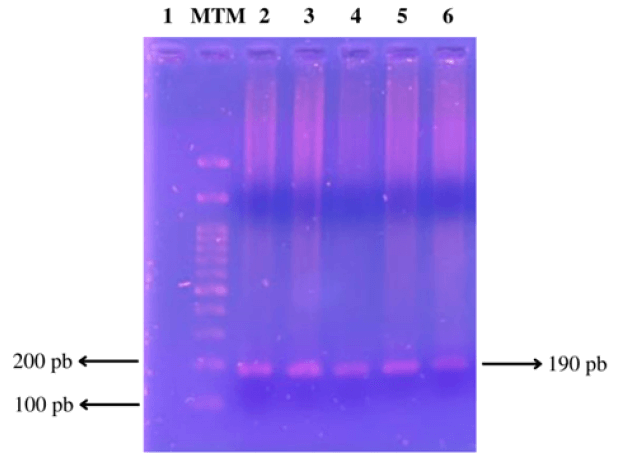
Figura N° 1. Productos amplificados por PCR del gen del receptor CD36. El carril 1 corresponde al control negativo. MTM (Marcador de tamaño molecular) de 100 pb (Promega). En los carriles 2, 3, 4, 5 y 6 se observa la amplificación del gen del receptor CD36 (190 pb).
En la Figura N° 2 se visualiza el producto de digestión de los fragmentos amplificados por PCR del gen del receptor CD36.
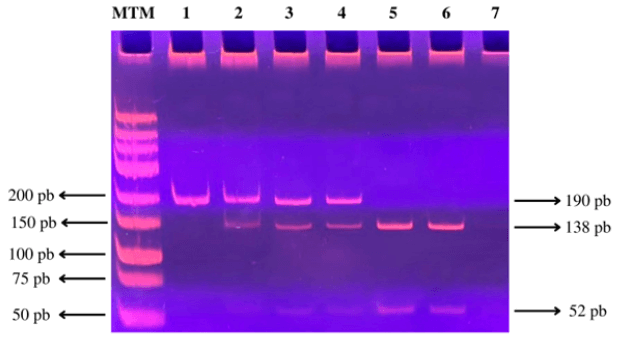
Figura N° 2. Producto de digestión del fragmento amplificado por PCR del gen del receptor CD36. MTM (marcador de tamaño molecular) de 25 pb (Promega). En el carril 1 se observa el genotipo homocigoto A/A, en los carriles 2, 3 y 4 se observa el genotipo heterocigoto G/A, en los carriles 5 y 6 se observa el genotipo homocigoto G/G, y en el carril 7 se encuentra el control negativo.
Se asignó el genotipo homocigoto A/A, cuando se evidencia una banda de 190 pb (carril 1), indicando que la enzima no realizó ningún corte; el genotipo heterocigoto G/A, cuando se evidencian tres bandas de 190 pb, 138 pb y 52 pb (carriles 2, 3 y 4); el genotipo homocigoto G/G cuando se evidencian dos bandas de 138 pb y 52 pb (carriles 5 y 6) y en el carril 7 se encuentra el control negativo.
En la tabla 2 se pueden observar las frecuencias genotípicas y alélicas del polimorfismo del gen del receptor CD36. Como se puede apreciar, el genotipo más frecuente fue el heterocigoto G/A para ambos grupos de estudio, seguido por el genotipo homocigoto A/A y el homocigoto G/G. Estos resultados son consistentes con los descritos por Ramos-Arellano et al. (13) en el año 2013, y Ramos-López et al. (14) en el año 2015.
Tabla 2. Distribución de la frecuencia genotípica y alélica del polimorfismo rs1761667 del gen CD36 en individuos obesos e individuos aparentemente sanos
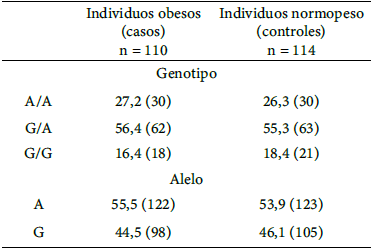
Nota. La frecuencia se muestra en porcentaje y entre paréntesis el número de individuos
En la tabla 3, se muestra el modelo de herencia entre individuos obesos e individuos normopeso, observándose que el modelo de herencia más ajustado es el dominante. No se observó asociación entre el desarrollo de obesidad y la frecuencia genotípica del polimorfismo rs1761667 del gen del receptor CD36 (OR = 0,952, IC95% = 0,527 - 1,721). Es importante destacar que tampoco se observaron diferencias significativas al comparar la frecuencia alélica entre obesos y normopesos (OR = 0,941, IC 95% = 0,649 - 1,305).
Tabla 3. Modelo de herencia dominante del polimorfismo rs1761667 del gen del receptor CD36 de pacientes obesos y controles en estudio
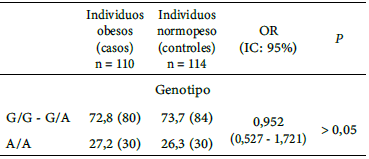
Nota. La frecuencia se muestra en porcentaje y entre paréntesis el número de individuos
No se encontraron estudios donde se relacionara directamente el riesgo a desarrollar obesidad con los diferentes genotipos del polimorfismo rs1761667 del gen del receptor CD36, sin embargo Latisha Love-Gregory y Nada A. Abumrad (15), realizaron una revisión que resume la comprensión actual de la función de CD36 en el metabolismo de los lípidos, con énfasis en la influencia de las variantes genéticas del gen CD36 y su posible contribución a las complicaciones relacionadas con la obesidad.
Al clasificar los individuos en obesos tolerantes e intolerantes a las grasas, basados en el modelo de herencia dominante, no se observaron diferencias significativas (OR = 1,045, IC95% = 0,546 - 2,002, p > 0,05).
Como bien se sabe, el receptor CD36 actúa en la captación de ácidos grasos (AG) y lipoproteínas oxidadas. Además, se ha descrito que la ausencia de CD36 está asociada con lípidos séricos altos y con un perfil metabólico deficiente (16). Se ha observado que el alelo A del polimorfismo rs1761667 reduce la expresión del receptor CD36 (13,14).
Al clasificar los individuos obesos en resistentes y no resistentes a la insulina, considerando valores de HOMA superiores a 3 como resistencia a la insulina (tabla 4), siguiendo un modelo de herencia recesivo, no se observaron diferencias significativas al comparar la frecuencia genotípica entre ambos grupos (p > 0,05). Sin embargo, los portadores de los genotipo A/A y G/A poseen 2 veces mayor posibilidad de desarrollar resistencia a la insulina con respecto a los individuos con el genotipo G/G (OR = 2,151, IC95% = 0,741 - 6,244, p > 0,05).
Tabla 4. Distribución de la frecuencia genotípica y alélica del polimorfismo rs1761667 del gen CD36 en individuos obesos resistentes y no resistentes a la insulina
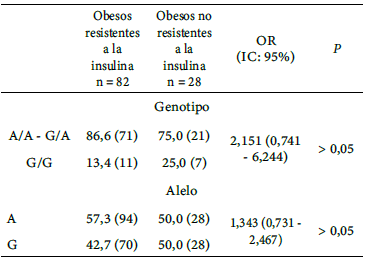
Nota. La frecuencia se muestra en porcentaje y entre paréntesis el número de individuos
Durante los períodos de ayuno y ejercicio, la movilización de ácidos grasos (AG) aumenta desde los adipocitos y depósitos de AG hacia los tejidos, particularmente al músculo esquelético, para su absorción y oxidación. No obstante, la disponibilidad excesiva de ácidos grasos en plasma puede resultar en flujos de ácidos grasos que exceden la capacidad de los tejidos para utilizarlos, lo que lleva a resistencia a la insulina en el hígado y el músculo esquelético (3).
Al comparar los parámetros bioquímicos de los individuos obesos agrupados por el genotipo del gen del receptor CD36, se observó que los individuos obesos con el genotipo homocigoto A/A presentaban un IMC mayor en comparación a los individuos obesos con los genotipos G/A y G/G. A su vez, el genotipo A/A se pudo asociar con mayores valores de insulina, lo cual concuerda con lo descrito por Terri A. Pietka et al. (3), en donde enfatizan la importancia de la molécula de CD36 como regulador de las vías implicadas en el metabolismo de la glucosa.
Polimorfismos 388 T/C (rs429358) y 526 C/T (rs7412) del gen APOE
En la Figura N° 3, se visualizan los productos amplificados correspondientes a la variante 388 T/C (rs429358) y 526 C/T (rs7412) del gen APOE
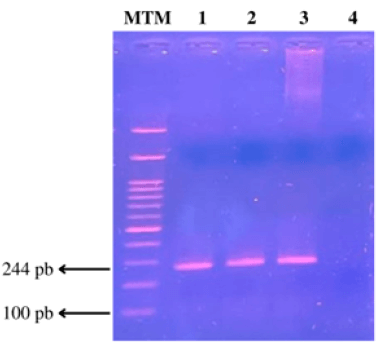
Figura N° 3. Productos amplificados por PCR de la variante 388 T/C (rs429358) y 526 C/T (rs7412) del gen APOE. MTM (Marcador de tamaño molecular). En los carriles 1, 2 y 3 se observa la amplificación del gen APOE (244 pb) y en el carril 4 se observa el control negativo.
En la Figura N° 4 se visualiza el producto de digestión de los fragmentos amplificados por PCR de la variante 388 T/C (rs429358) y 526 C/T (rs7412) del gen APOE.
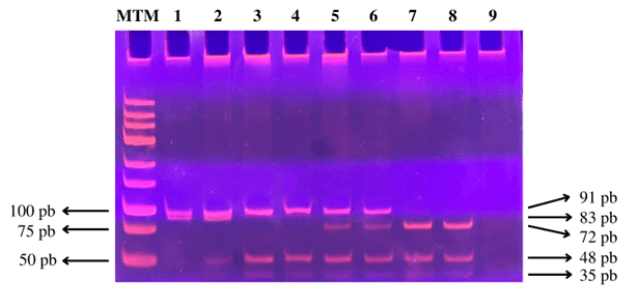
Figura N° 4. Producto de digestión del fragmento amplificado por PCR del gen de la variante 388 T/C (rs429358) y 526 C/T (rs7412) del gen APOE. MTM (marcador de tamaño molecular) de 25 pb (Promega). En el carril 1 se observa el genotipo homocigoto E2/E2, en el carril 2 se observa el genotipo heterocigoto E3/E2, en los carriles 3 y 4 se observa el genotipo homocigoto E3/E3, en los carriles 5 y 6 se observa el genotipo heterocigoto E3/E4, en los carriles 7 y 8 se observa el genotipo homocigoto E4/ E4, y en el carril 9 se encuentra el control negativo.
Se asignaron los genotipos de la siguiente manera: genotipo homocigoto E2/E2: dos bandas: 91 pb y 83 pb (carril 1); genotipo heterocigoto E3/E2: cuatro bandas: 91 pb, 83 pb, 48 pb y 35 pb (carril 2); genotipo homocigoto E3/E3: tres bandas: 91 pb, 48 pb y 35 pb (carriles 3 y 4); genotipo heterocigoto E3/E4: cuatro bandas: 91 pb, 72 pb, 48 pb y 35 pb (carriles 5 y 6); genotipo homocigoto E4/E4: tres bandas: 72 pb, 48 pb y 35 pb (carriles 7 y 8); y genotipo heterocigoto E2/E4: cuatro bandas: 91 pb, 83 pb, 72 pb y 48 pb (no se observó el genotipo) (Figura 4) (11).
Estimación del equilibrio de Hardy Weinberg (H-W) para el polimorfismo -31118 G/A (rs1761667) del gen receptor CD36 y polimorfismos 388 T/C (rs429358) y 526 C/T (rs7412) del gen APOE
Se pudo constatar la existencia del equilibrio de Hardy-Weinberg tanto para el grupo de individuos controles (normopeso) como para el grupo de individuos obesos, en la distribución genotípica del sitio polimórfico estudiado en el gen del receptor CD36, al igual que en el gen APOE.
Distribución de las frecuencias genotípicas y alélicas alélica de los polimorfismos 388 T/C (rs429358) y 526 C/T (rs7412) del gen APOE en los dos grupos de adultos estudiados
Como se puede observar en la tabla 5 el alelo e3 del gen APOE es el más frecuente tanto para los individuos obesos (82,3%) como para los individuos normopeso (82%), en concordancia con Fernández-Mestre et al. (17) quienes indican que el alelo más común es el alelo e3, seguido por el alelo e2. Sin embargo, en el presente estudio el alelo e2 presentó una menor frecuencia en los individuos obesos y normopeso (3,6% y 5,7%, respectivamente), de igual forma los resultados obtenidos en esta investigación coinciden con los encontrados por Garcés et al. en adultos (18) y en niños con obesidad (19).
Tabla 5. Distribución de la frecuencia genotípica y alélica de los polimorfismos 388 T/C (rs429358) y 526 C/T (rs7412) del gen APOE en individuos obesos e individuos aparentemente sanos
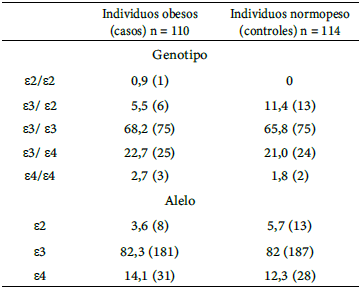
Nota. La frecuencia se muestra en porcentaje y entre paréntesis el número de individuos
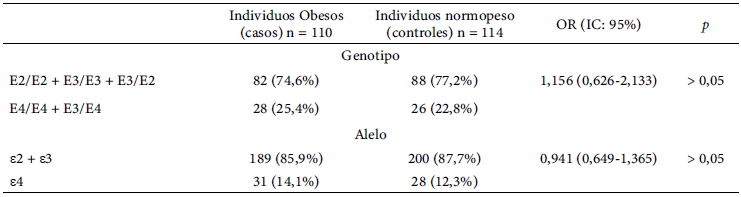
En los individuos obesos los genotipos E2/E2 + E3/3 + E3/E2 representan un 74,6% y los genotipos E4/E4 + E3/E4 un 25,4%, en los normopesos los genotipos E2/E2 + E3/3 + E3/E2 representan un 77,2% y los genotipos E4/E4 + E3/E4 un 22,8%.
No se observaron diferencias significativas en las frecuencias genotípicas entre los grupos en estudio (OR = 1,156, IC95% = 0,626 - 2,133, p > 0,05) ni en las frecuencias alélicas (OR= 0,941, IC95% = 0,649 - 1,365, p > 0,05) entre los grupos en estudio (tabla 6), lo que concuerda con lo notificado por Zarkesh et al. (20).
Tabla 6. Distribución genotípica y alélica de los polimorfismos 388 T/C (rs429358) y 526 C/T (rs7412) del gen APOE en individuos obesos y normopesos aparentemente sanos
Al comparar los individuos obesos tolerantes e intolerantes a las grasas, no se observó asociación entre la frecuencia genotípica (OR = 1,120, IC95% = 0,328 - 3,404, p > 0,05) y alélica (OR = 1,667, IC95% = 0,636 -4,371, p > 0,05) con el riesgo a desarrollar intolerancia a las grasas. No se encontró ninguna investigación que relacione directamente el riesgo a desarrollarla. No obstante, Das et al. (21) describieron que los individuos con el alelo e4 (tanto genotipo heterocigoto e3/e4 como homocigoto e4/ e4) poseían concentraciones significativamente mayores de triglicéridos basales, colesterol total y LDL-c, correspondientes con mayor ocurrencia de dislipidemia. En este estudio no se observó esta tendencia para los portadores obesos del alelo e4.
En cuanto a las comparaciones entre los individuos obsesos resistentes y no resistentes a la insulina, no se observó asociación entre la frecuencia genotípica (OR = 1,344, IC95% = 0,482 - 3,752) y alélica (OR = 1,498, IC95% = 0,581 - 3,867) y el riesgo a desarrollar resistencia a la insulina, en concordancia con Meigs et al. (22), quienes no encontraron una asociación significativa entre el polimorfismo del gen APOE y la resistencia a la insulina; sin embargo, Garces et al encontraron que los niños con resistencia a la insulina portadores del genotipo e3/e4 presentaban un OR igual a 5,6 con un IC 95%= 1,2 – 29,5 concluyendo que tienen riesgo de padecer la enfermedad (19). Todo lo anteriormente expuesto se puede explicar debido a que el tejido adiposo en los obesos es insulino-resistente, lo que eleva los ácidos grasos libres en plasma. A su vez, éstos tienen un efecto directo en los órganos diana de la insulina (por ejemplo, el hígado), mediante acciones específicas que bloquean la señalización intracelular del receptor de insulina. Este fenómeno, bien conocido como lipotoxicidad, podría ser el responsable de la RI en el órgano y la falta de regulación pancreática a la glicemia elevada (23).
Al comparar los parámetros bioquímicos de los individuos obesos agrupados según los polimorfismos del gen APOE, se puede observar que los pacientes obesos que poseen el genotipo homocigoto e4/e4 presentan un IMC mayor en comparación con los demás genotipos, al igual que para los valores de glicemia basal. Los parámetros de colesterol total y LDL-c, se observaron incrementados en los individuos con genotipo homocigoto e3/e3 en comparación a los individuos con otros genotipos. Con respecto al valor de insulina y triglicéridos basales, 2 horas y 4 horas posprandiales se encontraron incrementados en los portadores del genotipo homocigoto e2/e2 + heterocigoto e3/e2.
Finalmente, Hagberg et al. (24) mostraron que el alelo e4 está asociado con concentraciones elevadas de colesterol y LDL-c, en comparación con el alelo e2 que se asocia con concentraciones disminuidas de los mismos. Lo anteriormente expuesto, se correlaciona con los resultados obtenidos en este estudio, donde se observa que los portadores del genotipo e4/e4 poseen valores incrementados de colesterol y LDL-c en comparación con los portadores del genotipo e2/e2.
Conclusiones
Los individuos obesos presentan alteraciones en sus índices aterogénicos, lo que incrementa su riesgo de desarrollar enfermedades cardiovasculares. Entre los genes estudiados, se observó que el genotipo G/A del polimorfismo -31118 G/A (rs1761667) del gen CD36 es el más frecuente en individuos tanto obesos como normopeso, mientras que el genotipo G/G es el menos común. En cuanto al gen APOE, el genotipo e3/ e3 de las variantes 388 T/C (rs429358) y 526 C/T (rs7412) es el más frecuente en ambos grupos, y el genotipo e4/ e4 es el menos común. En cuanto a la frecuencia alélica, el alelo e3 es el más común para ambos grupos.
No se encontró asociación significativa entre el polimorfismo -31118 G/A (rs1761667) del gen CD36 y las variantes 388 T/C (rs429358) y 526 C/T (rs7412) del gen APOE con el desarrollo de obesidad, intolerancia a las grasas o resistencia a la insulina. Es posible que otros polimorfismos de estos genes estén involucrados en estos trastornos metabólicos. Por lo tanto, se recomienda realizar estudios adicionales que incluyan otros polimorfismos genéticos y un mayor tamaño de muestra para obtener conclusiones más definitivas. Determinar si existe una asociación entre estos polimorfismos y las enfermedades mencionadas permitiría tomar medidas tempranas en individuos con mayor riesgo para prevenir su desarrollo y sus consecuencias.
Referencias
- World Health Organization (WHO). Obesidad y sobrepeso [Internet]. [citado 24 de marzo de 2023]. Disponible en: https://www.who.int/es/news-room/fact-sheets/detail/obesity-and-overweight
- Manuel Moreno G. Definición y clasificación de la obesidad. Rev médica Clín Las Condes 2012;23(2):124-128. Disponible en: http://dx.doi.org/10.1016/s0716-8640(12)70288-2
- Pietka TA, Schappe T, Conte C, Fabbrini E, Patterson BW, Klein S, et al. Adipose and muscle tissue profile of CD36 transcripts in obese subjects highlights the role of CD36 in fatty acid homeostasis and insulin resistance. Diabetes Care 2014;37(7):1990-1997. Disponible en: http://dx.doi.org/10.2337/dc13-2835
- Marais AD. Apolipoprotein E in lipoprotein metabolism, health and cardiovascular disease. Pathology 2019;51(2):165-176. Disponible en: http://dx.doi.org/10.1016/j.pathol.2018.11.002
- Dixit M, Bhattacharya S, Mittal B. Association of CETP TaqI and APOE polymorphisms with type II diabetes mellitus in North Indians: a case control study. BMC Endocr Disord 2005; 5(1):7. Disponible en: http://dx.doi.org/10.1186/1472-6823-5-7
- Xu CF, Talmud PJ, Angelico F, Del Ben M, Savill J, Humphries SE. Apolipoprotein E polymorphism and plasma lipid, lipoprotein, and apolipoprotein levels in Italian children: Apo E Polymorphism in Children. Genet Epidemiol 1991;8(6):389-398. Disponible en: http://dx.doi.org/10.1002/gepi.1370080605
- Srivastava N, Achyut BR, Prakash J, Agarwal CG, Pant DC, Mittal B. Association of cholesteryl ester transfer protein (TaqIB) and apolipoprotein E (HhaI) gene variants with obesity. Mol Cell Biochem 2008;314(1-2):171-177. Disponible en: http://dx.doi.org/10.1007/s11010-008-9778-5
- Welsh K, Bunce M. Molecular typing for the MHC with PCR-SSP. Rev Immunogenet 1999;1(2):157-176. [citado 24 de marzo de 2023]. Disponible en: https://pubmed.ncbi.nlm.nih.gov/11253945/
- Banerjee M, Gautam S, Saxena M, Bid HK, Agrawal CG. Association of CD36 gene variants rs1761667 (G>A) and rs1527483 (C>T) with Type 2 diabetes in North Indian population. Int J Diabetes Mellit 2010;2(3):179-183. Disponible en: http://dx.doi.org/10.1016/j.ijdm.2010.08.002
- Salim S, Kartawidjajaputra F, Suwanto A. Association of FTO rs9939609 and CD36 rs1761667 with visceral obesity. J Nutr Sci Vitaminol (Tokyo) 2020;66(Supplement):S329-335. Disponible en: http://dx.doi.org/10.3177/jnsv.66.S329
- Hixson JE, Vernier DT. Restriction isotyping of human apolipoprotein E by gene amplification and cleavage with HhaI. J Lipid Res 1990;31(3):545-548. [citado 24 de marzo 2023]; Disponible en: https://pubmed.ncbi.nlm.nih.gov/2341813/
- Ramos Arellano LE, Muñoz-Valle JF, de la Cruz Mosso U, Salgado Bernabe AB, Castro Alarcon N, Rojas IP. Circulating CD36 oxLDL levels are associated with cardiovascular risk factors in young subjects: a case- control study. BMC Cardiovasc Disord 2014;14:54. http://dx.doi.org/10.1186/1471-2261-14-54.
- Ramos-Arellano LE, Salgado-Bernabé AB, Guzmán-Guzmán IP, Salgado-Goytia L, Muñoz-Valle JF, Parra-Rojas I. CD36 haplotypes are associated with lipid profile in normal-weight subjects. Lipids Health Dis 2013;12(1):167. Disponible en: http://dx.doi.org/10.1186/1476-511X-12-167
- Ramos O, Panduro A. Genetic variant in the CD36 gene (rs1761667) is associated with higher fat intake and high serum cholesterol among the population of west Mexico. J Nutr Food Sci 2015;05(02). Disponible en: http://dx.doi.org/10.4172/2155-9600.1000353
- Love-Gregory L, Abumrad NA. CD36 genetics and the metabolic complications of obesity. Curr Opin Clin Nutr Metab Care 2011;14(6):527-534. Disponible en: http://dx.doi.org/10.1097/MCO.0b013e32834bbac9
- Love-Gregory L, Sherva R, Schappe T, Qi J-S, McCrea J, Klein S, et al. Common CD36 SNPs reduce protein expression and may contribute to a protective atherogenic profile. Hum Mol Genet 2011;20(1):193-201. Disponible en: http://dx.doi.org/10.1093/hmg/ddq449
- Fernández-Mestre MT, Yehirobi C, Montagnani S, Balbas O, Layrisse Z. Genetic variability of Apolipoprotein E in different populations from Venezuela. Dis Markers 2005;21(1):15-19. Disponible en: http://dx.doi.org/10.1155/2005/625182
- Garcés MF, Cerviño M, Recio D, Révai E, Piedra I. Polimorfismo Pro12Ala del gen PPARg2, Ala54Thr del gen FABP2 y polimorfismos del gen de la Apolipoproteína E en habitantes del sector “Los Eucaliptos” de la parroquia San Juan, municipio Libertador. Acta Científ Soc Venez Bioanalistas Espec 2013;16(1):28-40. [citado 08 de Abril 2023]; Disponible en: http://saber.ucv.ve/ojs/index.php/rev_ACSVBE/article/view/18613
- Garcés María Fátima, Najm Cristina, Figueroa Daniela, López Ana, De Abreu Jorge, Dini Elizabeth et al . Polimorfismos del gen de apolipoproteína E y polimorfismo Pro12Ala del gen PPARγ-2 en niños pre-puberes con factores de riesgo cardiometabólicos. Arch Venez Puer Ped [Internet]. 2012;75(3):75-83. [citado 08 de Abril 2023]; Disponible en: http://ve.scielo.org/scielo.php?script=sciγ arttext&pid=S0004-06492012000300005&lng=es.
- Zarkesh M, Daneshpour MS, Faam B, Hedayati M, Azizi F. Is there any association of apolipoprotein E gene polymorphism with obesity status and lipid profiles? Tehran Lipid and Glucose Study (TLGS). Gene 2012;509(2):282-285. Disponible en: http://dx.doi.org/10.1016/j.gene.2012.07.048
- Das M, Pal S, Ghosh A. Apolipoprotein E gene polymorphism and dyslipidaemia in adult Asian Indians: A population based study from Calcutta, India. Indian J Hum Genet 2008;14(3):87-91. Disponible en: http://dx.doi.org/10.4103/0971-6866.45000
- Meigs JB, Ordovas JM, Cupples LA, Singer DE, Nathan DM, Schaefer EJ, et al. Apolipoprotein E isoform polymorphisms are not associated with insulin resistance: the Framingham Offspring Study. Diabetes Care 2000;23(5):669-674. Disponible en: http://dx.doi.org/10.2337/diacare.23.5.669
- Martínez R G, Alonso K R, Novik A V. Síndrome metabólico: Bases clínicas y fisiopatológicas para un enfoque terapéutico racional. Rev Med Chil 2009;137(5). Disponible en: http://dx.doi.org/10.4067/s0034-98872009000500014
- Hagberg JM, Wilund KR, Ferrell RE. APO E gene and gene-environment effects on plasma lipoprotein-lipid levels. Physiol Genomics 2000;4(2):101-108. Disponible en: http://dx.doi.org/10.1152/physiolgenomics.2000.4.2.101