Introducción
La microbiota vaginal (MV) comprende un conjunto de microorganismos que, relacionados de manera simbiótica con el hospedero, permiten la protección contra agentes externos potencialmente patógenos. A lo largo de la vida reproductiva de la mujer, esta microbiota varía en su composición, de acuerdo a los cambios fisiológicos que se producen en las diferentes etapas de su vida, favoreciendo la proliferación exacerbada de algunos microorganismos de su ecosistema (1). La vulvovaginitis candidiásica (VVC) es muy común en las mujeres adultas, con un pico máximo de incidencia entre los 20 y 40 años. Se calcula que a los 25 años el 50% de las mujeres habrá tenido al menos un episodio de VVC, y en la mayoría de los casos la especie responsable es Candida albicans (C. albicans), que forma parte de la MV de la mucosa vaginal (2,3).
Candida albicans sobrevive a los cambios en el ambiente que la rodea gracias a sus factores de virulencia, los cuales son garantes de cubrir este requerimiento fundamental y de potenciar su patogenicidad. Entre estos factores se encuentran la formación de hifas o pseudohifas (pleomorfismo), capacidad de adherencia al epitelio celular (adhesinas), secreción de enzimas hidrolíticas, respuesta al estrés oxidativo y osmótico, y la formación de biopelículas (4). Las biopelículas son un conjunto de microorganismos embebidos en una envoltura cuyo componente principal son los exopolisacáridos. Esta asociación le permite al hongo resistir las agresiones físicas y químicas (agentes antifúngicos), garantizando su persistencia en el hospedero (5,6). Entre otras agresiones a las que deben hacer frente las levaduras del género Candida para perpetuarse en el tejido se encuentran las especies reactivas al oxígeno (ERO), generadas por el sistema inmune durante el estallido respiratorio, así como los cambios en la salinidad del medio (3).
Actualmente, la falla terapéutica de la VVC con fluconazol (FL), considerado como el tratamiento convencional o de primera línea de esta infección, se ha traducido en un aumento de su morbilidad y de la aparición de episodios recurrentes que afectan la calidad de vida de la mujer (2,7). Adicionalmente, el crecimiento de Candida spp. incrustadas en una matriz rica en exopolisacáridos dificulta la penetración de los agentes antifúngicos, lo que le proporciona resistencia y persistencia en la mucosa vaginal. La formación de biopelículas por parte de C. albicans ha sido observada en modelos in vivo de VVC, en modelos ex vivo de tejido vaginal reconstituido y en cultivos in vitro de líneas de células epiteliales (8).
Con base en lo antes planteado, esta investigación busca evaluar la formación de biopelículas y sus expresiones en la pared celular (exopolisacáridos), la sensibilidad al estrés osmótico y al estrés oxidativo como factores de virulencia en aislados de C. albicans provenientes de secreciones vaginales de pacientes con VVC, así como también el comportamiento de C. albicans en su estado planctónico frente a los antifúngicos para el tratamiento de este cuadro clínico.
Materiales y Métodos
Para esta investigación se diseñó un estudio retrospectivo, descriptivo y experimental. Se procesaron 19 aislados de C. albicans provenientes de flujo vaginal de pacientes femeninas con diagnóstico de VVC durante el período 2015-2017. Los aislados se mantuvieron conservados en agua destilada por el método de Castellani (9) en la Micoteca del Departamento de Microbiología del Instituto Médico la Floresta y fueron escogidos de forma intencional y no probabilística.
Recuperación y viabilidad de los aislamientos: se tomó una alícuota de cada vial de preservación de los aislados, se inoculó en caldo infusión cerebro-corazón (BHI, Oxoid-USA), y fueron incubados durante 24-48 horas a 35 °C. Posteriormente se realizó un repique de cada uno en agar Sabouraud dextrosa (SBD) y agar cromogénico (Oxoid) incubándose nuevamente a 35 ºC por 48 horas, a fin de verificar su viabilidad y pureza.
Identificación de cepas productoras de biopelículas por cuatro métodos: de los aislados obtenidos, previa verificación de viabilidad y pureza, se preparó una suspensión en solución salina estéril al 0,85% a una concentración de 0,5 McFarland (1-5 x 10⁶ UFC/mL). De esta suspensión se tomaron 200 µl y se colocaron en 19,8 mL de caldo SBD obteniendo una dilución de 1:100.
1.1. Método en laminillas de vidrio con cristal violeta: se utilizaron 3 laminillas de vidrio de borosilicato (LVBS), esterilizadas por flameado y colocadas en placas de Petri estériles por cada aislado. Se añadieron 14 mL de la dilución en caldo de SBD (1:100) y se incubaron a 35 ºC por48 horas. Posteriormente se decantó el caldo inoculado, y se realizaron 3 lavados sucesivos con buffer fosfato tamponado (PBS) a pH 7,4. Luego se agregaron 15 mL de cristal violeta (CV) al 1% por 10 minutos. A continuación, se decantó el CV y se realizaron 3 lavados con PBS. Se retiraron las laminillas, se colocaron sobre un portaobjetos y se observaron al microscopio óptico con un aumento de 400X. La formación de biopelículas se interpretó cualitativamente como ausente, agregación débil, moderada o fuerte (10).
1.2. Método en tubo con cristal violeta: se usaron tubos de plástico de polipropileno (TPP) por triplicado para cada aislado, se les agregó 1,5 mL de la dilución en caldo SBD (1:100) a cada tubo y se incubaron a 35 ºC por 48 horas. Transcurridas las 48 horas de incubación, se decantó el caldo inoculado, y se realizaron 3 lavados con PBS. Luego se agregaron 2 mL de metanol para fijar por 30 minutos. Posteriormente se decantó el metanol y se realizaron 3 lavados con PBS. Se agregaron 2 mL de CV al 1% para colorear por 30 minutos, luego se decantó el colorante y se realizaron 3 lavados con PBS. La formación de biopelículas se interpretó de manera cualitativa como ausente, intensidad débil, moderada o fuerte, de acuerdo al color observado en el tubo (11).
1.3. Método en placa de microtitulación de poliestireno con cristal violeta: se utilizaron microplacas de poliestireno (MPS), en cuyos pocillos se añadieron 200 µL de la dilución en caldo de SBD (1:100) de cada aislado por triplicado; las microplacas se cubrieron con papel Parafilm® (BemisTM HS234526C) y se incubaron a 35 ºC por 48 h. El caldo inoculado fue decantado y los pocillos fueron lavados 3 veces con PBS. Se agregaron 200 µL de metanol para fijar por 30 minutos. El metanol se decantó y se lavaron los pocillos 3 veces con PBS. A continuación, se agregaron 200 µL de CV al 1% por 30 minutos. Luego se decantó el CV y se realizaron 3 lavados con PBS. Posteriormente se le agregó a cada pocillo 200 µL de etanol al 96%, se dejó reposar por 5 minutos, y se procedió a leer la densidad óptica (DO) a 490 nm en un lector de microplacas de ELISA (iMarktm, Microplate Reader). Para la interpretación de los resultados, se utilizó la clasificación establecida por Stepanovic, et al., (12) para la formación de biopelículas: no formadoras (DO ≤ DOc); poco formadoras (DOc
1.4. Evaluación de los cambios de la pared celular implicados en la formación de la matriz de exopolisacaridos: se preparó una suspensión en solución salina al 0,85%, ajustándose a un patrón de turbidez de 0,5 McFarland, de los aislados provenientes de 24 horas de incubación en agar SBD. De esta suspensión se tomaron 100 µL y se vertieron en placas de agar SBD suplementadas con 0,025% del indicador rojo Congo, estriándolas por agotamiento para incubarlas posteriormente a 35 ºC por 48 horas. La prueba se interpretó de acuerdo al cambio de color característico de los aislados capaces de producir o no exopolisacáridos. Las colonias que se tornaron rojas se consideraron positivas y las que se mantuvieron de color blanco se consideraron negativas (13).
- Evaluación de la respuesta al estrés oxidativo: se preparó una suspensión en solución salina al 0,85%, ajustándose a un patrón de turbidez de 0,5 McFarland, de los aislados provenientes de 24 horas de incubación en agar SBD. De esta suspensión se tomaron 100 µL y se vertieron en placas de agar Müller–Hinton modificado (2% de glucosa + 0,5 µg/ mL de azul de metileno). Con un hisopo estéril de distribuyó la suspensión uniformemente por toda la placa en 3 direcciones diferentes, se dejó secar por 10 minutos y se colocó un disco blanco estéril de papel de filtro de 6 mm de diámetro (Whatman N° 1) en el centro de la placa, que se impregnó con 10 µL de peróxido de hidrógeno (H2O2) al 3%. Las placas se incubaron a 35 °C por 48 horas. La respuesta al H2O2 de las cepas en estudio se interpretó según el diámetro del halo de inhibición de crecimiento de las mismas en torno al disco impregnado con el agente oxidante, el cual debe ser mayor a 7 mm, de acuerdo a las consideraciones de Hassett y col. (14). Todas las cepas fueron ensayadas por triplicado.
- Evaluación de la respuesta al estrés osmótico: se tomó una pequeña porción de los aislados provenientes de 24 h de incubación en agar SBD y se transfirió a los tubos que contenían caldo salado a concentraciones de 1,5%, 3,0% y 6,5% (las tres concentraciones por cada cepa en estudio). Los tubos se incubaron a 35 °C por 48 horas. La interpretación de la prueba se realizó mediante la observación de presencia o ausencia de turbidez en el medio de caldo salado (15).
- Evaluación de la susceptibilidad a los antifúngicos: se utilizó la metodología descrita en el documento M27-A4 del Instituto de Estándares Clínicos y de Laboratorio (Clinical and Laboratory Standards Institute, CLSI)(16,17) paraevaluarlasusceptibilidad de los aislados a fluconazol (FL), voriconazol (VO), itraconazol (IT) y anfotericina B (AB). Se utilizó un inóculo a una concentración final de 1,5 ± 1,0 × 10³ cel/mL en medio RPMI-1640 + 2% de glucosa incubado a 35 ºC durante 24-48 horas. El valor de la Concentración Mínima Inhibitoria (CMI) para FL, VO e IT se interpretó como inhibición del crecimiento de ≤ 50% y para AB como 100% de inhibición del crecimiento con respecto al control de crecimiento. Los criterios de interpretación de las pruebas de susceptibilidad fueron: susceptible (S), susceptible dosis dependiente (SDD), intermedio (I) y resistente (R), de acuerdo a los puntos de corte clínicos establecidos por el documento en μg/mL. FL: S= ≤2; SDD= 4; R= ≥8. VO: S= ≤01.25; I=0.25-0.5; R= ≥1. IT: S= ≤0.125; SDD= 0.25-0.5; R= ≥1. Para AB: S: ≤1; R: ≥2 (18). Para AB se utilizaron los puntos de corte epidemiológicos sugeridos por Pfaller et al. (17), debido a que el documento M27-A4 no ha establecido aun puntos de corte clínico: S = ≤ 1; R = ≥ 2.
Control de calidad: para el control de calidad de los medios de cultivo y las pruebas de susceptibilidad de los aislados se utilizaron las cepas de la Colección Americana de Cultivos Tipo (American Type Culture Collection, ATCC®: Candida parapsilosis (ATCC 22019), Candida krusei (ATCC 6258) y Candida albicans (ATCC 14053).
Análisis de los datos: todas las variables fueron descritas utilizando porcentajes. Para comparar los resultados obtenidos entre las diferentes técnicas convencionales utilizadas en la detección de biopelículas se utilizaron las pruebas de X2 y el análisis de varianza (ANOVA) no paramétrico de Kruskal Wallis, usando el programa Statgraphics Centurion XVII.
Resultados
De acuerdo a los datos demográficos recopilados, las edades de las 19 pacientes con VVC por C. albicans oscilaron entre 20 y 45 años de edad, con una media de 31,1 años.
Identificación de cepas productoras de biopelículas: al evaluar la capacidad de formación de biopelículas de los aislados en estudio, se pudo observar que todos ellos formaron biopelículas en LVBS: agregación débil n=14 (73,68 %), agregación moderada n=2 (10,53 %) y agregación fuerte n=3 (15,79 %). La formación de malla mostró la presencia cualitativa de exopolisacáridos, estructura típica de formación de biopelículas (Figura 1). Al evaluar la formación de biopelículas en TPP, todos los aislados ensayados también fueron capaces de formar biopelículas:
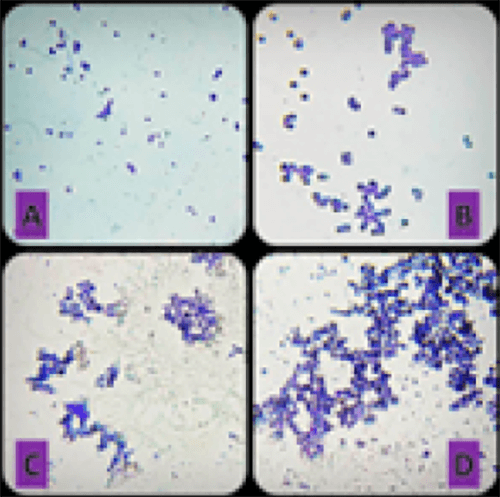
Figura 1. Método en laminillas de vidrio con cristal violeta. A: aislados sin agregación. B: aislado con agregación débil. C: aislado con agregación moderada. D: aislado con agregación fuerte.
intensidad débil n=13 (68,42%), intensidad moderada n=3 (15,79%) e intensidad fuerte n=3 (15,79%) (Figura 2). Por el método en MPS, todos los aislados formaron biopelículas: formadores débiles n=1 (5,26%); formadores moderados n=10 (52,63%) y formadores fuertes n=8 (42,11%)(Figura 3).
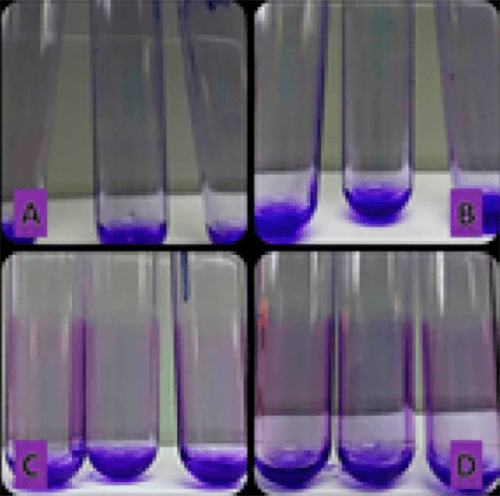
Figura 2. Método en tubos de poliestireno con cristal violeta. A: aislado sin intensidad. B: aislado con intensidad débil. C: aislado con intensidad moderada.D: aislado con intensidad fuerte.
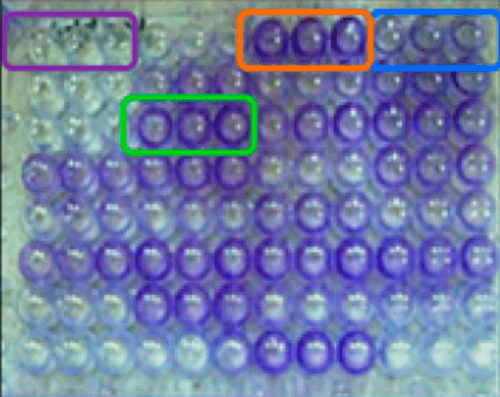
Figura 3. Método en microplaca de poliestireno con cristal violeta. Control negativo: contorno morado. Aislado formador débil: contorno azul. Aislado formador moderado: contorno verde. Aislado formador fuerte: contorno naranja.
Si bien las tres técnicas utilizadas ponen de manifiesto la producción de biopelículas, al comparar las técnicas de LVBS y TPS frente a la técnica de MPS (considerada la técnica de referencia), se obtuvo que los resultados de estas técnicas no se correlacionaron con los obtenidos por la técnica de referencia, por lo tanto, no son comparables (p=0,4944 para la técnica de LVBS y p=0,0698 para la técnica TPS, respectivamente). Sin embargo, al comparar la técnica de LVBS frente a la técnica de TPS los resultados obtenidos por ambas fueron concordantes entre sí, por lo tanto, las técnicas son comparables (p=0,000). Estos resultados indican que las técnicas de LBVS y TPS podrían ser utilizadas en el laboratorio de microbiología de rutina como pruebas pantalla para la determinación de formación de biopelículas, tomando en cuenta que los resultados interpretados como agregación débil y moderada (por LBVS) e intensidad débil y moderada (por TPS) deben ser confirmados por la técnica de referencia MPS.
Ahora bien, la pared celular de las especies de Candida puede presentar modificaciones para adaptarse a los cambios que ocurren en el entorno, así como daños en su estructura cuando son sometidos a compuestos químicos como el rojo Congo, el cual pone de manifiesto la presencia de formación o no de exopolisacáridos. En el presente estudio los 19 aislados de C. albicans por esta técnica fueron 100% positivos, mostrando entonces capacidad para adaptarse a situaciones adversas (Figura 4).
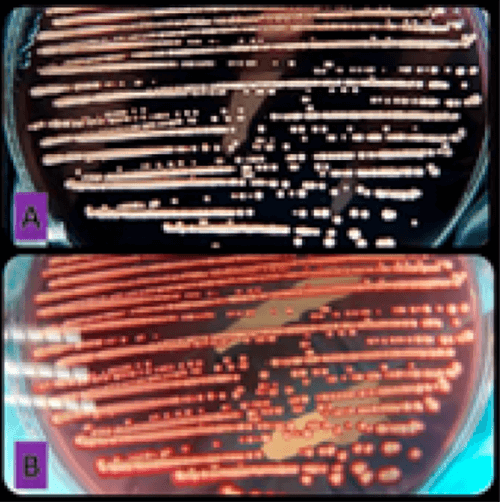
Figura 4. Cambio de color de la pared celular frente al compuesto químico rojo Congo en agar Sabouroud dextrosa, expresando la presencia o no de exopolisacáridos. A: cepa negativa, colonias blancas que no absorbieron ni metabolizaron el rojo Congo. B: cepa positiva, colonia rosado intenso indicando absorción y metabolización del rojo Congo.
- Evaluación de la respuesta al estrés oxidativo: todos los aislados evaluados exhibieron halos mayores a 7 mm, oscilando entre 20 y 84 mm, frente al H2O2 (Figura 5), evidenciando una buena respuesta (actividad o resistencia) frente a las condiciones experimentales de estrés oxidativo a las que fueron expuestos in vitro.
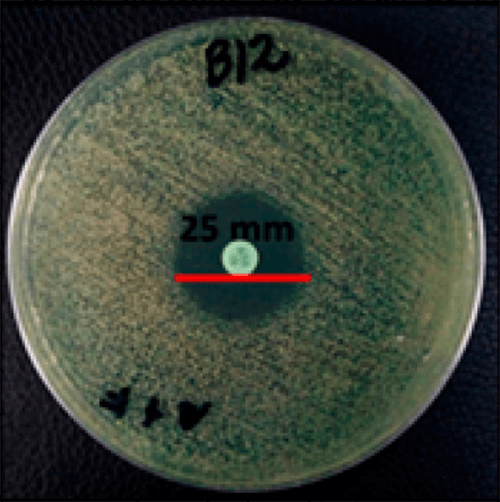
Figura 5. Halo de 25 mm de inhibición en cepa de C. albicans frente a H2O2
- Evaluación de la respuesta al estrés osmótico: se observó que 10 aislados (52,63 %) de C. albicans fueron capaces de sobrevivir a concentraciones de NaCl de 1,5 % y 9 de ellos (47,37 %) no sobrevivieron; 2 aislados (10,53%) de C. albicans sobrevivieron a concentraciones de NaCl al 3 % y 17 (89,47 %) no sobrevivieron; solo 1 aislado (5,26%) de C. albicans fue capaz de sobrevivir a concentraciones de NaCl al 6%, mientras que 18 (94,74 %) no sobrevivieron a esa concentración (Figura 6). Estos resultados evidenciaron que los aislados de C. albicans ensayados en este estudio mostraron escasa respuesta frente a las condiciones de estrés osmótico a las que fueron sometidos in vitro.
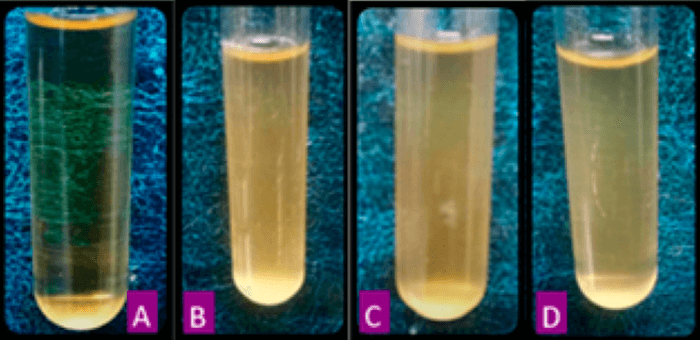
Figura 6. Tolerancia de C. albicans a NaCl a diferentes concentraciones. A: Control negativo de crecimiento en NaCl. B: cepa con crecimiento a 1,5% de NaCl. C: cepa con crecimiento a 3% de NaCl. D: cepa con crecimiento a 6% de NaCl.
- Evaluación de la susceptibilidad a los antifúngicos: en la tabla 1 se muestran los resultados de las CMI de los 19 aislados de C. albicans a los cuatro antifúngicos ensayados en este estudio. Es importante destacar que todos los aislados fueron sensibles a AB, mientras que presentaron una elevada resistencia del 89,5% a los azoles, observándose presencia de resistencia cruzada entre los mismos.
Tabla 1. Concentración Mínima Inhibitoria en µg/mL a 4 antifúngicos por el método de microdilución en caldo (n=19)
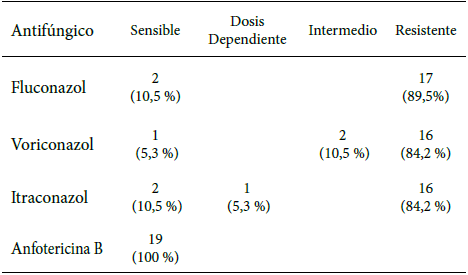
Al comparar este perfil de susceptibilidad con la formación de biopelículas en su estado planctónico, se obtuvo que la formación de biopelículas fue independiente de la sensibilidad o resistencia de los aislados de C. albicans, específicamente a FL, VO e IT (p>0.05).
La formación de biopelículas como factor de virulencia en C. albicans fue evaluado en el presente estudio a través de diferentes métodos. Mediante la técnica de LVBS se demostró la capacidad de formar agregados fúngicos en menor o mayor grado al ser observadas al microscopio óptico, exponiendo las propiedades de adherencia a este tipo de superficie. La visualización de la formación de biopelículas utilizando la técnica de TPP también fue analizada en esta investigación donde el 100% de los aislados formó biopelículas de acuerdo a las clasificaciones establecidas, siendo la formación débil la de mayor porcentaje de agregación (68,42%). Merino y col., demostraron la formación de biopelículas por C. albicans en todos los escenarios ensayados utilizando medios de cultivos, condiciones de pH y diferentes temperaturas; estos ensayos determinaron que C. albicans tiene una gran capacidad de aglomerarse y resistir condiciones adversas (18). En un estudio, donde se evaluaron seis especies de Candida, aisladas de muestras de pacientes con pie diabético por la técnica de TPP, tres de ellas formaron biopelículas (19). Tossello y col., (20) analizaron 29 especies de Candida (de diferentes procedencias anatómicas) y 21 de ellas formaron biopelículas.
En el presente estudio, los resultados de formación de biopelículas obtenidos por las técnicas cualitativas en LVBS y TPP mostraron que en ambas hubo agregación débil, lo que sugiere que estas dos técnicas podrían implementarse en un laboratorio de microbiología de rutina como prueba inicial o pantalla para determinar la formación de biopelículas, pero estos resultados deben ser confirmados por la técnica de referencia MPS. La técnica en microplaca (MPS) para el estudio de formación de biopelículas es la más utilizada, ya que permite obtener lecturas de la DO con resultados cuantitativos, lo que se traduce en una mayor precisión y menor probabilidad de error. Diferentes estudios utilizaron esta técnica, observando que la producción de biopelículas como factor de virulencia en C. albicans, estaba asociado con la presencia de VVC (21,22), resultados que coinciden con los de esta investigación.
La técnica en LVBS como superficie hidrófila y de TPP como superficie hidrófoba detectaron la formación de biopelículas en menor o mayor grado durante la realización del estudio; esto pudiera deberse a que la unión de las estructuras fúngicas a superficies, bien sea hidrofóbicas como plásticos y teflón, o superficies hidrofílicas como vidrios y metales, va a depender de la capacidad de adherencia presente en cada aislado estudiado. Esta adherencia no solo va a depender de la producción de biopelículas, sino también de la producción de enzimas como las proteasas SAP1 y SAP2 presentes en C. albicans, asociadas a la mucosa vaginal, y que no fueron evaluadas en este estudio (23,24).
Todos los aislados de C. albicans evaluados en agar SBD con rojo Congo absorbieron el colorante como indicador, tornándose de color rosado intenso a rojo, demostrando la presencia de exopolisacáridos y la capacidad de sobrevivir a la acción agresiva de factores químicos sobre su pared. La presencia de exopolisacáridos viene hermanada con la capacidad de formar biopelículas, por lo que estos aislados son capaces de agregarse para perpetuarse en órganos y tejidos. Bravo et al. (13), Kaiser et al. (25) y Noumia et al. (26), utilizaron rojo Congo como indicador para observar la expresión de exopolisacáridos en cepas de Plesiomonas shigelloides, Staphylococcus epidermidis y Candida spp., respectivamente, evidenciando la capacidad de las mismas de expresar exopolisacáridos ante agresiones a su pared celular y favoreciendo la formación de biopelículas, resultados que concuerdan con los de esta investigación respecto al método utilizado, independientemente del microrganismo evaluado.
Las ERO son otro obstáculo que deben flanquear las levaduras para establecerse en un ambiente determinado y son utilizadas por el sistema inmunitario para atacar y erradicar patógenos. El estrés oxidativo ocurre como consecuencia de un aumento o disminución en la síntesis de degradación de las ERO. El H2O2 (catalasa) es un radical libre producto del metabolismo aerobio de las ERO como respuesta a estímulos externos e internos. En el genoma de C. albicans la presencia del gen CAT1 codifica la catalasa citoplasmática y varios estudios han determinado que especies mutantes de CAT1, muestran una mayor susceptibilidad frente a H2O2 a altas temperaturas (27), resultados similares a los obtenidos en esta investigación, donde las cepas de C. albicans ensayadas mostraron buena respuesta in vitro frente a H2O2 al 3% a 35 ºC, evidenciando buena tolerancia al estrés oxidativo.
El potencial fungicida del H2O2 fue comprobado por Hernández et al., al someter biopelículas formadas en cepillos dentales a una concentración de H2O2 al 3%. Los cepillos mostraron una considerable disminución de las biopelículas que se habían formado previamente al introducir los cepillos en H2O2 al 3%, resultado que fue evaluado cualitativamente mediante la observación en el ensayo de la presencia o ausencia de turbidez (28). En esta investigación todos los aislados de C. albicans fueron sometidos a concentraciones de H2O2 al 3% en un medio sólido, formando halos de inhibición de crecimiento entre 20 mm y 84 mm de diámetro, evidenciándose que los aislados de C. albicans mostraron buena actividad frente al H2O2 al 3%, tolerando muy bien el estrés oxidativo a esa concentración. El H2O2 al 3% tiene acción limitada debido a que es inhibido por la catalasa de los microorganismos y los tejidos (28), por lo que se sugiere evaluar estos aislados a concentraciones de 6% y 10% de H2O2, para poder entender mejor el comportamiento de este mecanismo de virulencia en C. albicans como causante de VVC.
El estrés osmótico presente en el medio ambiente que rodea a las células es responsable de provocar cambios en sus rutas metábolicas, permitiendo compensar las deficiencias y sobrevivir a las condiciones adversas a las que se ven sometidas. Cuando las concentraciones de sales en el exterior celular son mayores a las del interior, la célula pierde agua para balancear la concentración de solutos intra y extracelularmente. Esta ruta es denominada HOG (High Osmolarity Glycerol) y permite que, a través de la fosforilación de un grupo de proteínas se inicie la síntesis intracelular de glicerol, acumulándose en el interior de la célula y aumentando la turgencia de la misma. Se ha demostrado que especies del género Candida, han desarrollado la ruta HOG para sobrevivir al estrés osmótico (29).
Enjalbert et al. (29), a elevadas concentraciones de sales, indujeron la expresión de 95 genes en C. albicans, confiriéndole capacidad para sobrevivir a elevadas concentraciones de sales. Marotta et al., sometieron cepas de Candida spp. a concentraciones elevadas de sal, y, además de evaluar su respuesta, determinaron la activación del gen Sko1 que permitía a la levadura mantener su turgencia a pesar de la salinidad del medio (30). En el presente estudio, se pudo observar que a bajas concentraciones de sal (1,5%), más del 50% de los aislados de C. albicans ensayados fueron capaces de sobrevivir, pero este porcentaje disminuyó de forma importante a medida que la concentración de sal aumentaba, lo que indicó una baja tolerancia de las mismas a las condiciones de estrés osmótico.
Los diferentes factores de virulencia evaluados en el presente estudio, específicamente la presencia de biopelículas, pueden contribuir a la falla terapéutica en el tratamiento de la VVC por C. albicans (8). Sin embargo, en este estudio, las pruebas de susceptibilidad a los antifúngicos fueron realizadas en aislados de C. albicans en su estado planctónico y no se demostró relación entre la resistencia a los antifungicos probados, específicamente los azoles, y la formación de biopelículas. Este resultado probablemente pudo deberse al limitado número de aislados de C. albicans ensayados.
La elevada resistencia a FL obtenida en esta investigación indicó que los aislados ensayados no respondieron bien a este antifúngico in vitro. Debido a la ausencia de datos epidemiológicos y clínicos no fue posible comparar estos resultados con la sintomatología del paciente, y así conocer si se trataba del primer episodio de VVC o de una recurrencia; esta última probablemente explicaría la resistencia FL obtenida.
Los aislados de C. albicans de este estudio también presentaron resistencia in vitro a otros antifúngicos sistémicos como IT y VO, sugiriendo que probablemente estos aislados estuvieron expuestos a FL por tiempo prolongado y de allí el desarrollo de resistencia cruzada, pero se necesita de un mayor número de aislados y datos demográficos para poder esclarecer esta hipótesis. En cuanto a la AB, los resultados in vitro mostraron que sería una alternativa terapéutica para la VVC, pero este antifúngico no posee presentación oral. Una alternativa es la nistatina, un antifúngico perteneciente a la misma familia que la AB (poliénicos), el cual tiene presentación tópica y pudiera ser utilizado como tratamiento de segunda línea en pacientes con VVC recurrente, asociada a la presencia de biopelículas por C. albicans (6,8,31).
Los resultados obtenidos en esta investigación evidenciaron que la formación de biopelículas, así como el estrés oxidativo y osmótico, son factores de virulencia que contribuyen al establecimiento de la VVC, a pesar del limitado número de aislados de C. albicans ensayado. Si bien el comportamiento de C. albicans en su estado planctónico frente a los antifúngicos no se pudo relacionar con la formación de biopelículas, este estudio deja abierta una línea de investigación para continuar el estudio de este fenómeno.
Referencias
- Martín R, Soberón N, Vázquez F, Suárez JE. La microbiota vaginal: composición, papel protector, patología asociada y perspectivas terapéuticas. Enferm Infecc Microbiol Clin. 2008; 26(3):160-167. https://doi.org/10.1157/13116753.
- Sánchez, J, González L, Rojas K, Muñoz G. Prevalencia de Candida albicans e sua relação com alterações no pH vaginal. Aten Fam. 2017; 24(1): 18-22. https://doi.org/10.1016/j.af.2017.01.003.
- Barrenetxea G. Vulvovaginitis candidiásica. Rev Iberoam Micol. 2002; 19: 22-24. Disponible en: http://www.reviberoammicol.com/2002-19/022024.pdf [Citado 7 ene 2021].
- Modrzewska B, Kurnatowski P. Selected pathogenic characteristics of fungi from the genus Candida. Ann Parasitol. 2013; 59(2): 57–66. Disponible en: https://annals-parasitology.eu/go.live.php/PL-H137/2013-vol-59-2.html [Citado 21 ene 2021].
- Del Pozo J, Cantón E. Candidiasis asociada a biopelículas. Rev Iberoam Micol. 2016; 33(3):176–183. http://dx.doi.org/10.1016/j.riam.2015.06.004.
- Gordon R, Ranjith R, Leighann S, Craig W. Fungal biofilm resistance. Int J Microbiol. 2012. https://doi.org/10.1155/2012/528521.
- Pineda J, Cortés A, Uribarren T, Castañón L. Candidosis vaginal. Primera parte: revisión de la clínica, epidemiología y situación de México. Rev Méd Risaralda. 2015; 21(1): 58-63. Disponible en: http://www.scielo.org.co/scielo.php?script=sci_arttext&pid=S0122-06672015000100010 [Citado 6 feb 2021].
- Miró MS, Rodrígueza E, Vigezzi C, Icely PA, de Freitas Araújo MG, Riera FO, et al. Candidiasis vulvovaginal: una antigua enfermedad con nuevos desafíos. Rev Iberoam Micol. 2017; 34(2): 65-71. http://dx.doi.org/10.1016/j.riam.2016.11.006.
- Panizo M, Reviákina V, Montes W, González G. Mantenimiento y preservación de hongos en agua destilada y aceite mineral. Rev Soc Ven Microbiol. 2005; 25:35–40. Disponible en: http://ve.scielo.org/scielo.php?script=sci_arttext&pid=S1315-25562005000100007 [Citado 6 feb 2021].
- Passerini B, Calenda M, Vay C, Franco M. Biofilm formation by Stenotrophomonas maltophilia isolates from device-associated nosocomial infections. Rev Argentina Microbiol. 2007; 39(4): 204-212. Disponible en: https://www.ncbi.nlm.nih.gov/pubmed/18390153 [Citado 10 ene 2021].
- O’Toole G, Kolter R. Flagellar and twitching motility are necessary for Pseudomonas aeruginosa biofilm development. Mol Microbiol. 1998; 30(2): 295–304. https://doi.org/10.1046/j.1365-2958.1998.01062.x.
- Stepanović S, Vuković D, Hola V, Di Bonaventura G, Djukić S, Cirković I, et al. Quantification of biofilm in microtiter plates: overview of testing conditions and practical recommendations for assessment of biofilm production by staphylococci. APMIS. 2007; 115(8): 891-899. https://doi.org/10.1111/j.1600-0463.2007.apm_630.x.
- Bravo L, Salazar D, Arce M, García H, Ramírez M, Cabrera L, et al. Estudio de factores de virulencia en cepas de Plesiomonas shigelloides aisladas de animales domésticos y afectivos. Rev REDVET. 2005: VI(10):1-12. Disponible en: https://www.researchgate.net/publication/26446936 [Citado 5 ene 2021].
- Hassett D, Ma J, Elkins J, McDermott T, Ochsner U, West S, et al. Quorum sensing in Pseudomonas aeruginosa controls expression of catalase and superoxide dismutase genes and mediates biofilm susceptibility to hydrogen peroxide. Mol Microbiol. 1999; 34: 1082-1093. https://doi.org/10.1046/j.1365-2958.1999.01672.x.
- Urrialde V. Caracterización funcional de los factores de transcripción Sk01 y Ph04 en Candida albicans. [Tesis doctoral]. Madrid: Facultad de Farmacia, Universidad Complutense de Madrid; 2016.
- CLSI. Reference Method for Broth Dilution Antifungal Susceptibility Testing of Yeasts. 4th ed. CLSI Standard M27-A4. Wayne, PA: Clinical and Laboratory Standards Institute; 2017. Disponible en: https://clsi.org/media/1897/m27ed4_sample.pdf [Citado 2 ene 2019].
- CLSI. Performance Standards for Antifungal Susceptibility Testing of Yeasts. 1st ed. CLSI Supplement M60. Wayne, PA: Clinical and Laboratory Standards Institute; 2017. Disponible en: https://clsi.org/media/1895/m60ed1_sample.pdf [Citado 2 ene 2019].
- Pfaller MA, Espinel-Ingroff A, Canton E, Castanheira M, Cuenca-Estrella M, Diekema DJ, et al. Wild-type mic distributions and epidemiological cutoff values for amphotericin b, flucytosine, and itraconazole and Candida spp. as determined by CLSI broth microdilution. J Clin Microbiol 2012; 50(6): 2040-2046. https://doi.org/10.1128/JCM.00248-12.
- Merino G, Cedillo L, Silva F, Muñoz A, Castañeda E. Análisis morfológico de biopelículas de Candida albicans producidasendiferentescondicionesdepHytemperatura analizadas por microscopía óptica y de fuerza atómica. Rev Mexicana Microbiol. 2011; 33: 1-8. Disponible en: http://www.scielo.org.mx/scielo.php?script=sci_arttext&pid=S0187-31802011000100002 [Citado 1 feb 2019].
- Silva M, Egnnyz N. Determinación de bacterias productoras de biofilm aisladas de ulceras de pie diabético. [Tesis de Maestría]. Maracaibo, Venezuela: Facultad de Medicina, Universidad del Zulia; 2013.
- Tossello M, Luque A, Amigot S, Racca L, Magaró H, Biasoli M. Formación de biofilms por especies de Candida. Disponible en: https://es.scribd.com/document/324084842/Tosello-FORMACION-DE-BIOFILMS [Citado 3 feb 2019]
- Paulo de Medeiros M, Vieira de Melo A, Maia de Sousa A, Silva-Rocha W, Pipolo E, Maranhão G. Characterization of virulence factors of vaginal and anal isolates of Candida albicans sequentially obtained from patients with vulvovaginal candidiasis in north-east Brazil. http://dx.doi.org/10.1016/j.mycmed.2017.06.002.
- Thein ZM, Zeneviratne CJ, Samaranayake YH, Samaranayake LP. Community lifestyle of Candida in mixed biofilms: a mine review. Mycoses 2009; 52(6): 467-75. https://doi.org/10.1111/j.1439-0507.2009.01719.x.
- Ramage G, Saville S, Thomas D, Lopez-Ribot J. Candida biofilms: an update. Eukaryot Cell. 2005; 4: 633–638. https://doi.org/10.1128/EC.4.4.633-638.2005.
- Kojic E, Darouiche R. Candida infections of medical devices. Clin Microbiol Rev. 2004; 17: 255–267. https://doi.org/10.1128/CMR.17.2.255-267.2004.
- Kaiser TD, Pereira EM, Dos Santos KR, Maciel EL, Schuenck RP, Nunes AP. Modification of the Congo red agar method to detect biofilm production by Staphylococcus epidermidis. Diagn Microbiol Infect Dis. 2013; 75(3): 235-239. https://doi.org/10.1016/j.diagmicrobio.2012.11.014.
- Noumia E, Snoussic M, Noumie I, Saghrounid F, Aounia M, Valentin E. Phenotypic characterization and adhesive properties of vaginal Candida spp. strains provided by the CHU Farhat Hached (Sousse, Tunisia). Rev Iberoam Micol. 2015; 32(3): 170-179. https://doi.org/10.1016/j.riam.2014.06.006.
- Hernández J, Meléndez K, Pineda S, Yanes L. Efecto del peróxido de hidrógeno al 3% sobre el biofilm del cepillo dental utilizado por estudiantes de tercer grado de cuatro centros escolares ubicados en los municipios de Atiquizaya, Cacaopera, Jucuapa y Santiago de María. [Tesis Doctoral]. San Salvador: Facultad de Odontología. Universidad del Salvador; 2011.
- Enjalbert B, Smith D, Cornell M, Alam I, Nicholls S, Brown A, et al. Role of the Hog1 stress-activated protein kinase in the global transcriptional response to stress in the fungal pathogen Candida albicans. Mol Biol Cell. 2006; 17; 1018–1032. Disponible en: http://www.molbiolcell.org/cgi/doi/10.1091/mbc.E05–06–0501 [Citado 13 enero 2019].
- Marotta D, Nantel A, Sukala L, Teubl J, Rauceo J. Genome-wide transcriptional profiling and enrichment mapping reveal divergent and conserved roles of Sko1 in the Candida albicans osmotic stress response. Genomics. 2013; 102: 363-371. https://doi.org/10.1016/j.ygeno.2013.06.002.
- Al-Fattani M, Douglas L. Biofilm matrix of Candida albicans and Candida tropicalis: chemical composition and role in drug resistance. J Med Microbiol. 2006; 55:999-1008. https://doi.org/10.1099/jmm.0.46569-0.