Introducción
El tracto gastrointestinal (TGI) en el humano y otros mamíferos está constituido por un ecosistema que acoge varios trillones de células microbianas. Este número equivale a 10 veces el número total de células humanas que aportan sólo de 1 a 3% de nuestra masa corporal. El microbioma intestinal de un adulto puede contener más de 1.000 especies, unos 470 filotipos y se han contabilizado entre 5 y 10 millones de genes no redundantes (1).
Además, el TGI posee una microbiota autóctona, la cual puede ser diferente entre los individuos, así como también variar en un mismo sujeto a lo largo de su vida. Esta microbiota está constituida por un conjunto de microorganismos (bacterias, hongos, arqueas, virus y parásitos) que pueblan nuestro cuerpo, y que pueden diferenciarse en comensales, mutualistas y patógenos; adaptados a las características de cada órgano al cual se están asociando, comportándose de manera simbiótica (2). Los microorganismos que constituyen esta
simbiosis se agrupan en poblaciones bacterianas autóctonas, en su mayoría bacterias anaerobias estrictas que representan hasta un 90% de la microbiota y casi un 10 % de microbiota aeróbica; además que incluyen una población transitoria o pasajera constituida por la ingesta diaria de alimentos u otras sustancias que ingresan al sistema digestivo por vía exógena (3).
Los microorganismos que conforman el TGI, se diferencian evolutivamente en tres grandes dominios: Bacteria, Eukarya y Archaea, contribuyendo indirectamente con más de 9 millones de genes al hospedador humano; aportando de esta manera funciones únicas a nuestro sistema inmune y digestivo como metabolismo, protección y control de la proliferación u/o diferenciación de las células epiteliales (4).
El número de células microbianas aumenta en sentido orofaríngeo-rectal, donde la mayor proporción se encuentra a nivel de colon. Tanto el tubo digestivo como la microbiota son interdependientes y su equilibrio permite la simbiosis del individuo dentro del entorno. Hasta hace poco la composición, las funciones y la importancia de la microbiota intestinal (MI) no eran muy conocidas. La MI está constituida al menos entre 5 y 7 filos bacterianos, y gracias al surgimiento de la metodología molecular basada en la secuenciación del gen 16S ARNr y ADNr, han ampliado el conocimiento sobre la composición de las comunidades de bacterias que conforman el intestino humano, además de sus propiedades funcionales (1).
El objetivo de la presente revisión es conocer sobre los nuevos avances de la MI en cuanto a su composición, funciones, desarrollo evolutivo en el humano, su aporte a la salud y las metodologías para su identificación, existentes para el momento Composición de la microbiota intestinal Los conocimientos acerca de la composición bacteriana de la MI se basaban en la información proveniente del método del cultivo bien fuera de muestras de heces o biopsias intestinales. Este método demostró que las bacterias anaerobias estrictas superan en número a las aerobias por un factor de al menos 100 o 1.000 especies anaerobias por cada especie aerobia, a pesar que existe un número considerable de especies anaerobias que no son cultivables (2). Sin embargo, gracias a esta metodología la microbiota intestinal está constituida por cuatro filos bacterianos: Firmicutes y Actinobacterias (gram positivos) y, Bacteroidetes y Proteopbacterias (gram negativos) (5).
Los hongos y el filo Archaea pueden ser también residentes, pero corresponden al 1% del total. La mayoría de la microbiota corresponde a los filos Firmicutes y Bacteroidetes que representan entre el 90 y 99% en humanos y ratones (5). Se había estimado que la MI estaba constituida entre 500 y 1.000 especies de microorganismos; sin embargo, estudios recientes a gran escala han estimado que las especies bacterianas individuales en el tubo digestivo varían de entre 15.000 a más de 35.000, según el método utilizado para la investigación de la microbiota (6).
En las dos últimas décadas, diversas técnicas de biología molecular han identificado y caracterizado las bacterias no cultivables, proporcionando información muy novedosa sobre el ecosistema del intestino. Datos ofrecidos por el proyecto europeo MetaHIT, han definido por primera vez el catálogo completo o casi completo de los genes microbianos que componen el metagenoma humano. Este proyecto ha identificado en muestras de heces humanas más de tres millones de genes bacterianos en un porcentaje superior al 95%, mientras que el resto es de origen viral o eucariota (virus, protozoos y hongos) (7).
Funciones de la microbiota intestinal
Mediante estudios previos en animales con colonización intestinal controlada se ha podido conocer que la MI presenta tres funciones principales, las cuales van a proveer al organismo humano una variedad de beneficios, tales como:
- Función de nutrición y metabolismo: en esta función se necesita energía metabólica y productos nutritivos para el crecimiento de los microorganismos bacterianos, por lo que el proceso de fermentación de los carbohidratos representa la mayor fuente de energía en la producción de ácidos grasos de cadena corta (AGCC): acetato, propionato y butirato, que son el combustible respiratorio preferido de los colonocitos y tienen un efecto antiinflamatorio, que posteriormente son absorbidos por el hospedero. Al obtener energía de la ingesta de la dieta, favorece la absorción de iones de calcio, hierro y magnesio a nivel del colon. También ocurre la producción de vitaminas como vitamina K, B12, biotina, ácido fólico; así como también la síntesis de aminoácidos a partir del amoniaco proveniente del ciclo de la urea (1,6).
- Función de protección: la microbiota comensal o benéfica opone una resistencia crucial a la colonización y sobrecrecimiento de especies exógenas con potencial patógeno. Este equilibrio proporciona estabilidad y da condiciones de simbiosis a la población microbiana residente en el intestino. Las bacterias comensales o benéficas compiten por los sitios de adhesión en los bordes en cepillo de las células epiteliales de la mucosa intestinal para prevenir la adhesión y penetración de microorganismos patógenos al interior de las células intestinales. Estos mecanismos de resistencia se deben al metabolismo bacteriano como las bacteriocinas, efectos sobre el pH y la producción de ácidos orgánicos, entre otros (2, 4,6).
- Función trófica: esta función actúa sobre la proliferación y diferenciación del epitelio intestinal, además del desarrollo y modulación de la respuesta del sistema inmunológico (2).
Evolución de la microbiota intestinal en el humano
El ecosistema microbiano del intestino cambia en las diferentes etapas de la vida bajo diversos factores del desarrollo, por eso, las comunidades microbianas son taxonómica y funcionalmente distintas en cada periodo de la vida. Encontramos que:
Etapa fetal: Inicialmente se consideraba que la colonización del TGI comenzaba inmediatamente tras el nacimiento, pero se ha demostrado que el feto no se encuentra en condiciones de esterilidad en el útero, existe evidencia de que el ADN microbiano y posiblemente hasta los microorganismos están en contacto con el feto y el intestino fetal a través de la placenta, órgano que participa en el intercambio de nutrientes, gases y otras sustancias entre la madre y el feto durante la gestación. Existe una microbiota estable en el líquido amniótico, en la sangre de cordón umbilical y en la placenta en ausencia de infección histológica intrauterina.
La microbiota placentaria tiene similitud con la existente a nivel oral, particularmente entre las comunidades que surgen de la lengua, las amígdalas y placas gingivales (8). Se encuentra constituida por los filos Firmicutes, Tenericutes (que incluye los géneros intrauterinos de Mycoplasma y Ureaplasma), Proteobacterias (en mayor abundancia en comparación con otras), Bacteroidetes y Fusobacteria. Aunque en general este grupo de microorganismos son poco abundantes, a diferencia de otros sitios del cuerpo, son metabólicamente muy activos. La colonización intestinal que se establece antes del nacimiento se refleja en el meconio, que en neonatos sanos, está compuesta principalmente por Escherichia coli (1,8,9).
Neonatos: Tras el nacimiento el TGI del neonato se coloniza rápidamente. Los nuevos microorganismos que pueda adquirir el niño dependen de diversos factores como: vía de nacimiento, exposición a antibióticos, presencia de poblaciones microbianas en el lugar de nacimiento, microbiota de la piel de las personas que entran en contacto con el bebé, nutrición y genética propia del hospedero (1,10).
El modo de nacimiento afecta significativamente las especies presentes en el intestino del bebé. Los neonatos nacidos por vía vaginal tienen una microbiota intestinal taxonómicamente similar a la microbiota intestinal y vaginal de la madre, en ellos predominan microbios de los géneros Bacteroides, Bifidobacterium, Parabacteroides y Escherichia. En contraste, la microbiota intestinal de los nacidos por cesárea, prevalecen microorganismos como Enterobacter hormaechei, E. cancerogenus, Haemophilus parainfluenzae, Haemophilus aegyptius, Haemophilus influenzae, Haemophilus haemolyticus, Staphylococcus saprophyticus, Staphylococcus. Lugdunensis, Staphylococcus aureus, Streptococcus australis, Veillonella dispar y Veillonella párvula, esto debido a que son bacterias que comúnmente están circundantes en el ambiente durante el parto a nivel de la microbiota oral y de piel de las personas que entran en contacto con el bebé (11,12).
Al pasar los meses, la diferencia existente entre la composición de la microbiota de los neonatos nacidos por cesárea y los nacidos por vía vaginal va disminuyendo, pero la de los bebés nacidos por cesárea se mantienen más heterogéneas, siendo frecuente la presencia de gérmenes del filo Bacteroides, en particular B. ovatus, B. thetaiotaomicron xylanisolvens, B. thetaiotaomicron, B. uniformis, B. vulgatus y B. dorei (12).
- Infancia y adolescencia: La diversidad microbiana aumenta durante los primeros años de vida y luego se estabiliza alrededor de los 2 y 4 años de edad para asemejarse a la del adulto. Los primeros meses donde la dieta es exclusivamente láctea, aumentan las Bifidobacterias que están altamente adaptadas para procesar los oligosacáridos de la leche, como también comienzan a aumentar el número de Bacteroidetes. Al introducir alimentos sólidos, la microbiota cambia hasta hacerse muy estable a lo largo del tiempo (en adultos sanos), a pesar de factores externos nutricionales o de otra índole (13). Entre los 7 y 12 años de edad, la microbiota presente en el intestino es taxonómica y funcionalmente similar a la del adulto. Se caracteriza por ser rica en Anaerovorax, Bifidobacterium, Faecalibacterium y Lachnospiraceae (2,12).
- Adultos: En la adultez, la microbiota está compuesta principalmente por los filos Bacteroides y Firmicutes, y en menor proporción por los filos Actinobacteria, Proteobacteria y Verrucomicrobia, así como Archaeas metanogénicas principalmente Methanobrevibacter smithii, además de levaduras y múltiples fagos. Las especies y subespecies varían inter-individuo formando colecciones microbianas únicas para cada persona (15).
- Ancianos: Finalmente, en los últimos años de vida, la microbiota cambia nuevamente y se vuelve extremadamente variable entre los individuos en comparación con la de los adultos más jóvenes, debido a factores como el deterioro de la dentadura, de la función salival, la digestión y el tránsito intestinal. Estos factores y otros como la dieta y el entorno de residencia, establece las características de la microbiota intestinal de cada anciano (2).
Microbiota en la salud y el sistema inmune
Es trascendente el papel de la microbiota intestinal en la salud del hospedero. Además, ejerce una profunda influencia en el cerebro a través del eje microbiota-intestino-cerebro. La microbiota tiene una localización destacada en el intestino, en la interface del medio interno y externo, que le permite formar una relación con las células epiteliales y a su vez con los antígenos provenientes de la dieta, y de esta manera mantener una simbiosis dentro de la luz intestinal, figura 1 (9).
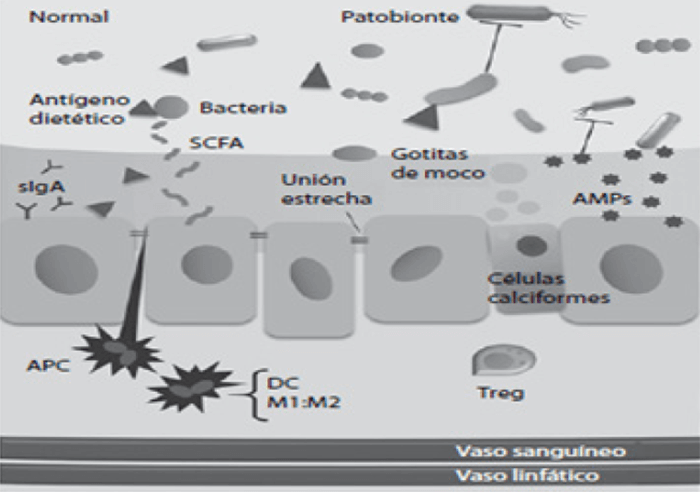
Figura 1. El tracto gastrointestinal bajo condiciones homeostáticas
Fuente: Chan YK, Estaki M, Gibson DL. Clinical conse-quences of diet-induced dysbiosis. Ann Nutr Metab. 2013; 63(SUPPL.2):28–40 (9).
Como se mencionó en el apartado anterior, la MI está compuesta principalmente por los filos Bacteroidetes y Firmicutes. Los Bacteroidetes incluyen a los géneros Bacteroidetes, Prevotella, Parabacteroides y Alistipes. Las especies de Bacteroidetes tienen la capacidad de unirse a los polisacáridos solubles, provenientes de la dieta de tipo animal (carne, pollo, entre otros) (16), a través de proteínas de membrana especializadas, luego estos polisacáridos son transferidos al espacio periplásmico, entre las membranas externa y citoplasmática (17). Mediante enzimas digestivas, las bacterias degradan estos polisacáridos complejos que el intestino no puede digerir ni absorber, generando monosacáridos y ácidos grasos de cadena corta (AGCC), principalmente ácido acético, ácido propiónico, ácido butírico y en menor medida ácido láctico, ácido caproíco, ácido valérico, ácido succínico y ácido fórmico (8,18).
En el caso del filo Firmicutes tiene enzimas especializadas para metabolizar polisacáridos de origen vegetal (14). Incluyen especies como Faecalibacterium prausnitzii, Eubacterium rectale y Eubacterium halii, principales productores de ácido butírico. Otras especies tienen la capacidad de convertir el ácido láctico en ácido butírico o propiónico, para prevenir la acumulación de lactato y el exceso de acidez (19).
Los AGCC derivados de la fermentación bacteriana son importantes para el organismo, ejemplo de ello es el ácido butírico o butirato, principal fuente de energía para los colonocitos o células del epitelio intestinal. También son precursores del colesterol y los ácidos grasos, son sustratos de la gluconeogénesis, lo que se traducen en un mejor aprovechamiento de la energía de la dieta (18,20,21). Los AGCC también tienen la capacidad de unirse a los receptores GRP43 y GRP41 (receptores específicos de células intestinales endocrinas). La unión péptido-receptor desencadena señalizaciones intracelulares que generan un incremento en la síntesis del péptido YY, el cual retarda el tránsito intestinal, aumentando la absorción de nutrientes (1,22); además tienen la capacidad de sintetizar vitamina K y B que el organismo humano no es capaz de producir (9).
La primera línea de defensa del hospedero contra los gérmenes patógenos esta mediada por las células epiteliales intestinales que forman una monocapa permeable altamente selectiva, y separa la luz intestinal del área estéril de la submucosa. La MI regula la proliferación de dichas células y la expresión de las proteínas de unión estrecha que mantienen juntas a estas células para controlar la permeabilidad paracelular. La MI también impide la adherencia de microorganismos patógenos en la superficie intestinal al influir en la expresión del gen de mucina por las células caliciformes (genes MUC-2 y MUC-3) y su patrón de glicosilación y la secreción de péptidos antimicrobianos (defensinas, angiogeninas, entre otras) por las células epiteliales intestinales. Inclusive productos provenientes del metabolismo bacteriano, como el butirato y el acetato, constituyen una protección para el hospedero al mejorar la función de la barrera epitelial vía inducción de hipoxia fisiológica en las células del epitelio intestinal (11, 15, 21, 23).
Modelos experimentales han demostrado que la MI es esencial para el desarrollo adecuado del sistema inmunológico (15). En un estudio con ratones se observó que aquellos que estaban libres de gérmenes tenían folículos linfoides inmaduros aislados y, pequeños parches de Peyer que carecían de centros germinales (24,25).
La mayor masa de tejido linfoide se encuentra en el intestino, encargado de desviar las señales recibidas desde la mucosa hacia el resto del cuerpo. Todo esto se logra gracias a células especializadas y receptores inmunes principalmente los receptores innatos tipo Toll, y los tipo NOD (7). Los tipos Toll son receptores transmembrana, se expresan en las células de la inmunidad innata, como macrófagos tipo M1 y M2, células epiteliales, células endoteliales y adipocitos, y en el parénquima de algunos órganos. Estos receptores son capaces de reconocer determinados antígenos llamados patrones moleculares asociados a patógenos que incluyen lípidos, lipopolisacáridos y lipoproteínas. Existen componentes específicos de la MI que afectan la expresión y activación de dichos receptores hacia los productos bacterianos, resultando en la síntesis de citoquinas y quimiocinas proinflamatorias con el fin de mantener la inmunidad sistémica y la mucosa en equilibrio; como consecuencia, las superficies de la mucosa toleran las bacterias inocuas, pero responden de manera adecuada a los patógenos para prevenir las infecciones (1, 21,23).
Los receptores tipo Toll participan en el inicio de la inmunidad adaptativa ya que se expresan en las células B, los mastocitos, las células T y las células dendríticas. La MI permite que exista una proporción adecuada de células T y células B productoras de inmunoglobulina A, en la lámina propia, así como de niveles séricos de inmunoglobulinas (21,23).
Poblaciones bacterianas específicas influyen en la acumulación de subconjuntos de células T en la lámina propia, manteniendo en equilibrio las células T efectoras y las reguladoras. Las células T reguladoras (incluyen la Th1 y la Th17) que ajustan la respuesta inmune adaptativa al mantener la tolerancia a los autoantígenos y suprime la activación excesiva de las respuestas inmunes (1, 21, 23,26). Dicha inducción es ejercida por los AGCC producidos por las bacterias, entre ellos el butirato que induce la diferenciación de las células T reguladoras al mejorar la acetilación de la histona H3 en el locus Foxp3 (27), el acetato también aumenta la acetilación del promotor Foxp3 mediante otra vía, y en el caso del propionato o ácido propílico aumenta el número de células T reguladoras a través de la acción de las células GPR43 (11,28).
Las señales originadas en los receptores tipo Toll tras su activación inducen a las células dendríticas a diferenciarse y a producir citosinas. Estas células presentan los antígenos a las células T para defender al cuerpo de los microorganismos extraños. Al mismo tiempo están implicadas en la tolerancia inmunológica a los alimentos (1,29).
Además, el polisacárido A (PSA) producido por la especie Bacteroides fragilis puede estimular la expansión de los folículos linfociticos del bazo (30).
El eje microbiota-intestino-cerebro es la vía bidireccional de comunicación entre las bacterias intestinales y el sistema nervioso central, mediante esta ruta la MI puede influir en procesos cerebrales claves, como la activación de ejes de estrés, neurotransmisión, neurogénesis y la modulación de comportamientos complejos, como sociabilidad y ansiedad (2). Además, esta vía de comunicación permite que el cerebro controle y ordene funciones gastrointestinales, como la peristalsis y la producción de mucina (9).
La MI ejerce su influencia en el cerebro gracias a su capacidad de síntesis de neurotransmisores. Especies del género Lactobacillus y Bifidobacterium producen ácido gamma-aminobutírico (GABA) principal neurotransmisor, mientras que los géneros Bacillus y Serratia excretan dopamina como producto final de su metabolismo. Otras bacterias como Escherichia coli no enteropatógena, Bacillus spp., y Saccharomyces spp., producen norepinefrina; especies de Candida, Streptococcus, Enterococcus y Escherichia coli excretan serotonina (31).
La modulación del sistema inmune y la producción de metabolitos como los AGCC que tienen propiedades neuroactivas, es otro mecanismo por el cual las bacterias intestinales intervienen en el sistema nervioso central (9,31). Existen vías adicionales de comunicación entre el cerebro y la MI, como la vía del vago y la modulación a través de aminoácidos claves como el triptófano (2).
Métodos y técnicas para la identificación de la microbiota
El conocimiento de nuestra MI inicialmente se fundamentó a partir del cultivo de los microorganismos y su identificación fenotípica mediante ensayos clásicos como: morfología, fisiología y pruebas bioquímicas. Pero hoy en día sabemos que la mayoría de estos microorganismos no se pueden cultivar en los medios tradicionales, ya que casi el 99% de las bacterias que conforman el contenido fecal son anaerobias estrictas, donde la mayoría de ellas son muy sensibles al oxígeno obligando a tomas estrictas condiciones reductoras durante su procesamiento, lo que hace muy tediosa y lenta la identificación de estas bacterias (32).
Existen otros métodos tradicionales indirectos como el análisis y cuantificación de los metabolitos originados por estas bacterias, como los AGCC, o productos del metabolismo de los ácidos biliares, mediante técnicas de cromatografía o actividades enzimáticas; pero se presenta el inconveniente de que muchas de estas actividades enzimáticas no son específicas de un microorganismo o de un grupo bacteriano concreto; a lo que hay que añadir la existencia, en ocasiones, de una gran variabilidad o plasticidad metabólica en las especies (33).
La principal diferencia entre los métodos tradicionales del cultivo y los métodos moleculares se basa en la forma de caracterizar e identificar a los microorganismos que componen la microbiota. El cultivo intenta recrear las condiciones naturales de vida del microorganismo, para obtenerlo in vitro, de esta manera se puede estudiar el aspecto fenotípico, mientras que los métodos moleculares tratan de identificar los microorganismos por sus analogías genéticas en el gen que codifica la subunidad 16S del ARN ribosomal (34).
Estos inconvenientes antes descritos han llevado a desarrollar estrategias alternativas como la utilización de técnicas moleculares que han permitido identificar y asignar taxonómicamente a la mayoría de los microorganismos sin necesidad de cultivarlos (32). La reacción en cadena de la polimerasa (PCR) con todas sus variantes es la metodología más utilizada, secuenciando el gen que codifica el ácido ribonucleico ribosómico (ARNr) 16S, permitiendo la identificación taxonómica de bacterias a nivel de clase, género y especie, de tal forma que se puede definir la composición de un ecosistema en cuanto a su diversidad, es decir, según el catalogo censal de las bacterias que están presentes. Entre las técnicas que aplican esta metodología encontramos: FISH (por sus siglas en inglés: Hibridación fluorescente in situ), construcción de bibliotecas genómicas de secuencias del ADNr 16S obtenidas por amplificación del ADN bacteriano de la muestra, DGGE (por sus siglas en inglés: electroforesis en gel de gradiente desnaturalizante), TGGE (por sus siglas en inglés: Electroforesis en gel con gradiente de temperatura, Pirosecuenciación, entre otras (33,34).
Otro método de estudio es la Gnotobiótica, la cual estudia la microbiota intestinal in vivo, donde se utilizan animales de experimentación libres de microorganismos. Gran parte de las funciones que se le atribuyen a la MI se han determinado mediante la comparación de animales axénicos (estériles) y animales holoxénicos (animal convencional con microbiota normal) (35).
Conclusiones
La MI se presenta como un mecanismo vital para el desarrollo de la salud en el individuo. Los avances en la metodología para identificar la microbiota han permitido conocer la composición del ecosistema intestinal de las personas, además de las múltiples funciones y beneficios asociados al bienestar de la humanidad. Se necesitan más estudios para mantener en equilibrio ese ecosistema microbiano y así poder manejar los cambios que pudieran ocurrir al presentarse cualquier desbalance o alteración que ponga en riesgo la salud del individuo.
Referencias
- Icaza-Chávez ME. Microbiota intestinal en la salud y la enfermedad. Rev Gastroenterol México 2013;78(4):240–248. http://dx.doi.org/10.1016/j.rgmx.2013.04.004
- Guarner F. Microbiota intestinal y enfermedades inflamatorias del intestino. Gastroenterol Hepatol 2011;34(3):147-154. doi:10.1016/j.gastrohep.2010.11.009
- O´Hara AM, Shanahan F. The gut flora as a forgotten organ. EMBO Rep 2006;7:688-693. doi: 10.1038/sj.embor.7400731.
- López A, Morales M, Solórzano Olmos S, Ruiz Velasco J. XI Gastrotrilogía: Los microorganismos en la salud y enfermedad gastrointestinal. Primera ed. Asociación Mexicana de Gastroenterología, A.C; 2017.
- Schloss PD, Handelsman J. Status of the microbial census. Microbiol. Mol Biol Rev 2004;68:686-691. doi: 10.1128/MMBR.68.4.686-691.2004.
- Castañeda C. Microbiota intestinal y salud infantil. Rev Cub Ped 2010;90(1):1-19. [citado 18 abril 2019]. Disponible en: http://www.revpediatria.sld.cu/index.php/ped/article/view/320/176
- Qin J, Li R, Raes J, Arumugam M, Solvsten K, Manichanh C, et al. A human gut microbial gene catalogue established by metagenomic sequencing. Nature 2010;464: 59-65. doi: 10.1038/nature08821.
- Aagaard K, Ma J, Antony K, Ganu R, Petrosino J, Versalovic J. The Placenta Harbours a Unique Microbiome. Sci Transl Med 2016;6(237):1–22. doi: 10.1126/scitranslmed.3008599
- Chan YK, Estaki M, Gibson DL. Clinical consequences of diet-induced dysbiosis. Ann Nutr Metab 2013; 63(Suppl 2): 28–40. doi: 10.1159/000354902.
- Pueyo B, Mach N. Disbiosis intestinal en enfermos de Crohn pediátricos. Nutr Hosp 2013;28(6):1820–1828. doi: 10.3305/nh.2013.28.6.6936
- O’ Mahony SM, Stilling RM, Dinan TG, Cryan JF. The microbiome and childhood diseases: Focus on brain-gut axis. Birth Defects Res Part C – Embryo. Today Rev 2015;105(4):296–313. doi: 10.1002/bdrc.21118.
- Bäckhed F, Roswall J, Peng Y, Feng Q, Jia H, Kovatcheva-Datchary P, et al. Dynamics and stabilization of the human gut microbiome during the first year of life. Cell Host Microbe 2015;17(5):690–703. doi: 10.1016/j. chom.2015.04.004.
- Koenig JE, Spor A, Scalfone N, Fricker AD, Stombaugh J, Knight R, et al. Succession of microbial consortia in the developing infant gut microbiome. Proc Natl Acad Sci 2011;108(Suppl 1):4578–4585. doi: 10.1073/ pnas.1000081107
- Claesson M, Jeffery I, Power SE, Conde S. Gut microbiota composition correlates with diet and health in the elderly. Act Naturae 2012;488:178–184. doi: 10.1038/ nature11319.
- Gómez A. Microbiota intestinal en la salud y la enfermedad. Rev Gastroenterol México 2016;4(78):240–8. [citado 15 febrero 2019]. Disponible en: http://dx.doi.org/10.1016/j.rgmx.2013.04.004
- David LA, Maurice CF, Carmody RN, Gootenberg DB, Button JE, Wolfe BE, et al. Diet rapidly and reproducibly alters the human gut microbiome. Nature 2014;505(7484):559–563. doi: 10.1038/nature12820.
- Martens EC, Koropatkin NM, Smith TJ, Gordon JI. Complex glycan catabolism by the human gut microbiota: The bacteroidetes sus-like paradigm. J Biol Chem 2009;284(37):24673–24677. doi: 10.1074/jbc. R109.022848.
- Conlon MA and Bird AR. The Impact of Diet and Lifestyle on Gut Microbiota and Human Health. Nutrients 2014;7(1):17–44. doi: 10.3390/nu7010017
- Belenguer A, Duncan SH, Holtrop G, Anderson SE, Lobley GE, Flint HJ. Impact of pH on lactate formation and utilization by human fecal microbial communities. Appl Environ Microbiol 2007;73(20):6526–6533. doi: 10.1128/AEM.00508-07
- Quera R, Quigley E, Madrid A. Sobrecrecimiento bacteriano. Rev Med Chil 2005;133:1361–1370. http://dx.doi.org/10.4067/S0034-98872005001100013
- Bibiloni R, Membrez M, Chou CJ. Microbiota intestinal, obesidad y diabetes. Ann Nestlé 2009;67(1):39–48. doi: 10.1159/000225915
- Delzenne NM, Cani PD. Interaction Between Obesity and the Gut Microbiota: Relevance in Nutrition. Annu Rev Nutr 2011;31(1):15–31. doi: 10.1146/annurev-nutr-072610-145146.
- Sanz Y. Microbiome and Gluten. Ann Nutr Metab 2015;67(Suppl 2):28–41. https://doi.org/10.1159/000440991
- Adachi S, Yoshida H, Kataoka H, Nishikawa SI. Three distinctive steps in Peyer’s patch formation of murine embryo. Int Immunol 1997;9(4):507–514. doi: 10.1093/ intimm/9.4.507.
- Bouskra D, Brézillon C, Bérard M, Werts C, Varona R, Boneca IG, et al. Lymphoid tissue genesis induced by commensals through NOD1 regulates intestinal homeostasis. Nature 2008;456(7221):507–510. doi: 10.1038/nature07450.
- Alexander KL, Targan SR, Elson CO 3rd. Microbiota activation and regulation of innate and adaptive immunity. Immunol Rev 2014;260(1):206-220. doi:10.1111/imr.12180.
- Furusawa Y, Obata Y, Fukuda S, Endo TA, Nakato G, Takahashi D, et al. Commensal microbe-derived butyrate induces the differentiation of colonic regulatory T cells. Nature 2013;504(7480):446–450. doi: 10.1038/nature12721.
- Smith P, Howitt M, Panikov N, Michaud M, Gallini CA, Bohlooly-Y M, et al. The microbial metabolites, short chain fatty acids, regulate colonic Treg cell homeostasis. Science 2013;341(6145):569–573. doi: 10.1126/science.1241165.
- Rescigno M, Sabatino A Di. Dendritic cells in intestinal homeostasis and disease. J Clin Invest 2009;119(9):2441–2450. doi: 10.1172/JCI39134.
- Mazmanian SK, Cui HL, Tzianabos AO, Kasper DL. An immunomodulatory molecule of symbiotic bacteria directs maturation of the host immune system. Cell 2005;122(1):107–118. doi: 10.1016/j. cell.2005.05.007.
- Sherwin E, Sandhu KV, Dinan TG, Cryan JF. May the Force Be With You: The Light and Dark Sides of the Microbiota–Gut–Brain Axis in Neuropsychiatry. CNS Drugs 2016;30(11):1019–1041. doi: 10.1007/ s40263-016-0370-3.
- Del Campo-Moreno R, Alarcón-Cavero T, D’Auria G Delgado-Palacio S, Ferrer-Martínez M. Microbiota en la salud humana: técnicas de caracterización y transferencia. Enferm Infecc Microbiol Clin 2018;36(4):241–245. doi: 10.1016/j. eimc.2017.02.007
- Delgado S. Microbiota intestinal humana: análisis y evolución de poblaciones representativas e identificación de bacterias probióticas. Tesis Doctoral. Oviedo- España 2005.
- García-Mazcorro JF, Garza-González E, Marroquín-Cardona AG, Tamyo JL. Caracterización, influencia y manipulación de la microbiota gastrointestinal en salud y enfermedad. Gastroenterol Hepatol 2015;1-22. doi.org/10.1016/j.gastrohep.2015.01.004.
- Falk PG, Hooper LV, Midtvedt T, Gordon JI. Creating and maintaining the gastrointestinal ecosystem: what we know and need to know from gnotobiology. Microbiol Mol Biol Rev 1998;62:1157-1170. [citado 30 abril 2019]. Disponible en: https://www.ncbi.nlm.nih.gov/pmc/articles/PMC98942/