Introducción
El término enzima fue acuñado por Wilhelm Kühne en 1876, quien trabajaba con una molécula de gran importancia en el proceso digestivo de la albúmina. Hoy en día sabemos que la molécula con la que trabajaba este investigador es la tripsina, enzima proteasa, responsable de la ruptura de otras proteínas mediante hidrólisis (1). Es en la década de 1930 cuando John H. Northrop y Moses Kunitz aíslan y caracterizan enzimáticamente la tripsina, definiendo sus precursores e identificando sus inhibidores (2).
Las proteasas son enzimas que participan en el catabolismo de proteínas, hidrolizando enlaces peptídicos. Aproximadamente el dos por ciento del genoma humano codifica para compuestos con actividad proteolítica (3). Además de su papel en procesos metabólicos, que incluyen desarrollo embrionario, diferenciación (4), respuesta inmune, apoptosis (5), entre otros, muchas proteasas son utilizadas en aplicaciones biotecnológicas a nivel industrial (6). En términos evolutivos estas moléculas constituyen probablemente una de las más antiguas familias de enzimas. Casi todos los organismos, incluyendo virus, tiene al menos una peptidasa (7). Estas enzimas producen el desensamblaje de moléculas proteicas para crear un pool de aminoácidos libres necesario para la síntesis de nuevas proteínas.
Las proteasas regulan el destino, la localización y la actividad de muchas proteínas, modulan las interacciones proteína-proteína, crean nuevas moléculas bioactivas, contribuyen al procesamiento de la información celular y generan, traducen y amplifican señales moleculares (8). Debido a la irreversibilidad de la actividad proteolítica, ésta se encuentra estrictamente controlada a diferentes niveles para prevenir una activación inadecuada.
La regulación se da a nivel de transcripción o a nivel proteico, es decir sobre la misma proteasa, ya sea que ésta deba activarse por estar expresada en forma de zimógeno (precursor inactivo o proenzima), o porque se unen a ella otras moléculas que actúen de moduladores de actividad, cofactores o inhibidores (9). Fallas en la regulación pueden ocasionar proteólisis inadecuada como la que se observa en procesos patológicos como el cáncer, algunas enfermedades cardiovasculares, inflamatorias (10), neurodegenerativas, bacterianas, virales y parasitarias (11).
Las enzimas proteasas también cobran relevancia en el diagnóstico: la utilización del activador del plasminógeno y de su inhibidor PAI 1 que están entre los marcadores de diagnóstico y pronóstico del cáncer de mama (12) y de enfermedades cardiovasculares (13); igualmente el Antígeno Prostático Específico (PSA), enzima proteasa utilizada como marcador para el diagnóstico del cáncer de próstata (14).
Algunas proteasas son específicas para la escisión del enlace peptídico en una proteína específica, como el caso de la enzima convertidora de la angiotensina, sin embargo, muchas proteasas son relativamente inespecíficas y algunas son francamente promiscuas, actuando sobre múltiples sustratos de manera indiscriminada, tal es la descripción que se hace de la Proteinasa K, considerada una serina-proteasa de amplio espectro producida por un hongo Tritirachium álbum, de uso en técnicas de biología molecular (15).
Clasificación
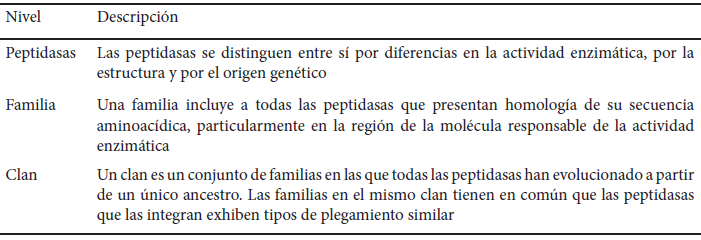
El Comité de Nomenclatura de la Unión Internacional de Bioquímica y Biología Molecular las ha nombrado según la reacción que catalizan, identificándolas de manera general como hidrolasas (Grupo 3), subgrupo 4, que hidrolizan enlaces peptídicos. Las proteasas fueron clasificadas inicialmente como endopeptidasas y exopeptidasas según la ubicación del enlace peptídico de interés en la molécula sustrato. Además, las exopeptidasas están divididas en: aminopeptidasa, si actúa en el extremo amino terminal de la cadena y carboxipeptidasa si lo hacen sobre el enlace peptídico del extremo C-terminal. Sin embargo, la información disponible en cuanto a estructura y mecanismos de acción ha hecho posible un nuevo esquema de clasificación, que considera la estructura terciaria y los sitios catalíticos, agrupándolas en clanes y estos divididos en familias (http://www.merops. sanger.ac.uk) (Tabla 1) (16).
Tabla 1. Sistema MEROPS de clasificación de proteasas.
Cada clan provee información acerca de la estructura catalítica de la enzima y toma su nombre del aminoácido principal o metal presente en el sitio activo:
Aspártico peptidasa (A): Son proteasas ácidas (E.C.3.4.23), específicamente endopeptidasas, que se caracterizan por una secuencia conservada de aspártico -glicina- treonina en su sitio activo. Se encuentran distribuidas en una amplia variedad de microorganismos, donde desempeñan funciones importantes en la nutrición y la patogenia, además de poseer otras características, como alta actividad catalítica y estabilidad en pH ácido, lo que las vuelve atractivas para su uso en industrias como la alimentaria, específicamente en la industria láctea (17). Por otro lado, en el área farmacológica, se ha identificado y caracterizado peptidasas aspárticas en T. cruzi que pueden ser utilizadas como moléculas blanco para el diseño de fármacos que inhiban la acción de enzimas que están relacionadas con la transformación de tripomastigotes en amastigotes y el desarrollo intracelular de amastigotes del parásito (18).
Cisteína peptidasa (C): llamadas también tiol-proteasas (E.C. 3.4.22), están presentes en procariotas y eucariotas. Su actividad depende de una diada catalítica cisteína-histidina cuyo orden difiere entre familias, siendo las más importantes: la papaína (EC 3.4.22.2), las calpaínas (EC 3.4.22.52/53), la clostripaína (E.C 3.4.22.8) y la interleukina β1 convertasa o de las caspasas (EC 3.4.22.36), estudiadas por su relación con la muerte celular programada o apoptosis (19,20).
Se sabe que existen cisteína-proteasas responsables de muchos procesos bioquímicos que ocurren en los organismos vivos. Por otro lado, también están implicadas en el desarrollo y la progresión de varias enfermedades basadas en el recambio anormal de proteínas. En este orden de ideas, las calpaínas son enzimas dependientes del calcio que determinan el destino de las proteínas a través de la actividad proteolítica regulada. No solo participan en la modulación de la memoria, sino que se consideran clave para la patogénesis de la enfermedad de Alzheimer (EA) de aquí que la identificación y caracterización de estas enzimas cobre particular importancia, así como el estudio de sus inhibidores en la búsqueda de la terapéutica para frenar el avance de la enfermedad. En este sentido, Hasanbasic y col., explican que la inhibición de la calpaína también mejora la memoria de trabajo espacial y la memoria de miedo asociativa debido a la restauración de los niveles normales de fosforilación del factor de transcripción CREB (21).
Métalo peptidasa (M): son hidrolasas (EC 3.4.24) en las que se requiere una molécula de agua activada por uno o dos cationes metálicos para hacer el ataque nucleofílico sobre el enlace peptídico. De manera general el catión es divalente, frecuentemente zinc, aunque en algunos casos, el zinc puede ser reemplazado por otro metal como cobalto o níquel sin pérdida de la actividad. Están presentes en organismos superiores y su función es degradar proteínas de la matriz extracelular. También se relacionan con la activación de factores de crecimiento y con adhesinas. Se han observado cinco tipos: colagenasas, gelatinasas, estromelisinas, metaloproteasas de membrana (MT-MMP) y otras MMP. Las enzimas de esta familia formadas por un solo catión presentan un centro catalítico conservado formado por dos residuos histidina que se unen al catión y un residuo glutamato. Las metalo-peptidasas con un solo ion metálico catalítico pueden ser exo o endopeptidasas mientras que todas las metalo-peptidasas con iones metálicos co-catalíticos son exopeptidasas. Actualmente en la base de datos MEROPS se encuentran registrados 16 clanes y más de 60 familias (22).
En referencia a estas enzimas, cobra importancia médica las presentes en el veneno de serpientes, se sabe que aproximadamente el 30% del contenido del veneno de los vipéridos son metaloproteasas, por lo que estas enzimas estarían fuertemente ligadas al proceso de envenenamiento, en particular al efecto hemorrágico, así como a la degradación de proteínas tisulares y plasmáticas (23). Estas proteínas no sólo son de utilidad para la investigación del envenenamiento sino como herramientas en el análisis de procesos biológicos diversos como la agregación plaquetaria y la apoptosis.
Serina peptidasa (S): Las peptidasas serínicas (EC 3.4.21) se caracterizan por la presencia de un residuo de serina en el sitio activo, que actúa como nucleófilo sobre el enlace peptídico que será escindido. Están presentes en virus, bacterias y en eucariotas y cumplen roles vitales en los organismos. Son activas generalmente en pH alcalino o neutro (7.0 - 11.0) y no requieren de activadores, aunque algunas proenzimas son activadas por iones calcio (16). Su estructura primaria de 4 clanes sugiere que los mismos tienen ancestros distintos y que evolucionaron originando el resto de serina – proteasas. El mecanismo de acción es común usando una triada catalítica (serina-nucleófilo; aspartato-electrófilo; histidina-base). Es inhibida irreversiblemente por fenil metil sulfonil (PNSF) y diisopropil fluorofosfato (DFP). Realizan funciones significativas en una amplia gama de procesos biológicos, como el metabolismo de proteínas intra y extracelulares, la digestión, la coagulación de la sangre, la regulación del desarrollo y la fertilización. Por ejemplo, se han identificado varias serina-proteasas en helmintos parásitos que tienen roles importantes en el desarrollo y la nutrición de los parásitos, la invasión de tejidos y células del huésped, la anticoagulación, entre otros. La caracterización molecular y bioquímica de las serina-proteasas derivadas de estos parásitos es, por tanto, fundamental para la comprensión de la interacción helminto-huésped y el control exitoso de las infecciones por helmintos (24).
Glutámico proteasas (G): Han sido aisladas principalmente de hongos y la familia G1 contiene actualmente peptidasas de cinco especies de Ascomycota. Se caracterizan por presentar estructura terciaria con diada catalítica formada por residuos glutamina y glutamato que activan el agua como nucleófilo y estabilizan el intermediario tetraédrico (25).
Peptidasa de tipo desconocido (U): son enzimas peptidasas agrupadas sin considerar el mecanismo catalítico (EC 3.4.99), se conoce su secuencia de aminoácidos y se han denominado “U” de unclassified. Además, se les asigna un número arbitrario como por ejemplo la familia U32 para peptidasas de Geobacillus thermoleovorans (26), U28 que contiene la dipeptidasa E de E. coli, así como otras nomenclaturas, como en el caso de la colagenasa HpPrtC de H. Pylori, y que se han relacionado con la patogenicidad o factores de virulencia de estos microorganismos (27).
Degradoma
Los avances en el estudio del genoma han permitido identificar proteasas en animales, plantas, hongos y bacterias, aplicando el término degradoma al conjunto de proteasas expresadas en un momento específico por una célula, tejido u organismo (28) y degradómica al estudio de todas las vías y reacciones en las que las proteasas participan a través de un conjunto de técnicas específicamente destinadas a caracterizar el degradoma para alimentar bases de datos que permitan el acceso libre a la información (29).
Usos
Para fines industriales las proteasas se han clasificado en tres grandes grupos según el pH óptimo para su función: neutras, cuya fuente principal son las plantas; acídicas, provenientes de hongos (25) y alcalino-proteasas aisladas a partir de microorganismos (30). Esta clasificación es importante por la naturaleza del producto y el proceso industrial que involucre el uso de la enzima, igualmente se han considerado mejoras en la resistencia a altas temperaturas propias de los procesos industriales.
Farmacéuticos: Las funciones esenciales de las proteasas en el comportamiento celular, supervivencia y muerte de todos los organismos, las alteraciones en los sistemas proteolíticos subyacen en múltiples patologías, como el cáncer, los trastornos neurodegenerativos y las enfermedades inflamatorias y cardiovasculares. Por consiguiente, muchas proteasas son un foco principal de atención para la industria farmacéutica como objetivos potenciales de fármacos o como biomarcadores de diagnóstico y pronóstico. Se ha reportado actividad sérica de exoproteasas que permitirían predecir tipos de cáncer (31). Así mismo conocer con precisión el mecanismo de activación de una proteasa puede proveer el potencial mecanismo por el que podría ser modulada artificialmente (32).
Detergentes: El uso de enzimas para mejorar el rendimiento de los detergentes ha sido implementado desde los años 60, para disminuir el consumo de agua, reemplazar el uso de ingredientes sintéticos y disminuir el consumo de energía. Recientemente se ha probado la eficacia de proteasas de origen animal y microbiano para mejorar la eficiencia de marcas comerciales de detergentes (33,34), destacando además la ventaja de utilizar productos de desecho de la industria de la goma como sustrato para favorecer el crecimiento bacteriano (35).
Alimentos: la elaboración de alimentos implica el control de aspectos relacionados con el valor nutricional y el contenido proteico. Esto incluye digestibilidad, modificaciones en textura, y sabor, beneficios a la salud tales como capacidad antioxidante y reducción de compuestos alergénicos. Muchos de estos procesos son desarrollados a través del uso de proteasas específicas. La hidrolisis de proteínas se ha utilizado para modificar propiedades funcionales de proteínas en los alimentos, por ejemplo, solubilidad, gelificación, emulsificación, entre otros. La proteólisis, además de disminuir el peso molecular también incrementa el número de grupos ionizables y puede exponer grupos hidrofóbicos, lo que cambia las interacciones físicas o químicas (36).
Otro aspecto relevante es el relacionado con alérgenos alimentarios. Las alergias alimentarias son definidas como respuestas inmunológicas adversas a la ingesta de algún alimento. Los alérgenos alimentarios son generalmente proteínas y la porción de proteína reconocida por la IgE (mediador de la respuesta inmune) es llamada epítope, que puede ser lineal o secuencial dependiendo de la estructura primaria de la proteína. Para “romper” el epítope se utilizan proteasas y en algunas ocasiones un tratamiento térmico (37).
Obtención
Las fuentes principales para la obtención de proteasas de uso industrial son hongos, levaduras, bacterias y plantas según las características y uso que se requieran. Cepas de Bacillus subtilis, B. amyloliquifaciens, B. lichiniformis son utilizadas para la obtención de proteasas alcalinas. Otras cepas de especies como Staphylococcus, Flavobacterium, Serratia, Alcaligenes, Vibrio, Brevibacterium, Pseudomonas y Halobacterium también son reconocidas por producir proteasas de uso industrial (38)
En los hongos, Aspergillus es el grupo predominante para la producción de proteasas, sin embargo, estudios con cepas de Ophiostoma, Myxococcus, Penicillium, Rhizopus y Neurospora, han demostrado que se obtienen enzimas con buen rendimiento (39). La naturaleza de algunos procesos industriales requiere enzimas “mejoradas” que puedan hacer su actividad en rangos extremos de pH y temperatura, de allí que se haya implementado la producción de proteasas recombinantes.
Proteasas Recombinantes
El uso de proteínas recombinantes ha revolucionado la biotecnología, debido a la posibilidad de producirla en cantidades suficientes a fin de poder analizarla y encontrar aplicaciones para la industria. Entre los microorganismos de uso más frecuente para la producción de proteínas recombinantes se encuentra E. coli. (40). La ventaja de usar E. coli como organismo huésped es que ha sido ampliamente estudiada y su genoma es conocido. Además, es un microorganismo de crecimiento rápido en medios de cultivo sin requerimientos especiales o costosos (41). Los aspectos más importantes para la producción de proteínas recombinantes son: eficiencia transcripcional y traduccional, estabilidad del vector de expresión y de los ácidos ribonucleicos (ARN) transcriptos, estabilidad de las moléculas ante el ambiente proteolítico del hospedero y la localización y plegamiento de la proteína (40). También es necesario hacer un estudio con diferentes cepas del organismo huésped y seleccionar la más adecuada para la expresión de la proteína recombinante deseada. Un caso relevante de producción de proteasas de interés farmacológico lo constituye la estreptopaína, una cisteína proteasa secretada por S. pyogenes que es crítica para la infectividad total del huésped debido a su capacidad para escindir las proteínas del huésped (plasminógeno, fibrinógeno), péptidos antimicrobianos y anticuerpos. Esta proteasa también se conoce como SpeB (exotoxina pirogénica estreptocócica B) porque inicialmente se creía que tenía actividad superantigénica, sin embargo, ahora se conoce que la actividad originalmente detectada era causada por contaminación o co-purificación con superantígenos y por lo tanto, la producción recombinante en un sistema de E.coli y la purificación por cromatografía de afinidad resultó una opción para obtener una proteína pura y activa (42)
Métodos Para Caracterización
El método más directo para verificar la actividad proteasa es monitorear la hidrolisis de un sustrato. Para esto los péptidos deben ser aislados e identificados por lo que se han utilizado métodos como electroforesis y zimografía en 1 y 2-D para evidenciar la aparición y características de los fragmentos (43). Sin embargo, la actividad proteolítica puede ser indirectamente monitoreada usando sondas sustrato que contienen una región parecida al sustrato y que permitirían evitar el proceso de separación de los péptidos. Las sondas son diseñadas de manera específica y pueden estar acopladas a fluoróforos que se activan cuando se produce la ruptura en la región específica del sustrato (44).
Una visión más amplia de los métodos de estudio se plantea a través de enfoques de la degradómica (tabla 2).
Tabla 2. Enfoques de la degradómica
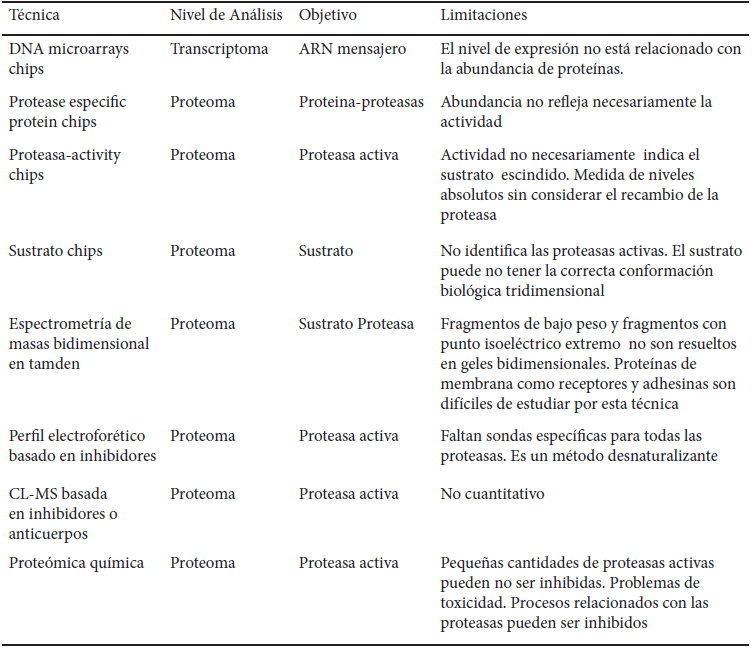
Adaptado de López y Overall, 2002.
Consideraciones Finales
El Proyecto Genoma ha proporcionado una visión amplia y en los últimos años más detallada de la composición y características del degradoma, información que ha sido utilizada para mejorar la calidad de vida del ser humano. Sin embargo, queda mucha información por procesar, enzimas por clasificar y caracterizar, definición de sus sustratos, entre otras cosas, investigación que ya se realiza a través del uso de bioinformática, minimizando así el impacto que dichas investigaciones pudieran tener sobre el ambiente. Los procesos evolutivos y de adaptación implican la expresión de nuevos genes y por tanto la aparición de nuevas enzimas, producto principalmente del exposoma. Los avances en degradómica y los distintos enfoques contribuirán a enriquecer bases de datos con información acerca de estas moléculas, relacionadas con el comportamiento celular, supervivencia y muerte de todos los organismos vivos.
Referencias
- Ferrer-Ríos MG, Moreno-Carranza B. Los grandes apellidos de la Biotecnología. Fundación General. Encuentros Multidisciplinares 2014; 47:1-10.
- Kunitz M, Northrup JH. Crystalline chymotrypsin and chymotrypsinogen. I. Isolation, crystallization, and general properties of a new proteolytic enzyme and its precursor. J Gen Physiol 1935; 18:433-458. doi: 10.1085/jgp.18.4.433.
- Rawlings N, Barret A, Bateman A. MEROPS: the database of proteolytic enzymes, their substrates and inhibitors. Nucleic Acids Res 2012; 40. doi:10.1093/nar/gkr987
- Tummers B, Green DR. Caspase-8: regulating life and death. Immunol Rev 2017; 277(1):76–89. doi:10.1111/ imr.12541
- Li P, Zhou L, Zhao T, Liu X, Zhang P, Liu Y, et al. Caspase-9: structure, mechanisms and clinical application. Oncotarget. 2017; 8(14):23996–24008. doi:10.18632/oncotarget.15098
- García-Olivera A, Vega-Gala A, Rosales-Rodríguez J, León-Acosta P. Estreptoquinasa recombinante e Infarto agudo del Miocardio. Progaleno [revista en Internet]. 2019; 2(1):[aprox. 15 p.]. [citado 2 Noviembre 2018]. Disponible en: http://revprogaleno.sld.cu/index.php/progaleno/article/view/72
- Salvesen GS, Hempel A, Coll NS. Protease signaling in animal and plant regulated cell death. FEBS J 2016; 283:2577-2598. doi: 10.1111/febs.13616.
- López C, Bond J. Proteases: Multifunctional Enzymes in Life and Disease. J Biol Chem 2008; 283(45):30433–30437. doi: 10.1074/jbc.R800035200
- Lorenzo J. El degradoma y sus inhibidores como dianas terapéuticas. Rev SEBBM 2014. doi.org/10.18567/ sebbmdiv_RPC.2014.04.1
- De Bruyn M, Vandooren J, Ugarte-Berzal E, Arijs I, Vermeire S, Opdenakker G. The molecular biology of matrix metalloproteinases and tissue inhibitors of metalloproteinases in inflammatory bowel diseases. Crit Rev Biochem Mol Biol 2016; 51(5):295-358. doi: 10.1080/10409238.2016.1199535.
- Cascales M, Álvarez A. Metaloproteinasas, matriz extracelular y cáncer. An R Acad Nac Farm 2010; 76 (1): 59-84. [citado 2 Noviembre 2018] Disponible en: http://www.analesranf.com/index.php/aranf/article/viewFile/1076/1082
- Espinoza M, Rojas S, Leal U, Nadales M, Martínez F, Nicita G. Moléculas de adhesión endotelial (ICAM-1) e inhibidor del activador del plasminógeno (PAI-1). Salus 2014:18 (1). [citado 2 Noviembre 2018]. Disponible en: http://www.scielo.org.ve/scielo.php?script=sci_arttext&pid=S1316-71382014000100005
- Kirchhof P, Benussi S, Kotecha D, Ahlsson A, Atar D, Casadei B, et al. Guía ESC 2016 sobre el diagnóstico y tratamiento de la fibrilación auricular, desarrollada en colaboración con la EACTS. Rev Esp Cardiol 2017;70(1):e1-e84. doi: 10.1016/j.recesp.2016.11.014.
- Kirby R. The role of PSA in detection and management of prostate cancer. Practitioner 2016; 260(1792):17-21.
- Truong LV, Paulsen BS, Bac VH. A novel serine protease from Pseuderanthemum latifolium B. Hansen: Characterization and fibrino(geno) lytic activities. Nat Prod Res 2019; 1-7. doi: 10.1080/14786419.2019.1656626
- Barrett AJ, Woessner JF, Rawlings ND, eds. Handbook of proteolytic enzymes. 2nd edition. Vol. 1. Elsevier, 2004, 984p. doi.org/10.1016/C2009-0-03628-9.
- Mandujano-González V, Villa-Tanaca L, Anducho-Reyes MA, Mercado-Flores Y. Secreted fungal aspartic proteases: A review. Rev Ibero Micol 2016; 33(2):76–82. doi:10.1016/j.riam.2015.10.003
- Sangenito LS, Gonçalves DS, Seabra SH, d’ Avila-Levy CM, Santos ALS, Branquinha MH. HIV aspartic peptidase inhibitors are effective drugs against the trypomastigote form of the human pathogen Trypanosoma cruzi. Int J Antimicrob Agents 2016; 48(4):440–444. doi:10.1016/j.ijantimicag.2016.06.024
- Coll NS, Smidler A, Puigvert M, Popa C, Valls M, Dangl JL. The plant metacaspase AtMC1 in pathogen-triggered programmed cell death and aging: functional linkage with autophagy. Cell Death Differ 2014;21(9):1399-1408. doi: 10.1038/cdd.2014.50
- Escamez S, Tuominen H. Programmes of cell death and autolysis in tracheary elements: when a suicidal cell arranges its own corpse removal. J Experiment Bot 2014; 65(5):1313-1321. doi: 10.1093/jxb/eru057.
- Hasanbasic S, Jahic A, Karahmet E, Sejranic A, Prnjavorac B. The role of cysteine protease in Alzheimer disease. Mater sociomed 2016;28(3):235-238. doi: 10.5455/msm.2016.28.235-238.
- Cerdá-Costa N, Gomis-Rüth FX. Architecture and function of metallopeptidase catalytic domains. Protein Sci 2014;23:123–144. doi: 10.1002/pro.2400
- Bellido C, Lazo F, Ortiz C, Rodríguez E, Yarlequé A. Purificación y caracterización de una hemorragina de alto peso molecular presente en el veneno de la serpiente Bothrops Pictus. Rev Soc Quím Perú 2016;82(2):142-151. [citado 25 Octubre 2018]. Disponible en: http://www.scielo.org.pe/pdf/rsqp/v82n2/a05v82n2.pdf
- Yang Y, Wen Yj, Cai YN, Vallée I, Boireau P, Liu MY, et al. Serine proteases of parasitic helminths. Korean J Parasitol 2015;53(1):1-11. doi: 10.3347/ kjp.2015.53.1.1.
- Sims A, Dunn-Coleman NS, Robson GD, Oliver SG. Glutamic protease distribution is limited to filamentous fungi. FEMS Microbiol Lett 2004; 239(1): 95–101. doi.org/10.1016/j.femsle.2004.08.023
- Jasilionis A, Kaupinis A, Ger M, Valius M, Chitavichius D, Kuisiene N. Gene expression and activity analysis of the first thermophilic U32 peptidase. Cent Eur J Biol 2012;7(4):587-595. doi.org/10.2478/s11535-012-0047-y
- Zhao H, Ji X, Chen X, Li J, Zhang Y, Du Z, Li, B. Functional study of gene hp0169 in Helicobacter pylori pathogenesis. Microb Patho 2017;104:225-231. doi: 10.1016/j.micpath.2017.01.039.
- López C, Overall C. Protease degradomics: a new challenge for proteomics. Nature Rev Mol Cell Biol 2002;3:509-519 doi:10.1038/nrm858.
- Pérez J, Español Y, Velasco G, Quesada V. The Degradome database: expanding roles of mammalian proteases in life and disease. Nucleic Acid Res 2016; 44:D351–D355 doi: 10.1093/nar/gkv1201
- Sharma KM, Kumar R, Panwar S, Kumar A. Microbial alkaline proteases: Optimization of production parameters and their properties. J Gen Eng Biotechnol 2017; 15(1):115-126. doi: 10.1016/j.jgeb.2017.02.001.
- Li Q, Yi L, Marek P, Iverson BL. Commercial proteases: Present and future. FEBS Lett 2013; 17; 587(8):1155-1163. doi: 10.1016/j.febslet.2012.12.019.
- Villanueva J, Shaffer D, Philip J, Chaparro C, Erdjument H et al. Differential exoproteases activities confer tumor –specific serum peptidome patterns.J Clin Investig 2006;116:271-284. doi: 10.1172/ JCI26022.
- Yang P, Wang M, Li L, Wu H, He C, Yao Q. Designs, synthesis and biological evaluation of potent azadipeptide nitrile inhibitors and activity-ased probes as promising anti-Trypanosoma brucei agents. Chem Eur J 2012;18:6528-6541. https://doi.org/10.1002/chem.201103322.
- Salazar J, Correa L, Rodríguez V, Osuna I. Estabilidad en detergentes, solventes polares y sales de proteasas alcalinas extraídas de desechos de procesamiento de sierra (Scomberomorus sierra). Rev Cs Nat Agrop 2015; 2(2): 263-271. [citado 2 Noviembre 2018]. Disponible en: https://www.ecorfan.org/bolivia/researchjournals/Ciencias_Naturales_y_Agropecuarias/vol2num2/Ciencias%20Naturales%20y%20Agropecuarias%20Vol%202%20Num%202%20Final_19.pdf
- Mardina V, Yusof F. Purification and Characterization of Surfactant-Stable Protease from Bacillus Licheniformis: A Potential Additive for Laundry Detergent. IJBR 2016;7(2):634-643.
- Tavano O. Protein hydrolysis using proteases: An important tool for food biotechnology. J Mol Catal B – Enzym 2013;(90):1-11.
- Sathe S, Sharma G. Effects of food processing on food allergens. Mol Nutr Food Res 2009;53(8):970-978. doi: 10.1002/mnfr.200800194.
- Gupta R, Chauhan B, Ramnani P, Singh R. Bacterial alkaline proteases: Recent trends and industrial applications. In: Microbial Diversity: Current Perspectives and potential applications, Satyanarrayana T and Johri BN, eds., IK International Pvt. Ltd., New Delhi, 2005; 769-789.
- Rosano G, Ceccarelli E. Recombinant protein expression in Escherichia coli: advances and challenges. Front Microbiol 2014;5:1-17. doi: 10.3389/ fmicb.2014.00172.
- García J, Santana Z, Zumalacárregui L, Quintana M, González D, Furrazola G, et al. Estrategias de obtención de proteínas recombinantes en Escherichia coli. Vaccimonitor 2013;22(2):30-39. [citado 2 Noviembre 2018]. Disponible en: http://scielo.sld.cu/pdf/vac/v22n2/vac06213.pdf
- Choi JH, Keum KC, Lee SY. Production of recombinant proteins by high cell density culture of Escherichia coli. Chem Eng Sci 2006;61:876-885.
- Lane MD, Seelig B. Highly efficient recombinant production and purification of streptococcal cysteine protease streptopain with increased enzymatic activity. Protein Expres Purif 2016;121:66-72. doi:10.1016/j.pep.2016.01.002
- Wilkesman J and Schroder H. Analysis of serine proteases from marine sponges by 2-D zymography. Electrophoresis 2007;28:429-436.
- Sanman L, Bogyo M. Activity-based profiling of proteases. Annu Rev Biochem 2014;83:249-273. doi: 10.1146/annurev-biochem-060713-035352.