Introducción
Las glutatión S-transferasas (GSTs) (EC 2.5.1.18) son una familia de enzimas involucradas en la protección de las células contra las especies de oxigeno reactivas (ROS) catalizando su conjugación con el glutatión (1). Las GSTs están involucradas en reacciones de fase II de biotransformación de drogas, clínicamente importantes, así como una variedad de xenobióticos, incluyendo precarcinógenos, tales como hidrocarburos aromáticos policíclicos (2). Además, las GSTs actúan como un inhibidor de la ruta de la Jun kinasa, la cual es un mecanismo de señalización importante para la activación de genes citoprotectores (3).
En mamíferos se han identificado ocho clases de GSTs:
alfa (GSTA), mu (GSTM), teta (GSTT), pi (GSTP), zeta (GSTZ), sigma (GSTS), kappa (GSTK) y omega (GSTO), basada en su secuencia de homología y especificidad de sustrato. Los genes que codifican la enzima GSTM1 están localizados en un grupo de genes en el cromosoma 1p13.3 y codifica para un enzima de 218 aminoácidos (4,5)
Las GSTs citosólicaenhumanoshasidobiencaracterizada y se conoce que algunas de ellas son polimórficas. En Caucásicos el 50% de estos no expresan GSTM1, debido a la presencia de una deleción homocigota en el gen conocida como GSTM1- o nulo (6). El porcentaje de individuos que no expresan la GSTM1 es mayor en caucásicos y asiáticos que en africanos (7).
El gen GSTT1 está localizado en el cromosoma 22q11.2 y codifica para un enzima de de 240 aminoácidos. Del 20 al 60% de los individuos no expresan la enzima, debido a deleción del gen conocida como GSTT1- o nulo (8). Aproximadamente el 60% de los asiáticos, el 40% de los africanos y el 20% de los caucásicos no expresan esta enzima (9).
El gen GSTP1 ha sido localizado en el cromosoma 11q13, cerca de algunos proto-oncogenes (10). Codifica para una proteína de 210 aminoácidos y se expresa en varios tejidos extrahepáticos como cerebro, y en menor cantidad en corazón, pulmones, testículos, riñón y páncreas (11). Cada vez hay más evidencias que sugieren el papel importante de las enzimas metabolizadoras de drogas en la determinación de las variaciones interindividuales en la respuesta terapéutica. La GSTP1 tiene dos polimorfismos de nucleótido simples (cSNPs) comunes que se traducen en alteraciones en la posición Ile105Val y Ala114Val en la secuencia codificada de aminoácidos. La transición polimórfica de adenina a guanina en el nucleótido 313 (A313G) en el exón 5 resulta en una sustitución de isoleucina por valina en el codón 105 (I105V) (12,13). La sustitución Val105 resulta en la restricción estérica del sitio-H, debido a los cambios en las cadenas laterales de varios aminoácidos. Por lo tanto, la aloenzima variante Val105 puede ser capaz de adaptarse más a los sustratos menos voluminosos que la aloenzima Ile105, y, como resultado puede mostrar especificidades de sustrato que se diferencian de los de la aloenzima normal.
Diversos estudios han registrado asociación entre los genotipos de GSTs, particularmente: mu (GSTM), pi (GSTP), omega (GSTO) y teta (GSTT) y el riesgo de varias enfermedades, tales como la leucemia linfocítica crónica, cáncer de tiroides, mama, vejiga, pulmón y colorrectal, así como carcinoma de cabeza y cuello de células escamosas, la resistencia a la quimioterapia, la respuesta a drogas y la susceptibilidad a la aparición y evolución de enfermedades representando un área de intensa investigación (9,14,15,16-21). El cáncer es en Venezuela una las causas más frecuentes de enfermedad o de muerte, que ocupa la segunda posición en la mortalidad general, después de las enfermedades cardíacas. La proporción indica que uno de cada cuatro personas se verá afectado a la edad de 74 años por algún tipo de cáncer y siete están en riesgo de morir por la misma razón. El cáncer representa el 15% de las principales causas de muerte en Venezuela. El cáncer de próstata es el más frecuente, con una incidencia de 4408 casos por año, seguido de cuello uterino con 3685 casos por año, de mama con 3549 casos por año, de pulmón con 3185 casos por año y de colon con 2108 casos por año (22).
La población Venezolana es muy heterogénea desde el punto de vista étnico como resultado de la mezcla entre Amerindios, europeos y descendientes africanos. Se han realizado diversos estudios sobre la frecuencia de los polimorfismos genéticos en los genes CYP2C19, CYP2D6, GSTM1, GSTT1, GSTP1, NAT2, MTHFR, LEP, LEPR, LTC4S y ADRβ2. Algunos de estos estudios han sido realizados en grupos nativos que viven en el país arrojando resultados interesantes que pueden contribuir al campo de la investigación en el área de la farmacogenetica (23). Cabe destacar que en un estudio realizado sobre la frecuencia de los polimorfismos genéticos de GST (GSTM1, GSTP1 y GSTT1) en varios grupos poblacionales como los individuos de las etnias Bari, Panare, Pemon, Warao y Wayuu así como en individuos mestizos se encontró una frecuencia del genotipo de 51% para GSTM1 nulo y de 11% para GSTT1 nulo en la población mestiza. Mientras que en las poblaciones nativas la frecuencia de GSTM1 nulo vario de 15.2% a 54.3% y de 0 – 11% para GSTT1 nulo. El alelo GSTP1 Val fue encontrado más frecuente en la etnia Bari (88.6%) y Panare (63.0%) (24).
La importancia del estudio de los polimorfismos en los genes para las glutatión S-transferasas (GSTs) radica en que no se ha registrado un estudio sistemático de las variaciones genéticas comunes en estos genes en ausencia de una patología determinada. Es por ello, que en este estudio se planteó evaluar la presencia y frecuencia de los polimorfismos genéticos de enzimas metabolizadoras de xenobióticos GSTM1, GSTT1 y GSTP1 en individuos venezolanos para proporcionar una base de datos para los futuras estudios clínicos y genéticos relacionados a la predisposición a enfermedades y a la variabilidad en la respuesta y/o la toxicidad de los medicamentos que sean sustratos de las GSTs.
Materiales y Métodos
Población
El genotipaje de GSTM1 y GSTT1 se realizó en 322 individuos (212 mujeres y 110 hombres), de los cuales 116 fueron indígenas provenientes de las etnias Warao (Winikina, Delta Amacuro) y Panare (Maniapure, Amazonas), 53 afrodescendientes (Chuao, Aragua), 100 caucásicos (Distrito Capital) y 50 mestizos (Distrito Capital). Por otro lado, el estudio de GSTP1 se realizó en 291 individuos: 113 indígenas, 53 afrodescendientes, 75 caucásicos y 50 mestizos, provenientes de las mismas localidades antes mencionadas, aparentemente sanos, no relacionados, de diferente sexo (194 mujeres y 97 hombres) y edades comprendidas entre 5 y 71 años, durante diferentes periodos de tiempo comprendidos entre el año 2008 y el 2015, quienes se prestaron voluntariamente a este estudio, después de ser informados de la finalidad del mismo y firmar un Consentimiento Informado. Hay que hacer notar que la elección de los individuos caucásicos (inmigrantes españoles, portugueses, italianos, rumanos, yugoeslavos y alemanes) y afrodesdendientes fue hecha tomando en cuenta hasta 3 generaciones para asegurarnos del origen de dichas poblaciones. Este estudio fue aprobado por el Comité de Bioética del Hospital Universitario de Caracas siguiendo los lineamientos de la declaración de Helsinki y del Código de Bioética y Bioseguridad del FONACIT.
Muestras
Por cada individuo se extrajeron 5 ml de sangre periférica, mediante la técnica rutinaria de extracción venosa en la región del antebrazo, utilizando un tubo al vacío con sal sódica de ácido etilendiaminotetraacético al 10% (EDTA) como anticoagulante. Todos los tubos con las muestras fueron enviados al Laboratorio de Investigación de Hemoglobinas Anormales, Instituto Anatómico José Izquierdo de la Universidad Central de Venezuela, para su estudio genético.
Genotipaje
La presencia de los polimorfismos genéticos de GSTM1 y GSTT1 fue realizado por la técnica de reacción en cadena de la polimerasa multiplex siguiendo el protocolo empleado por Arand et al., (25), utilizando los siguientes cebadores: GSTM1-F: 5`GTTGGGCTCAAATATACGGTGG3´, GSTM1-R:
5´GAACTCCCTGAAAAGCTAAAGC 3´, GSTT1-F:
5´TTCCTTACTGGTCCTCAATCTC3´, GSTT1-R:
5´TCACCGGATCAGGC CAGCA3´, ALB-F:
5’GCCCTCTGCTAACAAGTCCTAC3’, ALB-R:
5’GCCCTAAAAAGA AAATCGCCAATC3’. Los
productos de amplificación fueron corridos en una electroforesis en gel de agarosa al 3%, a 150V por 20 minutos y fueron visualizados con luz UV en un equipo de foto documentación (Digi Doc-IT imaging system UVP) por tinción con Bromuro de Etidio.
Los genotipos para GSTM1 y GSTT1 fueron determinados por la presencia y ausencia (nulo) de las bandas de 219 y 480 pb, respectivamente (Fig. 1). El gen albumina fue amplificado como control interno de la reacción.
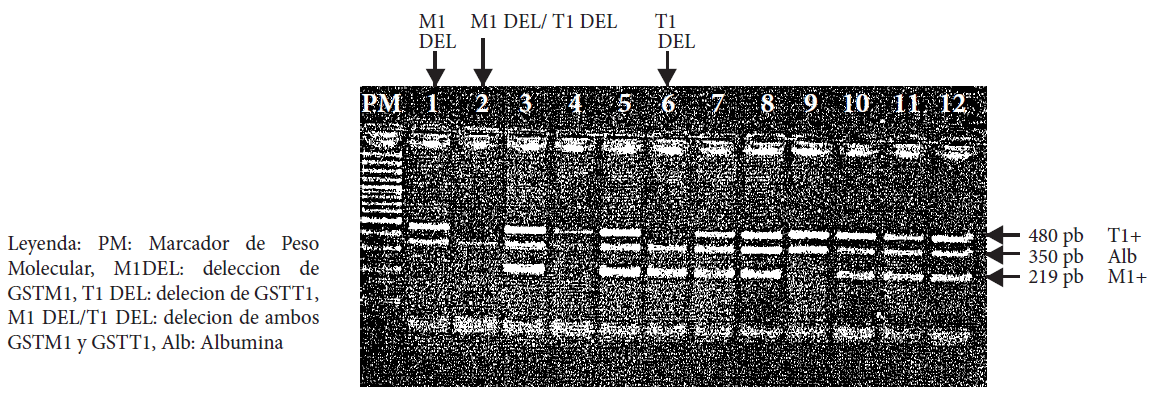
FIGURA 1: Electroforesis en gel de agarosa al 3% donde se muestra el PCR Multiplex para GSTM1 y GSTT1.
Líneas 3, 5, 7, 8, 10, 11 y 12: M1+/T1+; líneas 1, 4 y 9: M1+/T1-; línea 6: M1-/T1+; línea 2: M1-/T1-
Los polimorfismos genéticos de GSTP1 fueron determinados por el método de PCR/RFLP, utilizando condiciones y cebadores descritos previamente por Casson et al., (26). La secuencia de los oligonucleótidos utilizados fue la siguiente: GSTP1-F: 5´TAG TTTGCCCAAGGTCAAG3´ y GSTP1-R:
5´AGCCAACCTGAGGGGTAAG3´. El amplicón de 432 pb obtenido fue digerido con la enzima BsmAI a 55°C, durante toda la noche. Tres variantes fueron identificadas: Ile/Ile (tipo salvaje) compuesta por dos bandas (328 pb y 104 pb); Ile/Val (heterocigoto) por cuatro bandas (328 pb, 221 pb, 107 pb y 104 pb) y Val/ Val (homocigoto mutante) por tres bandas (221 pb, 107 pb y 104pb). (Fig. 2)
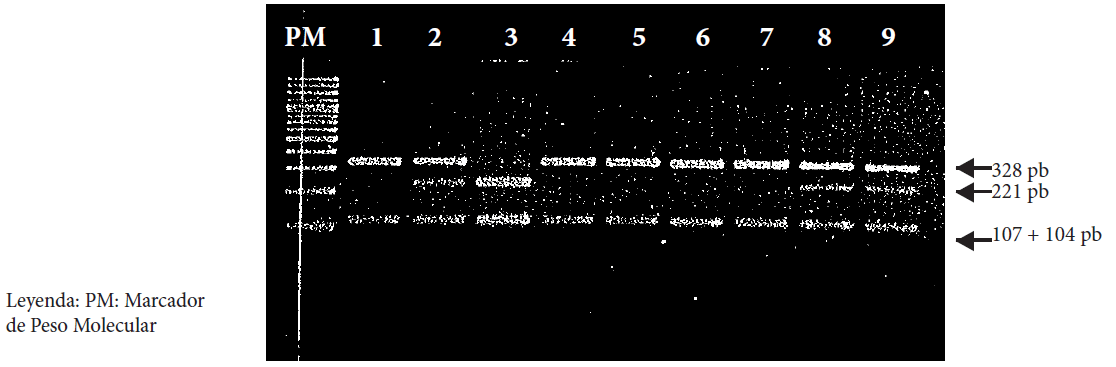
FIGURA 2: Electroforesis en gel de agarosa al 3% donde se muestra la digestión enzimática con Bms AI para GSTP1. Líneas 1,4, 5, 6 y 7: Ile/Ile; líneas 2, 8 y 9: Ile/Val; línea 3: Val/Val
Análisis estadístico
Se utilizó la Prueba de Chi Cuadrado (X2, P< 0.05) con 2 grados de libertad para conocer si las poblaciones estaban en equilibrio de Hardy-Weinberg (HWE). Se usó el paquete estadístico IBM SPSS v19.0 (Statistical Package for the Social Science, IBM Inc., NY, USA) y la hoja de cálculo Excel, ambos en ambiente Windows, utilizando estadística descriptiva e inferencial para el análisis.
Resultados
Todas las poblaciones estuvieron en equilibrio de Hardy-Weinberg (Tablas 2 y 3). La frecuencia de los genotipos nulos para GSTM1 y GSTT1 en la población estudiada es mostrada en la Tabla I. Los genotipos nulos para GSTM1 y GSTT1 fueron encontrados en un 41% y 15% de los individuos, respectivamente. El genotipo nulo para ambos genes fue encontrado en un 5% (Tabla 2).
TABLA 1. Frecuencia de los genotipos nulos de GSTM1 y GMTT1 en los grupos de individuos estudiados
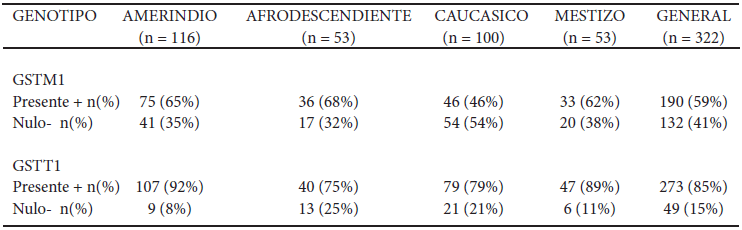
TABLA 2. Frecuencia de los genotipos de GSTM1 y GSTT1 combinados en los grupos de individuos estudiados
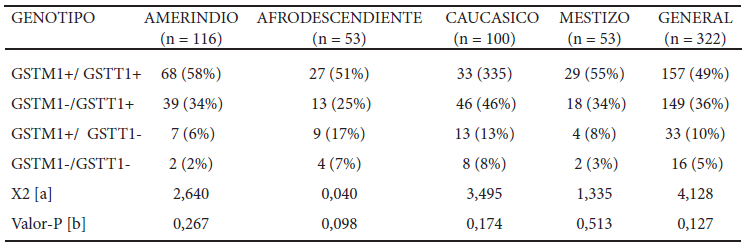
n = número de individuos, [a] Prueba de Chi Cuadrado de Pearson (χ2), [b] Diferencia significativa entre genótipos (P< 0.05
La distribución del genotipo nulo GSTM1 fue más frecuente entre los individuos caucásicos y amerindios, mientras que la frecuencia del genotipo nulo GSTT1 fue más alta en caucásicos y afrodescendientes. La frecuencia más alta del genotipo doble nulo fue observada en individuos Caucásico seguidos de los afrodescendientes.
Las frecuencias generales de los genotipos de GSTP1, tipo salvaje (Ile/Ile), heterocigoto (Ile/Val) y mutante (Val /Val) en los individuos estudiados fueron 33,67% Ile/Ile, 52,92% Ile/Val y 13,40% Val/Val, respectivamente. En los cuatro grupos estudiados la frecuencia de los heterocigotos fue la más alta, mientras que la frecuencia de homocigotos mutantes fue mayor en individuos afrodescendientes (Tabla 3).
TABLA 3. Frecuencia de los polimorfismos genéticos de GSTP1 en los grupos de individuos estudiados
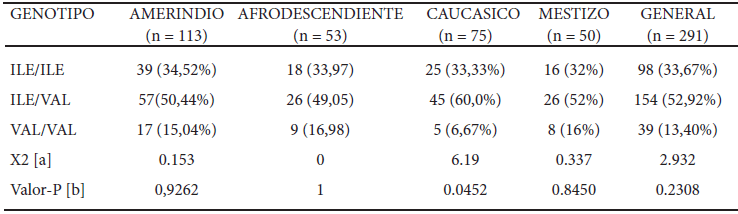
n = número de individuos, [a] Prueba de Chi Cuadrado de Pearson, [b] Diferencia significativa entre genótipos (P< 0.05)
Discusión
La población venezolana es multiétnica, se compone principalmente de personas de origen Ibérico, africano y nativo americano (amerindio). La explicación de estos hallazgos se relaciona con la historia de la fundación de nuestro país. Venezuela recibió una gran inmigración de países como España, Italia, Portugal y Alemania en la última etapa del siglo XIX y en la primera etapa del siglo XX. Además de la alta inmigración africana en la época de la colonia debido al tráfico de esclavos, por esto no es extraño encontrar interesante las frecuencias de los polimorfismos genéticos de enzimas que metabolizan fármacos. Los polimorfismos en los genes GSTs pueden conducir, a la pérdida o a la expresión de la enzima que posee una actividad catalítica diferente de la proteína de tipo salvaje. Dado que las enzimas GSTs desempeñan un papel vital en la defensa celular contra compuestos tóxicos, tales como los carcinógenos, el polimorfismo de los genes GSTs en los venezolanos puede predisponer a enfermedades causadas por xenobióticos.
La distribución de los genotipos nulo GSTM1- y GSTT1-varía entre los diferentes grupos étnicos. Varios estudios poblacionales han reportado una prevalencia que oscila de 47 a 58% para GSTM1- y de 13% a 25% para GSTT1-en poblaciones europeos. En las poblaciones africanas la frecuencia de GSTM1- va desde 23% a 48% y de GSTT1- va desde 15 a 26% y en las poblaciones asiáticas la frecuencia va de 33% a 63% para el genotipo GSTM1-y de 20% a 53% para el GSTT1- (27, 28, 29).
El genotipo nulo de GSTM1- en la población general de Venezuela fue de 41%. En la población afrodescendiente fue de 32%, lo cual es consistente con lo observado previamente en poblaciones afroamericanas donde se reportó alrededor de un en un 28 % (27, 28). Por otra parte, se encontró que la frecuencia de GSTM1- en la población mestiza Venezolana fue de 38%, similar a lo reportado en poblaciones mestizas mexicanas con un 42% (30) y mestizos urbanos venezolanos con un 52% (24). En cuanto a la población amerindia, la frecuencia del genotipo GSTM1- fue del 35%, frecuencia muy similar a la reportada en poblaciones asiáticas, particularmente en Japón (29), así como en otras poblaciones amerindias de América del Sur como en Argentina, Paraguay (31, 32) y Brasil (33, 34), sin embargo en un estudio llevado a cabo en 5 tribus amerindias venezolanas el GSTM1-vario entre 15 y 54% (24). Por otro lado, la frecuencia de GSTM1- en los caucásicos fue 54% similar a lo reportado para las poblaciones caucásicas de América (9, 28) y europea (27, 35), donde se encontró alrededor del 53%.
En lo que se refiere al genotipo nulo GSTT1- se encontró en una frecuencia de 15% en la población en general, en un 25% en la población afrodescendiente resultado que es consistente con los reportados para las poblaciones afroamericanas donde este genotipo se observó en un 24% (28), sugiriendo el origen étnico de la población estudiada. En mestizos venezolanos la frecuencia GSTT1- fue de 11% igual a la reportada en mestizos mexicanos y venezolanos (30,36, 24), lo que indica que algunas poblaciones mixtas americanas comparten el mismo linaje racial en su acervo genético. Sin embargo, en los amerindios fue del 8%, lo que difiere con lo reportado por las poblaciones de Asia (29,37) y similar a lo encontrado en 5 tribus venezolanas donde osciló entre 0 y 11% (24), mientras que en la población caucásica fue de 21%, frecuencia muy similar a la observada en otras poblaciones del mismo origen (9, 27, 28, 35).
La combinación de genotipos de GSTM1 y GSTT1 doble nulo (GSTM1- / GSTT1-) en la población amerindia fue del 2% (Tabla II), esta frecuencia es menor que la reportada en los asiáticos (27,37), pero muy similar a la observada en las poblaciones del sur de la India (38) Turquía (39, 40) e Irán (41, 42). Se observó la mayor frecuencia de genotipos nulos en población caucásica (8%), lo cual es consistente con la reportada previamente en los europeos y los blancos americanos donde se observó alrededor del 10% (9, 27, 28, 35).
Nuestros hallazgos son consistentes con un estudio reciente llevado a cabo en poblaciones nativas y urbanas de Venezuela, donde se encontró que el genotipo GSTM1- fue el más bajo para los mestizos venezolanos (11%) y amerindios (11,4%) (24).
En general se acepta que las primeras poblaciones de América eran probablemente un pequeño grupo de poblaciones ancestrales del sur-centro de Siberia que cruzaron el estrecho de Bering hace unos 30.000 años para colonizar Beringia y posteriormente migraron al interior de América en períodos variables de tiempo (35). De acuerdo con esto, la frecuencia de GSTM1 observada en la población amerindia tal vez podría reflejar la frecuencia de estos genotipos en las poblaciones ancestrales de Siberia y Beringia que muestran, una vez más, el potencial hombre americano asiático.
La combinación de genotipos nulos de GSTM1- y GSTT1- se ha relacionado con un aumento de la aneuploidía resultante de la exposición al benceno (37), tumores de recto (39), cáncer de pulmón (43) y el cáncer de pulmón entre los no fumadores expuestos al medio ambiente con el humo del tabaco, principalmente en caucásicos y afroamericanos (44). A pesar de la frecuencia relativamente baja de estas combinaciones, los investigadores han sido capaces de establecer un mayor riesgo de cáncer en los individuos que llevan este genotipo doble nulo.
En este estudio se observa una baja frecuencia del genotipo GSTT1 en comparación con las poblaciones de origen asiático. Este hallazgo se debe investigar para determinar las posibles causas y su significado para la población amerindia venezolana. Los factores estocásticos (por ejemplo, de cuello de botella y el efecto fundador, muy comunes en las tribus amerindias) y otros factores tales como la adaptación del medio ambiente, la endogamia, y mezcla con otro grupo étnico o la distribución geográfica pueden explicar las diferencias observadas en este estudio.
Las frecuencias de los polimorfismos de GSTP1 en población general fueron de 33.67% Ile/Ile, 52,92% Ile/Val y 13,40% para Val/Val. En individuos de origen indígena las frecuencias de los diferentes genotipos fueron 34,52% Ile/Ile, 50,44% Ile/Val y 15,04 Val/Val, frecuencias estas muy cercanas a las observadas en coreanos (45) y en concordancia con lo reportado en poblaciones indígenas similares (46,47) En individuos afrodescendientes las frecuencias fueron de 33,96% Ile/ Ile, 49,05 Ile/Val y 16,68% Val/Val, las cuales coinciden con las frecuencias reportadas en poblaciones de origen africano en Brasil (48) y con individuos afroamericanos de Norteamérica (49) donde las frecuencias encontradas fueron de 35% Il/Ile, 46% Ile/Val y 19% Val/Val. En mestizos las frecuencias genotipicas variaron desde un 32% Ile/Ile, 52% Ile/Val hasta un 16% Val/ Val. Los caucásicos presentaron la mayor frecuencia de heterocigotos (60%) y la menor frecuencia de homocigotos mutantes (6,67%), datos similares a los reportados para poblaciones caucásicas europeas (27, 49, 50). En los cuatro grupos estudiados la mayor frecuencia fue la de Ile/Val y la mayor frecuencia para Val/Val fue observada en afrodescendientes, sugiriendo que los individuos de este grupo pueden tener una mayor probabilidad de desarrollar una enfermedad asociada con la ausencia o baja actividad de esta enzima. Los resultados de este trabajo proporcionan una completa información con respecto a las variaciones de las secuencias de GSTM1, GSTT1 y GSTP1. Estos hallazgos pueden ser útiles en estudios de casos y controles que asocian estos polimorfismos con efectos de riesgo de enfermedades y respuesta a tratamiento en Venezuela.
Agradecimiento
Este trabajo fue financiado por los proyectos FONACIT MC-2007001066, MC- 2008001053, PEII-2012001275, CDCH-UCV PI 0987122013, PEII 2013001768.
Conflictos de intereses
Los autores declaran no tener ningún conflicto de intereses para el presente resultado de la investigación.
Referencias
- Adler V, Yin Z, Fuchs SY, Benezra M, Rosario L, Tew KD, et al. Regulation of JNK signaling by GSTp. EMBO J 1999;18(5):1321-1334.
- Strange RC, Spiteri MA, Ramachandran S, Fryer AA. Glutathione-S-transferase family of enzymes. Mutat Res 2001; 82(1-2):21-26
- Bailey LR, Roodi N, Verrier CS, Yee CJ, Dupont WD, Parl FF. Breast cancer and CYPIA1, GSTM1, and GSTT1 polymorphisms: evidence of a lack of association in Caucasians and African Americans. Cancer Res 1998;58(1):65-70.
- Guthenberg C, Warholm M, Rane A, Mannervik B. Two distinct forms of glutathione transferase from human foetal liver. Purification and comparison with isoenzymes isolated from adult liver and placenta. Biochemical Journal 1986;235(3):741–745.
- Mitchell AE, Morin D, Lame MW, Jones AD. Purification, mass spectrometric characterization, and covalent modification of murine glutathione S-transferases. Chemical Research in Toxicology 1995;8(8):1054–1062.
- Seidegård J, Vorachek WR, Pero RW, Pearson WR. Hereditary differences in the expression of the human glutathione transferase active on trans-stilbene oxide are due to a gene deletion. Proc Natl Acad Sci USA 1988;85(19):7293-7.
- Roth MJ, Dawsey SM, Wang G, Tangrea JA, Zhou B, Ratnasinghe D, et al. Association between GSTM1*0 and squamous dysplasia of the esophagus in the high risk region of Linxian, China. Cancer Lett 2000;156(1):73-81.
- Pemble S, Schroeder KR, Spencer SR, Meyer DJ, Hallier E, Bolt HM, et al., Human glutathione S-transferase theta (GSTT1): cDNA cloning and the characterization of a genetic polymorphism. Biochem J 1994;300 (Pt 1):271-276.
- Strange RC, Fryer AA. The glutathione S-transferases: influence of polymorphism on cancer susceptibility. IARC Sci Publ 1999;(148):231-249.
- Smith CM, Wells SA, Gerhard DS. Mapping eight new polymorphisms in 11q13 in the vicinity of multiple endocrine neoplasia type 1: identification of a new distal recombinant. Hum Genet 1995;96:377-87.
- Bosch TM, Meijerman I, Beijnen JH, Schllens JHM. Genetic polymorphisms of Drug-Metabolising Enzymes and Drug Transporters in the Chemotherapeutic Treatment of Cancer. Clin Pharmacokinet 2006;45 (3):253-285.
- Harries, L.W., Stubbins, M.J., Forman, D., Howard, C. Identification of genetic polymorphism at the glutathione S-transferase P locus and association with susceptibility to bladder, testicular and prostate cancer. Carcinogenesis 1997;18:641-644.
- Van EM, Roelofs HM, Dekker S, Mulder CJ, Wobbes T, Jansen JB, et al. Polymorphic expression of the glutathione S-transferase P1 gene and its susceptibility to Barrett’s esophagus and esophageal carcinoma. Cancer Res 1999;59:586-589.
- Hayes JD, Pulford DJ. The glutathione S-transferase supergene family: regulation of GST and the contribution of the isoenzymes to cancer chemoprotection and drug resistance. Crit Rev Biochem Mol Biol 1995;30(6):445-600.
- Lear JT, Heagerty AH, Smith A, Bowers B, Payne CR, Smith CA, et al. Multiple cutaneous basal cell carcinomas: glutathione S-transferase (GSTM1, GSTT1) and cytochrome P450 (CYP2D6, CYP1A1) polymorphisms influence tumors numbers and accrual. Carcinogenesis 1996;17(9):1891-1896.
- Yuille M, Condie A, Hudson C, Kote-Jarai Z, Stone E, Eeles R, et al. Relationship between glutathione S-transferase M1, T1, and P1 polymorphism and chronic lymphocytic leukemia. Blood 2002;99:4216–4218.
- Engel LS, Taioli E, Pfeiffer R et al. Pooled analysis and meta-analysis of glutathione S-transferase M1 and bladder cancer: a HuGE review. Am J Epidemiol 2002;156: 95-109
- Geisler AS, Olshan AF. GSTM1, GSTT1, and the risk of squamous cell carcinoma of the head and neck: a mini-HuGE review. Am J Epidemiol 2001;154:95-105
- Reszka E, Wasowicz W. Significance of genetic polymorphisms in glutathione S-transferase multigene family and lung cancer risk. Inter J Occup Med and Enviro Health 2001;14:99-113.
- Knudsen LA, Loft SH, Autrup H. Risk assessment: the importance of genetic polymorphisms in man. Mutat Res 2001;483:83-88.
- Cotton SC, Sharp L, Little J, Brockton N. Glutathione S-transferase polymorphisms and colorectal cancer: a HuGE review. Am J Epidemiol 2000;151:7-32.
- Capote LG. Aspectos epidemiológicos del cáncer en Venezuela. Rev Venez Oncol 2006;18(4):269-281.
- Chiurillo MA. Genomic biomarkers related to drug response in Venezuelan populations. Drug Metab Pers Therap 2015;30(1):33–41
- Chiurillo MA, Griman P, Santiago L, Torres K, Moran Y, Borjas L. Distribution of GSTM1, GSTT1, GSTP1 and TP53 disease-associated gene variants in native and urban Venezuelan populations. Gene 2013;531(1):106-11.
- Arand M, Mühlbauer R, Hengster J, Jäger E, Fuchs J, Winkler L and Oesch F. A multiplex polymerase chain reaction protocol for the simultaneous analysis of the Glutathione S-Transferase GSTM1 and GSTT1 polymorphisms. Anal Biochem 1996;236:184-186.
- Casson A, Zheng Z, Porter G, Guernsey D. Genetic polymorphisms of microsomal epoxide hydroxylate and glutathione S-transferase M1, T1 and P1, interactions with smoking, and risk for esophageal (Barrett) adenocarcinoma. Cancer Detect & Prevent 2006;30:423-431.
- Garte S, Gaspari L, Alexandrie AK, Ambrosone C, Autrup H, Autrup JL, et al., E. Metabolic gene polymorphism frequencies in control populations. Cancer Epidemiol Biomarkers Prev 2001;10(12):1239-1248.
- Chen CL, Liu Q, Relling MV. Simulthaneus characterization of Glutathione S-Transferase M1 and T1 polymorphism by polymerase chain reaction in Americans whites and blacks. Pharmacogenetics 1996;6:187-191.
- Naoe T, Takeyama K, Yokozawa T, Kiyoi H, Seto M, Uike N, et al., Analysis of genetics polymorphism in NQ01, GSTM1, GSTT1 and CYP3A4 inn 469 japanese patients with therapy-related leukemic/myelodysplastic syndrome and de novo acute myeloid leukemia. Clin Cancer Res 2000;6:4091-4095.
- Montero R, Araujo A, Carranza P, Mejía-Loza V, Serrano L, Albores A, et al. Genotype frequencies of polymorphic GSTM1, GSTT1 and Cytochrome CYP1A1 in Mexican. Human Biol 2007;79(3):299-312.
- Bailliet G, Santos MR, Alfaro EL, Dipierri JE, Demarchi DA, Carnese FR et al. Allele genotype frequencies of metabolic genes in Native Americans from Argentina and Paraguay. Mutat Res 2007;627:171-177.
- Gaspar PA, Hutz M, salzano F, Hill K, Hurtado M, Petzl-Erler L, et al. Polymorphisms of CYP1a1,CYP2e1, GSTM1, GSTT1, and TP53 genes in Amerindians. Am J Phys Anthropol 2002;119 (3):249-256.
- Klautau-Guimaraes MN, De Oliveira C, Ferreira R, Oliveira S, Koppe C, Hatagima A, et al. Distribution of Glutathion S-transferase GSTM1 and GSTT1 null in Brazilian Amerindians. Genet and Mol Biol 2005;28(1):32-35.
- Arruda VR, Grignolli CE, Goncalvez MS, Soares MC. Menezes R, Saad STO, et al. Prevalence of homozygosity for the deleted alleles of glutathione S-transferase umu (GSTM1) and theta (GSTT1) among distinct ethnic groups from Brazil: relevance to environmental carcinogenesis? Clin Genet 1998;54:210-214.
- Lell JT, Sukernick RI, Starikovskaya YB, Su B, Jin L, Schurr TG, , et al. The dual origin and Siberian affinities of Native American Y Chromosomes. Am J Hum 2002;70(1):192-206.
- Sandoval-Carrillo A, Aguilar-Duran M, Vázquez-Alaniz F, Castellanos-Juárez FX, Barraza-Salas M, Sierra-Campos E, et al. Polymorphisms in the GSTT1 and GSTM1 genes are associated with increased risk of preeclampsia in the Mexican mestizo population. Genet Mol Res 2014;13 (1):2160-2165
- Kim SY, Choi JK, Cho YH, Chung EJ, Paek D, Chung HW. Chromosomal aberrations in workers exposed to low levels of benzene: association with genetic polymorphisms. Pharmacogenetics 2004;14(7):453-63.
- NaveenAT,AdithanC,PadmajaN,Satyanarayanamoorthy K, Anitha P, Gerard N, et al. Glutathione S-transferase M1 and T1 null genotype distribution in south Indians. Eur J Clin Pharmacol 2004;60:403-406.
- Ates NA, Tamer L, Ates C, Erkan B, Elipek T, Ocal K, et al. Glutathione S-tranferase M1, T1 and P1 genotypes and risk for development to colorectal cancer. Biochem Genet 2005;43:149-163.
- Berber U, Yilmaz I, Yilmaz O, Haholu A, Kucukodaci Z, Ates F , et al. CYP1A1 (Ile462Val), CYP1B1 (Ala119Ser and Val432Leu), GSTM1 (null), and GSTT1 (null) Polymorphisms and Bladder Cancer Risk in a Turkish Population. Asian Pacific J Cancer Prev 2014;14(6):3925-3929.
- oasser E, Azarpira N, Shirazi B, Saadat M and Geramizadeh B. Genetic polymorphisms of glutathione-s-transferase M1 and T1 genes with risk of diabetic retinopathy in Iranian population. Iran J Basic Med Sci 2014;17:351-356
- Safa F, Shahsavari G and Abyaneh R. Glutathione s-transferase M1 and T1 genetic polymorphisms in Iranian patients with glaucoma. Iran J Basic Med Sci 2014;17:332-336.
- Wenzlaff AS, Cote ML, Bock CH, Land SJ and Schwartz AG. GSTM1, GSTT1 and GSTP1 polymorphisms, environmental tobacco smoke exposure and risk of lung cancer among never smokers: a population-based study. Carcinogen 2005;26(2):395-401.
- Cote ML, Kardia SL, Wenzlaff AS, Land SJ and Schwartz AG. Combinations of glutathione S-transferase genotypes and risk of early-onset lung cancer in Caucasians and African Americans: a population-based study. Carcinogen 2005;26(4):811-819.
- Cho HJ, Lee SY, Ki CS, Kim JW. GSTM1, GSTT1 and GSTP1 polymorphism in the Korean population. J Korean Med Sci 2005;20:1089-1092.
- Ruiz Y, Chiurillo MA, Borjas L, Phillips C, Lareu M, Carracedo Á. Analysis of the SNPforID 52-plex markers in four Native American populations from Venezuela. Forensic Sci Int Genet 2012;(6):142–145.
- Griman P, Moran Y, Valero G, Loreto M, Borjas L, Chiurillo MA. CYP2D6 gene variants in urban/admixed and Amerindian populations of Venezuela: pharmaco-genetics and anthropological implications. Ann Hum Biol 2012;(39):137–142.
- ossini A, Ropozo D, Amorin L, Macedo J, Medina R, Neto J, et al. Frequencies of GSTM1, GSTT1 and GSTP1 polymorphism in a Brazilian population. Genet and Mol Res 2002;1(3):233-240.
- Watson MA, Stewart RK, Smith GBJ, Masey TE and Bell DA. Human Glutathione S-Transferase P1 polymorphism: relationship to lung tissue enzyme activity and population frequencies distribution. Carcinogen 1998;(19):275-280.
- Harries W, Stubbins M, Forman D, Howard G, Wolf C. Identification of genetic polymorphisms at the glutathione S-transferase Pi locus and association with susceptibility to bladder, testicular and prostate cancer. Carcinogen 1997;(18):641–644.