Imagine una célula hepática y un podocito. Las dos provienen del mismo ser vivo, digamos, un ser humano. Por supuesto tienen la misma secuencia genética, poseen núcleo y organelos, son alimentadas por el mismo flujo sanguíneo; sin embargo, sus fenotipos (sus características visibles) son completamente diferentes y distinguibles. ¿Qué las hace particulares tanto en morfología como en funcionalidad? La explicación para este fenómeno se encuentra en parte en la epigenética.
¿Qué es la epigenética?
Sin entrar en mucho detalle en los orígenes y la controversia alrededor de este término, la definición más actual y aceptada de epigenética comprende los cambios colectivos en el fenotipo que son heredables debido a procesos que surgen independientemente de la secuencia primaria del ADN (1). Ejemplos clásicos de este fenómeno lo vemos en las diferencias entre gemelos idénticos, en los cambios progresivos de la función de la cromatina durante el envejecimiento normal, y en la inactivación del cromosoma X en las hembras (2). En este sentido, los mecanismos epigenéticos abarcan las modificaciones de las bases nucleotídicas y de las proteínas asociadas al ADN dentro del núcleo, el remodelaje de la cromatina y los ARN no codificadores (1, 3).
Tenemos entonces que la expresión de los genes en las células es regulada a dos niveles: una regulación lábil que comprende el control momento-a-momento de activadores y represores de la transcripción, y la regulación epigenética, que comprende el control de la expresión genética lo suficientemente estable para ser transmitido de células progenitoras a células hijas (4).
Estructura básica de la cromatina
La cromatina, el polímero de ADN-nucleosoma, es una molécula dinámica existente en muchas configuraciones repartidas entre heterocromatina -cromatina fuertemente compactada e inactiva-, y eucromatina, la cromatina abierta transcripcionalmente activa [5]. La unidad básica de la cromatina o nucleosoma consiste en un octámero de proteínas que contiene dos moléculas de cada histona (H2A, H2B, H3 y H4), al cual se “enrolla” una cadena de aproximadamente 147 pares de bases de ADN (Fig.1). A su vez, los nucleosomas se pueden empacar de forma irregular y plegarse en estructuras de orden superior que se producen en diversas regiones del genoma dependiendo del tipo o de las etapas del ciclo celular.
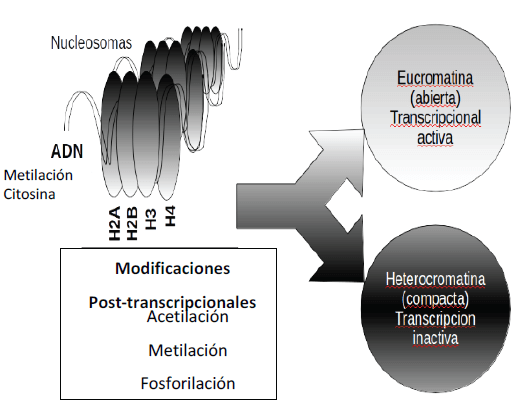
FIGURA 1.
En las células eucariotas, las principales funciones de las histonas son:
- la protección y el empacamiento del material genético; y
- el andamio para la regulación de procesos tales como la transcripción, la replicación y la reparación del ADN [6].
La disposición de los nucleosomas puede ser alterada por modificaciones post-traduccionales de las histonas. Estas modificaciones se establecen como resultado de un proceso dinámico llevado a cabo por diferentes enzimas, cuyas actividades estan reguladas por otros moduladores asociados. Aunque las enzimas implicadas en modificar a las histonas son específicas de la secuencia que rodea el residuo de aminoácido alterado, se sabe que pueden poseer sustratos fuera de las moléculas de histonas [7].
Modificaciones de las bases del ADN
El propio ADN puede experimentar modificaciones covalentes (p.ej.,metilación) que no alteran el patrón de apareamiento de Watson-Crick (Citosina-Guanina, Adenina-Timina); en procariotes la metilación se puede dar en los residuos citosina y adenosina mientras en eucariotes la metilación solo se da en el residuo citosina; en particular, en los vertebrados la metilación de citosina de los dinucleótidos CpG (citosina-fosfato-guanina) conduce a la supresión de la expresión genética cuando se producen en una región reguladora [5]. Es así como la metilación del ADN en la región promotora puede controlar la transcripción de genes mediante el reclutamiento de las proteínas de unión a metilcitosina (MBP por sus siglas en inglés Methyl-Binding Protein) que reconocen secuencias de ADN metilado.
El control de la metilación y desmetilación se encuentra en balance en condiciones fisiológicas. Las metiltransferasas de ADN (DNMT, EC 2.1.1.37) catalizan la transferencia de grupos metilo a ADN a partir de S-adenosilmetionina (SAM) transformando la citosina en 5-metilcitosina, mientras que el proceso de desmetilación está a cargo de la familia de proteínas TET (por Ten-Eleven Translocation).
Las DNMT se pueden agrupar en cuatro familias distintas basadas en la homología de secuencia dentro de sus dominios catalíticos C-terminal: familias DNMT1, DNMT2 y DNMT3 y la familia Cromometilasa, único en el reino de las plantas [8]. En los mamíferos, DNMT1 es la metiltransferasa de mantenimiento (durante la replicación del ADN en la división celular), que preferentemente metila ADN hemimetilado de doble cadena, mientras que DNMT3 se conoce como la metiltransferasa de novo (metila el ADN de doble cadena no metilado o hemimetilado). El genoma de mamíferos codifica dos metiltransferasas de citosina funcionales de la familia DNMT3, DNMT3A y DNMT3B, y un tercer homólogo, DNMT3L, que carece de actividad metiltransferasa citosina y funciona como un factor regulador en las células germinales. DNMT3A y DNMT3B se expresan en una variedad de tejidos adultos, pero en niveles inferiores a DNMT1 [8].
Las proteínas TET son responsables de la conversión de 5-metilcitosina en 5-hidroxi-metilcitosina, 5-formilcitosina y 5-carboxilcitosina a través de tres reacciones de oxidación consecutivas, para luego dar paso al reemplazo de la citosina modificada por citosina no modificada (9).
Los patrones de metilación de ADN pueden proporcionar información de muchos aspectos de la biología, pero también funcionan como biomarcadores en medicina (10). El patron de metilacion del ADN aparece alterado en una serie de patologías como por ejemplo el cáncer (9), la obesidad (11) y la preeclampsia [12], entre otras, así como en el envejecimiento [13]. En el caso del cáncer incluyen metilación de las islas CG en los promotores de genes supresores de tumores. También se ha visto que la Malnutrición in útero altera el patrón de metilación del ADN en células germinales que son subsecuentemente transmitidas y mantenidas en células somáticas, por lo tanto influenciando el riesgo de enfermedades en la descendencia (14,15).
Modificaciones post-traduccionales de la cromatina o el “Código de las histonas”.
La region amino terminal de las histonas puede ser modificada enzimáticamente por metilación de los residuos lisinas (Lys o K) o arginina (Arg o R), acetilación, biotinilación, sumoilación o ubiquitinización de lisinas, fosforilación de serina (Ser) o treonina (Thr), entre otros (tabla 1).
TABLA 1. Modificaciones post-traduccionales identificadas en las histonas.
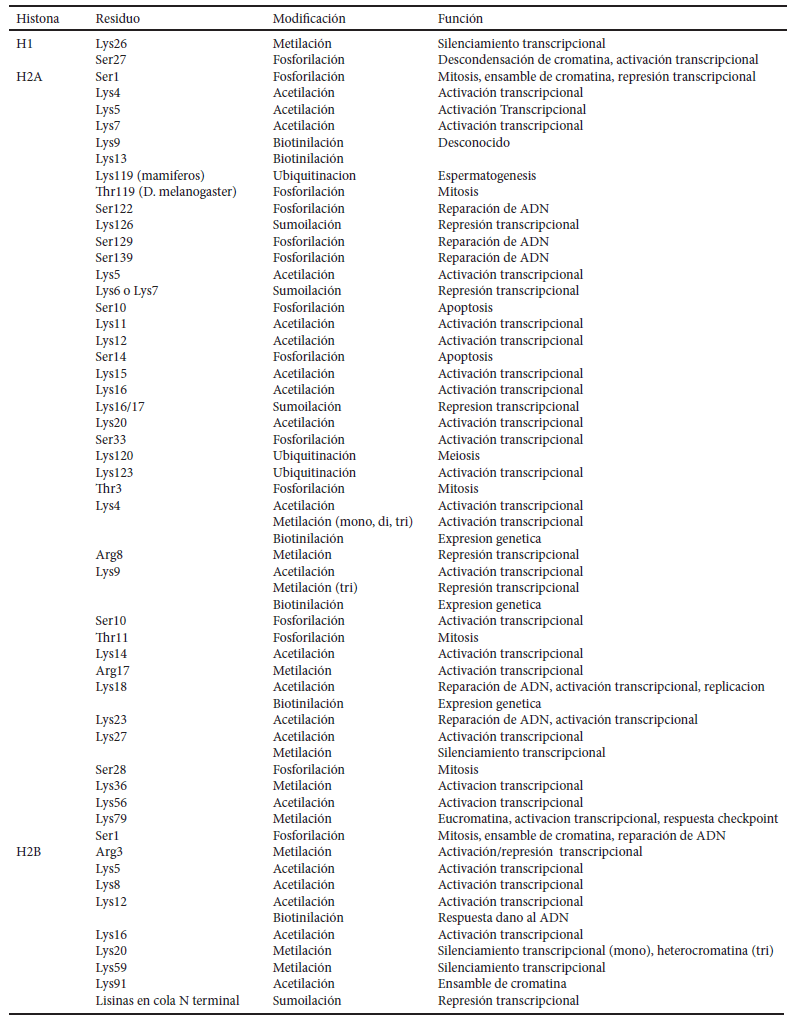
La acetilación de lisinas en las histona 3 (H3) y la histona 4 (H4) asociada con la transcripción activa es el resultado de la interacción entre las histonas acetilasas y desacetilasas. Las Histona acetiltransferasas (HAT; EC 2.3.1.48) catalizan la transferencia de un grupo acetilo del acetil-CoA a lisinas específicas en las histonas. Adicionalmente, coactivadores de la transcripción, como p300/CREB Proteína de Unión (PCAF), presentan actividad acetiltransferasa [16]. En contraparte, las histona desacetilasas (HDAC; EC 3.5.1.98) son las responsables de catalizar la eliminación de grupos acetilo de las histonas y se clasifican en clase I, II o III según los dominios de secuencias homólogas. La actividad de HDAC es inhibida por el butirato, tricostatina A (TSA) y ácido hidroxámico suberoilanilida (SAHA), con la lista de los inhibidores de HDAC en crecimiento debido al creciente interés por sus efectos en el area clínica como fármacos contra el cáncer, la inflamación, las enfermedades neurológicas y virales [17, 18].
La metilación de histonas es también una modificación epigenética dinámica gracias a la participacion de Histona-lisina N-metiltransferasas (HMTasa, EC. 2.1.1.43) o protein-arginina metlil-transferasas (PRMT, E.C.2.1.1.125) e Histona-desmetilasas (por ejemplo LSD, E.C. 1.14.11.B) [19, 20]. El residuo de lisina puede estar mono-, di- o trimetilado y, dependiendo de la posición en la cadena de histona, las lisinas metiladas se asocian con la activación de la transcripción o la supresión génica (20). Es asi como H3K9me1, H3K27me1, H3K36me3, H3K79me2/3 y H2BK5me1 señalan genes transcripcionalmente activos, mientras H3K27m3 se consigue en promotores represados y H3K9me3 indica heterocromatina silenciada (20). El residuo de arginina en las histona puede ser monometilado o dimetilado, en este último caso dando lugar a dimetilarginina simetrica o asimetrica (21). Similar a lo encontrado con las metil-lisinas, la metilación de arginina en las histonas puede indicar tanto represión (H3R8) como activación (H3R17, H4R3) transcripcional (22).
La ubiquitinación se refiere a la adición de una o varias moléculas de ubiquitina (la ubiquitina es una proteina de 76 aminoácidos) al grupo epsilon amino de lisinas, modificando la funcion de la proteina (monoubiquitination) o marcandola para su posterior degradación por el proteasoma 26S (23). Las histonas son mayormente monoubiquitiniladas y esta ubiquitinacion puede afectar a su vez a otras modificaciones de histonas, como metilación y acetilación (23).
A parte de su papel en la condensación cromosómica y la transcripción, la fosforilación de histonas, en particular la fosforilación de la variante H2AX, juega un papel en la respuesta al daño y reparación de ADN (23).
La sumoilación consiste en la adición de SUMO (familia de proteínas similares a ubiquitina, por sus siglas en inglés (Small Ubiquitin-related MOdifier protein) a residuos lisina, particularmente en H4, lo cual conduce al reclutamiento de HDAC o HP1 y por ende a la represión transcripcional (24).
El ARN también participa en procesos epigenéticos
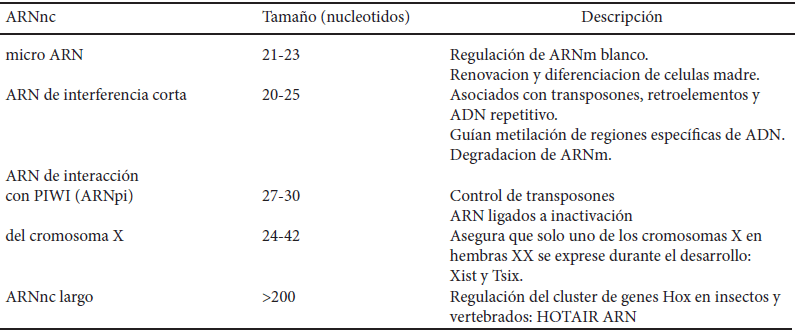
Los ARN no codificadores (ARNnc) son ARN transcritos a partir del ADN pero que no son traducidos en proteínas. Muchos son funcionales y están involucrados en el proceso y regulación de otros ARN tales como ARNm, ARNt y ARNr. ARNnc tipo-procesador incluye ARN nuclear pequeño (ARNnp) involucrados en el empalme (splicing), ARN nucleolar pequeño (ARNnop) que modifica nucleótidos en ARNt y otros ARN. Otros ARNnc pequeños tales como micro-ARN (ARNmi) y ARN de interferencia corta (ARNic) estan involucrados en la regulación de ARNm y cromatina. Ademas, estan los ARNnc largos (>200nt). Todos estos ARNnc forman una red de procesos, la ARN-infraestructura, que se expande en la célula no solo espacialmente ya que el ARN se mueve por la célula, pero también temporalmente ya que el ARN regula procesos genéticos durante el ciclo celular (25).
Los ARNmi se derivan de transcritos que se pliegan sobre sí mismos para formar caracteristicas estructuras de “gancho de pelo”, mientras que los otros tipos de ARN endogenos pequeños se derivan bien de “gancho de pelo” largos que dan lugar a una gran diversidad de pequeños ARN de interferencia como de moléculas dobles de ARN o de precursores sin ningún indicio de doble cadena (ARNpi) (26). Los ARNmi se aparean con ARNm lo que conduce a la represión de la transcripción.
Existe una intrincada conexión entre los ARNnc y los demás componentes del epigenoma, lo cual agrega nuevos retos y posibilidades terapéuticas, particularmente en oncología (27).
Clasificación de ARN no-codificadores (25)
Perspectivas y desafios para el laboratorio clínico
El EPIGENOMA es esencialmente la interfase entre el genoma y el medio ambiente (9). La información presentada en las páginas que anteceden, es apenas un abrebocas de lo que representa la complejidad de los procesos epigenéticos hasta ahora reconocidos. La epigenetica es un área aun naciente de menos de medio siglo que actualmente “de moda”. No obstante, el continuo avance de las investigaciones en el campo de la epigenetica es clave para la identificacion de marcadores” epigenéticos que pudieran correlacionarse con algunas condiciones de salud/enfermedad.
En este sentido, los marcadores epigenéticos son nuevos marcadores biológicos que deben entrar en el arsenal de pruebas que el laboratorio clínico puede detectar y debe estar en la obligación de actualizar no solo su conocimiento sino en su aplicación. El laboratorio del futuro a mediano plazo tendrá a su disposición nuevas y mejores herramientas para estudiar el patrón de metilación de las células, la detección de ARNnc y el código de histona y así contribuir al diagnostico y/o pronóstico de una enfermedad mucho antes de que aparezcan los primeros síntomas.
Referencias
- Tollesfbol TO. Epigenetics: The New Science of Genetics. En: Hanbook of Epigenetics: The New Molecular and Medical Genetics, Editor: T Tollefsbol. Editorial Academic Press Elsevier. 2011.
- Jiang Y-Z, Manduchi E, Jimenez JM, Davies PF. Endothelial Epigenetics in Biomechanical Stress. Arterioscler. Thromb Vasc Biol 2015;35:00. DOI10.1161/ ATVBAHA.115.303427.
- Felsenfeld G. A brief History of Epigenetics. En: Cold Spring Harb Perspect Biol. 2014;1;6(1). pii: a018200. doi: 10.1101/cshperspect.a018200.
- Jiang Y-H, Bressler J, Beaudet AL. Epigenetics and Human Disease. Ann Rev Genomics Hum Genet. 2004;5:479-510.
- Allis CD, Jenuwein T. Reinberg D. Chapter three: Overview and Concepts. In: Epigenetics. Editors Allis CD, Jenuwein T, Reinberg D. Cold Spring Harbor Laboratory Press, Cold Spring Harbor, New York, 2009, pp 502
- Shahbazian MD, Grunstein M. Functions of Site-Specific Histone Acetylation and Deacetylation. Annu Rev Biochem 2007;76:75-100.
- Pradhan S, Chin HG, Pierre-Olivier Estève P-O, Jacobsen SE SET7/9 mediated methylation of non-histone proteins in mammalian cells. Epigenetics 2009;4:383-387.
- Goll MG, Bestor TH Eukaryotic Cytosine Methyltransferases. Annu Rev Biochem 2005;74:481–514.
- Kroeze LI, van der Reijden BA, Jansen JH. 5-Hydroxymethylcytosine: An epigenetic mark frequently deregulated in cancer. Biochim Biophys Acta 2015; 1855:144-154.
- Schubeler D. Function and information content of DNA methylation. Nature 2015; 517:321-326.
- Xu X, Su S, Barnes V, De Miguel C, Pollock J, Ownby D, et al. A genome-wide methylation study on obesity. Epigenetics 2013;8(5):522-533
- White W, Brost B, Sun Z, Rose C, Craici I, Wagner S, et al. Genome-wide methylation profiling demonstrates hypermethylation in maternal leukocyte DNA in preeclamptic compared to normotensive pregnancies, Hypertension in Pregnancy 2013;32(3):257-226
- Madrigano J, Baccarelli A, Mittleman M, Sparrow D, Vokonas P, Tarantini L, et al. Aging and epigenetics: Longitudinal changes in gene-specific DNA methylation. Epigenetics 2012;7(1)63-70
- Martinez D, Pentinat T, Ribo S, Daviaud C, Bloks VW, Cebria J, et al. In utero Undernutrition in Male Mice Programs liver lipid Metabolism in the Second-Generation Offspring Involving Altered Lxra DNA Methylation. Cell Metab 2014;19:941-951.
- Radford EJ, Ito M, Shi H, Corish JA, Yamazawa K, Isganaitis E, et al. In utero undernourishment perturbs the adult sperm methylome and intergenerational metabolism. Science 2014;345(6198):1255903.
- Chen W, Bacanamwo M, Harrison DG. Activation of p300 Histone acetyltransferase Activity Is an Early Endothelial Response to Laminar Shear Stress and is essential for Stimulation of Endothelial Nitric-oxide Synthase mRNA Transcription. J Biol Chem 2008;283:16293-16298.
- Bieliauskas AV, Pflum MKH. Isoform-selective histone deacetylase inhibitors. Chem Soc Rev 2008;37:1402–1413.
- Zwergel C, Valente S, JAcob C, Mai A. Emerging approaches for histone deacetylase inhibitor drug discovery. Expert Opin Drug Discov 2015;20:1-15.
- Karytinos A., Forneris F, Profumo A., Ciossani G, Battaglioni E, Binda C, et al. A novel Mammalian Flavin-dependent Histone Demethylase. J Biol Chem 2009;284:17775-17782.
- Varier, RA, Timmers HTM. Histone lysine methylation and demethylation pathways in cancer. BBA 2011;1815:75-89.
- Herrmann F, Pably P, Eckerich C, Bedford M, Fackelmayer F. Human protein arginine methyltransferases in vivo-distinct properties of eight caconical members of the PRMT family. J Cell Science 2009;122:667-677.
- Pal S, VishwanathS N, Erdjument-Bromage H, Tempst P, Sif S. Human Swi/SNF-Associated PRMT5 Methylates Histone H3 Arginine 8 and Negatively Regulates Expression of ST7 and N23 Tumor Suppressor Genes. Mol Cell Biol 2004; 24:9630-9645.
- Herceg Z, Murr R. Chapter 3 Mechanisms of Histone Modifications.En: Hanbook of Epigenetics: The New Molecular and Medical Genetics, Editor: T. Tollefsbol. Editorial Academic Press Elsevier 2011.
- Shiio Y, Eisenman RN. Histone sumoylation is associated with transcriptional repression. PNAS 2003;23:13225-13230.
- Collins LJ, SchOnfeld B, Chen XS. The epigenetics of Non-coding RNA. En: Hanbook of Epigenetics: The New Molecular and Medical Genetics, Editor: T. Tollefsbol. Editorial Academic Press Elsevier 2011.
- Barte DP. MicroRNAs: target recognition and regulatory Functions. Cell 2009;136:215-233.
- Maia B, Rocha R, Calin G. Clinical significance of the interaction between non-coding RNAs and the epigenetics machinery. Epigenetics 2014;9(1):75-80.