Introducción
Muchos recién nacidos (RN) prematuros mueren o sufren graves consecuencias por causa del Síndrome de Dificultad Respiratoria (SDR) asociado a inmadurez pulmonar.
Existen muchas causas de insuficiencia respiratoria en el RN, incluyendo una sedación excesiva de la madre, traumatismos de la cabeza fetal durante el parto, aspiración de sangre o líquido amniótico e hipoxia intrauterina debida a opresiones del cordón umbilical alrededor del cuello. Sin embargo, la causa más frecuente es el Síndrome de Dificultad Respiratoria del recién nacido asociado a inmadurez pulmonar. Según el Anuario de Mortalidad en Venezuela, de la Dirección de Epidemiología del MPPS (Ministerio Popular Para la Salud) en el año 2008 la mortalidad por Dificultad respiratoria del recién nacido fue de 3150 niños (1889 varones, 1261 hembras) (1).
La Enfermedad de Membrana Hialina (EMH) se caracteriza por la formación de exudados secundarios que microscópicamente se observan como un material amorfo depositado en la pared de los alvéolos pulmonares, cursando tempranamente con un serio compromiso de la función respiratoria, que en muchos casos puede conducir a la muerte. Su causa fue establecida como un déficit de surfactante en 1959 por Avery y Mead (2). Si el niño no fallece por infección secundaria y otras complicaciones, en algunos casos pueden quedar graves secuelas como Displasia Broncopulmonar (3), Retinopatía severa (4) o también presentarse trastorno en el desarrollo neurológico (5).
Otras posibles influencias en su aparición son la diabetes materna, la cesárea antes del comienzo del trabajo de parto y el embarazo gemelar.
El surfactante pulmonar es una sustancia tensoactiva producida por los neumocitos tipo II, que disminuye la tensión superficial a nivel de la interfase aire-líquido en la pared alveolar previniendo su colapso (6) y sin cuya función se dificulta progresivamente la posibilidad de intercambio gaseoso conduciendo a hipoxia severa. El SDR ocurre en alrededor del 60% de los niños nacidos con menos de 28 semanas de gestación, del 15 al 20% de los nacidos entre las 32 y 36 semanas de gestación y menos del 5% en aquellos nacidos después de la semana 37 de gestación (7).
Bioquímicamente el surfactante pulmonar está compuesto por 90% de lípidos y 10% de proteínas (8). Siendo la porción lipídica (principalmente fosfolípidos como la fosfatidilcolina), el elemento más abundante del surfactante y al que principalmente se debe la disminución de la tensión superficial. Una de las apolipoproteínas de la sangre que más participa en el transporte de los lípidos en el organismo para su metabolismo es la Apolipoproteína-E (ApoE). Existen varios trabajos experimentales que indican la importancia de esta apoproteína en el metabolismo de fosfolípidos como la fosfatidilcolina y de sus niveles en el surfactante alveolar (9). Algunos estudios han hallado también que ratones deficientes en ApoE contienen menos fosfatidilcolina en el cerebro que los controles (10), mientras que por otro lado se demuestra que es necesaria la molécula completa de la proteína para unirse a su receptor y a los fosfolípidos (11). Igualmente se ha observado que la ApoE modula la homeostasis del colesterol y de los fosfolípidos en el sistema nervioso (12, 13) y que puede estimular su secreción en los neumocitos tipo II (14). Estudios de la expresión de los receptores de lipoproteínas y de ApoE en ratas de edad perinatal mostraron su influencia en la carga de lípidos por los fibroblastos en pulmón, durante la maduración pulmonar (15). Además, se han descrito casos debidos a cambios en los genes de las proteínas del surfactante, como polimorfismos de sus alelos (16) o mutaciones recesivas de alguna de ellas (17).
La apolipoproteína E (Apo E) fue descubierta al principio de la década de los setenta, formando parte del componente protéico de algunas lipoproteínas ricas en triglicéridos. De inmediato se hizo evidente que la Apo E era un determinante significativo en el metabolismo del colesterol, por lo que se convirtió en el foco de un intenso escrutinio científico (18) que continúa en nuestros días.
La Apolipoproteína-E humana circula en el plasma asociada con todas las clases de lipoproteínas. Su estructura primaria se determinó inicialmente por secuenciación de los aminoácidos de la cadena de la Apo E purificada a partir de la fracción VLDL humana (19); posteriormente se confirmó por secuenciación del ADN complementario (ADNc) obtenido a partir del ARN mensajero (ARNm) del gen APOE de rata (20) y posteriormente del ADNc del del gen (APOE) humano (21). Es una llave moduladora de la homeostasis del colesterol y lípidos sanguíneos. Es un monómero de 299 aminoácidos, con un peso molecular de 35 kDalton que consiste de dos dominios plegados de manera independiente: el dominio amino-terminal de 22 kDalton (residuos 1 al 191) que se une con mucha afinidad a los receptores celulares de lipoproteínas y débilmente con lípidos (vecindad de los residuos 136 – 150), y el dominio carboxi-terminal de 10 kDalton (residuos 216 – 299), que contiene los elementos de afinidad con los lípidos que forman parte de las partículas esféricas de lipoproteína (22). El gen de la ApoE está situado en el brazo largo del cromosoma 19 (19q13,2) tiene 3612 pares de bases de longitud esta compuesto por cuatro exones espaciados por tres intrones y es polimórfico. Aparte de algunas raras variantes que se han identificado, los tres alelos más frecuentes descritos en la población mundial son e2, e3 y e4, codominantes, que codifican las tres principales isoformas de la ApoE (E2, E3 y E4) y generan tres genotipos homocigotos y tres heterocigotos. La isoforma mas frecuente de esta apoproteína, E3, se caracteriza por tener en la posición 112 un residuo de cisteína (cisteína112) y un residuo arginina en la posición 158 (arginina158), en la región de unión a receptores. La isoforma E4 (arginina112 y arginina158) está asociada con colesterol elevado y es un factor que eleva el riesgo de sufrir demencia tipo Alzheimer (23). La isoforma E2 (cisteína112 y cisteína158) está asociada a hiperlipidemia tipo III (24,25).
La función primordial de la Apo E es servir como ligando de las lipoproteínas a sus receptores celulares; sus tres principales isoformas difieren en su afinidad por la familia de receptores de lipoproteínas y partículas ricas en triglicéridos. La isoforma E3 es la más frecuente en todos los grupos humanos especialmente en aquellas poblaciones con una antigua raigambre agrícola y de producción de alimentos como las de la cuenca del Mediterráneo. Se ha publicado que los portadores del alelo ε4 son mas sensibles a los lípidos provenientes de la dieta, esto estaría asociado con una mejor absorción a nivel intestinal de ellos, incluidas las vitaminas liposolubles como A, D, E y K, lo cual representaría una ventaja en ambientes donde la alimentación es escasa y de disponibilidad irregular (26). La presencia de la isoforma E4 de la proteína se ha descubierto relativamente elevada en muchas poblaciones aborígenes, a nivel mundial, donde persiste una tradición de subsistencia de cazador-recolector y la provisión de alimentos es, o fue hasta épocas recientes, escasa o de difícil acceso (26). En las sociedades industrializadas modernas los portadores del alelo e4 tienen los niveles más altos de colesterol total y LDL-colesterol, mientras que los portadores del alelo e3 presentan un nivel intermedio y los del alelo e2 presentan un nivel menor. Igualmente los sujetos con diferentes genotipos de APOE difieren en la eficiencia de absorción de colesterol exógeno desde el intestino delgado (27). En poblaciones indígenas americanas que aun conservan su estilo de vida ancestral, se encontró que a pesar de existir en éstas una elevada frecuencia del alelo e4 (la frecuencia de e2 es casi nula), ellas no presentan niveles anormales de colesterol total (28,29).
Aunque es el más frecuente, el alelo e3 es en términos evolutivos, de aparición reciente, de 200.000 a 260.000 años y el alelo e2 deriva de éste (30). e4, es el único presente en nuestro pariente mas cercano, el chimpancé (Pan troglodytes) y otros grandes primates relacionados y por eso es considerado “el alelo ancestral” (31). Se ha propuesto que el genotipo primitivo, E4/E4, favorecía el ahorro de energía; “thrifty genotype” (genotipo ahorrador), una combinación de alelos excepcionalmente eficientes en cuanto a la asimilación y procesamiento de alimentos (32).
Diversas investigaciones experimentales utilizando modelos animales in vivo con ratones knockout para el gen APOE, relacionan la apolipoproteína E con la síntesis y el metabolismo del surfactante pulmonar. En los mamíferos, desde los grandes primates hasta el más pequeño roedor, el gen APOE es monomórfico, solo en humanos este gen es polimórfico. Aun no se ha estudiado la posible asociación entre alguno de los diferentes alelos del gen APOE y la EMH en neonatos. Esto justifica iniciar una investigación en búsqueda de este tipo de asociación.
El objetivo de este estudio fue estudiar si existe relación entre los alelos del gen APOE y la enfermedad de membrana hialina en neonatos prematuros, en pacientes del Hospital Universitario de Caracas, Universidad Central de Venezuela.
Materiales y Métodos
La investigación se realizó entre el Servicio de Neonatología del Hospital Universitario de Caracas (HUC) y el Laboratorio de Patología Molecular de la Cátedra de Anatomía Patológica, Universidad Central de Venezuela, con aprobación del proyecto por el Departamento de Bioética del mismo hospital. Previa autorización por escrito del representante del paciente, se realizó una investigación de campo de tipo experimental.
El análisis se realizó durante un periodo de dos años (enero 2008 – diciembre 2009). Los criterios de inclusión comprendieron neonatos de edad gestacional menor de 36 semanas, con peso al nacer menor de 2.000 gramos, con o sin dificultad respiratoria. Solo se excluyeron los recién nacidos con malformaciones congénitas. La muestra fue de 64 neonatos y su recolección fue de tipo no probabilístico, mediante reclutamiento consecutivo de prematuros sufrieran o no la enfermedad.
A cada uno de los pacientes se le tomó 2 ml de sangre periférica en un tubo con EDTA en el Servicio de Neonatología, la muestra se trasladó al Laboratorio de Patología Molecular en cava refrigerada a 4º C con hielo, donde se realizó la extracción del ADN genómico (ADNg) según el protocolo del método de Bunce (34,35,36), modificado y simplificado en el Laboratorio de Patología Molecular, usando menos cloroformo y alcohol, y reduciendo la concentración del NaCl, que con frecuencia ocasiona la inhibición de la polimerasa. Con este método se logran concentraciones de ADN que oscilan entre 0.2 a 1 mg/mL para su posterior amplificación por PCR.
Para determinar la integridad y calidad del ADN obtenido se realizó electroforesis en una mini-cámara horizontal donde se corrió 8 mL de la muestra en un minigel de agarosa al 1 % en buffer TAE 0,5 X (40 mM Tris-HCl, 20 mM acido acético glacial, 1 mM EDTA pH 8,5) coloreado con bromuro de etidio.
El gen APOE fue amplificado por PCR (Termociclador modelo PTC-100 de MJ RESEARCH, INC.) utilizando los cebadores: P1: 5’-GCACGGCTGTCCAAGGAGCTGCAGGC-3’ y P2: 5’-GGCGCTCGCGGATGGCGCTGAG -3’, que abarcan una región de 273 pares de bases (pb) del exón 4 que incluye los dos sitios polimórficos del gen (37). Para un volumen final de 25 mL, por cada muestra a analizar, se agregó 5mL del ADN; 10,525 mL de H2O; 5 mL buffer 5X Green; 0,1 mL de la mezcla de dNTPs (100 mM); 1,5 mL DMSO (100%); 2,5 mL MgCl2 (25 mM); 0,125 mL de cada cebador (50 pmol/mL) y 0,125 mL de Taq-Pol Promega (5 u/mL). Las condiciones de amplificación del gen APOE fueron: temperatura de inicio de 94 ºC por 5 minutos, seguida por 40 ciclos de: desnaturalización 94ºC por 30seg, alineamiento 65 ºC por 30 seg y extensión 70ºC por 90 seg; con una temperatura de salida de 70ºC por 10 min. El producto de PCR fue visualizado en geles de poliacrilamida al 10% (proporción 29:1) y coloreado con una solución de nitrato de plata al 0,15%. También se corrió un marcador de peso molecular de 100 bp (Promega) y un control negativo.
En los pacientes analizados se determinó el genotipo del gen APOE mediante RFLP (Plomorfismo. de Longitud de Fragmento de Restricción). Para un volumen final de 10 µL se agregaron 4,48 µL de H2O, 1 µL de Buffer Multicore 10 X (Promega), 0,02 µL de BSA (Albúmina de Suero Bovino, Promega), 0,5 µL de la enzima de restricción HhaI (Promega) y 4 µL del producto de PCR. La mezcla se incubó a 37ºC por al menos tres horas. Se realizó electroforesis del producto digerido en gel de acrilamida al 10% (proporción 19:1) a 200 Volt, 85 mA por 45 minutos, se utilizó un marcador de peso molecular de 10 bp (Promega), la tinción del gel fue con una solución de nitrato de plata al 0,15%. En la figura Nº 1 se muestra un esquema de los patrones de corte de la enzima de restricción en el producto de PCR generado para cada alelo y que permite identificar el genotipo por electroforesis.
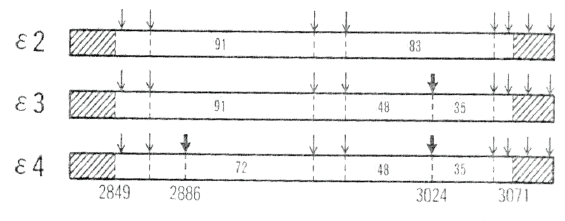
FIGURA 1. Representación esquemática de los 3 posibles alelos humanos ε2, ε3 y ε4 del gen APOE y los fragmentos obtenidos con la enzima de restricción para cada uno de estos alelos.
Se ve el de 273 pb. Las zonas sombreadas indican los cebadores. Las flechas hacia abajo muestran los sitios de corte de la enzima de restricción HhaI comunes a todos los alelos. Las flechas gruesas, indican los puntos de corte polimórficos (37).
Los genotipos presentados por los pacientes fueron agrupados siguiendo la metodología de Molero (38) y Hutz (39): Grupo APOE 2, formado por los neonatos portadores de los genotipos ε2/ε2 y ε2/ε3 (al menos un alelo ε2). Grupo APOE 3, integrado por el genotipo ε3/ε3 (ambos alelos normales) y el Grupo APOE 4 formado por los ε3/ε4 y ε4/ε4 (al menos un alelo 4). En la población estudiada no se encontró ningún portador del genotipo ε2/ε4 por lo que no fue necesario formar un cuarto grupo.
Las frecuencias de los alelos fueron estimadas por conteo directo de genes. Se utilizó la prueba de Ji-cuadrado para establecer si hay una diferencia estadísticamente significativa en la distribución de las frecuencias de los grupos y de los alelos del gen, entre la población de prematuros que no padecieron del SDR y los prematuros que sí padecieron. Esto se realizó empleando el programa Epimax, disponible online (40). Para calcular el error típico correspondiente se empleó la siguiente ecuación: Raiz cuadrada de (p(1-p)/n) . Donde p es la frecuencia del alelo y n el número de cromosomas (cromosomas 19). Se realizó la comparación de las distribuciones alélicas del gen APOE, entre la población de niños prematuros reclutada en este trabajo y una muestra de población de habitantes de Caracas, usuarios del HUC para establecer OD radios (OR) mediante una tabla de contingencia de 2 x 2 según Wolf 1955 (41), Haldane 1956 (42) y Glas 2003 (43).
Resultados
De los 64 neonatos del estudio, 27 fueron del sexo masculino (42,19%) y 37 del sexo femenino (57,81%). En la figura Nº 2, sección A, se observa corrida electroforética en gel de acrilamida (29:1) no desnaturalizante al 10% de los productos de PCR que amplifica una sección de 273 pb del exón 4 del gen APOE donde están contenidos los polimorfismos. En las sección B se aprecian los productos de PCR posterior a la digestión con la enzima de restricción HhaI de 12 pacientes recién nacidos prematuros de los cuales 5 son homocigotos para el alelo ε3 (carriles B 4, 6, 10, 11 y 13) y 3 pacientes son heterocigotos para los alelos ε3/ε4 (carriles B 2, 9 y 12) 2 son heterocigotos ε2/ε3 (carriles B 7 y 8) 1 Homocigoto ε2/ε2 (carril B 3) y un homocigoto ε4/ε4 (carril C 5). No encontramos ningún 2/4.
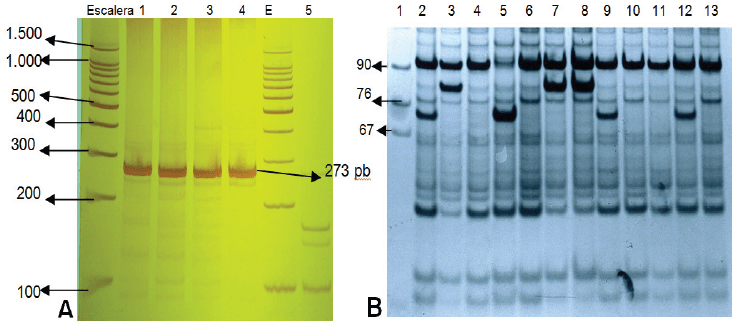
FIGURA 2. Amplificación y digestión enzimática del gen APOE. A: Electroforesis en gel no desnaturalizante de acrilamida al 10% (29:1) los productos amplificados por PCR de 273 pares de bases. Los carriles 1, 2, 3 y 4 representan los productos de PCR de los pacientes, el carril 5 de un control negativo y la E (Escalera) marcador de peso molecular de 100 pares de bases. B: Electroforesis en gel no desnaturalizante de acrilamida al 10% (19:1) los productos amplificados por PCR de 12 recién nacidos digerido con HhaI. Carril 1 marcador de peso molecular (pBR322 X Msp I). Homocigotos ε3/ε3, carriles 4, 6, 10, 11 y 13. Heterocigotos ε3/ε4 los carriles 2, 9 y 12. Heterocigotos ε2/ε3 los carriles 7 y 8. Homocigoto ε2/ε2 el carril 3 y homocigoto ε4/ε4 el carril 5.
El gen APOE se analizó en todos los pacientes, como se muestra en la Tabla 1 el alelo ε3 y el genotipo ε3/ε3 fueron los que se hallaron con mayor frecuencia. Al hacer el análisis de relación por el método estadístico de Ji-cuadrado se observó que no existe diferencia estadísticamente significativa en la distribución de los alelos al compararla por sexo, por lo cual se trataran conjuntamente ambos sexos como un todo, sin distinción.
TABLA 1. Frecuencia de los alelos y genotipos del gen APOE según distribución por sexo.
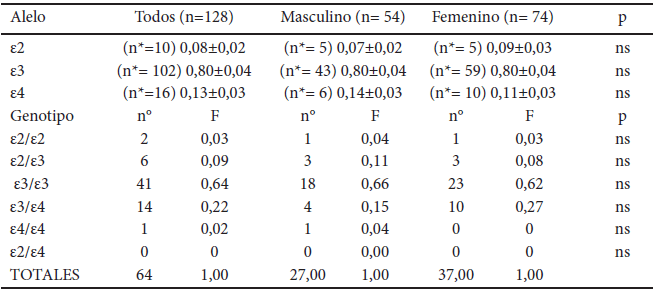
n*= número de cromosomas. n°= número de individuos. ns: no significativo
En la Tabla 2 se observa que en la población de RN estudiada, el Grupo APOE 3 es el que presenta mayor frecuencia. Desde el punto de vista clínico, 36 pacientes presentaron la EMH (56,25%) y 28 neonatos estaban sanos (43,75%). Siendo la frecuencia del alelo ε3 de 0,81 en el grupo con SDR y de 0,77 en el grupo sin EMH. No encontramos una diferencia estadísticamente significativa entre ambas poblaciones.
TABLA 2. Frecuencia de cada grupo del gen APOE en base a la presencia o ausencia de la Enfermedad de Membrana Hialina en los pacientes analizados
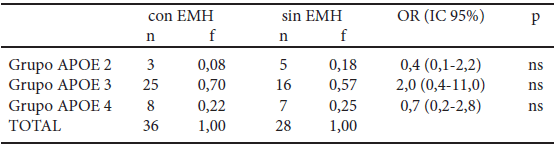
OR= Odds ratio IC=Intervalo de Confianza n= número de individuos
La Tabla 3 muestra la relación entre los grupos según el genotipo detectado en el gen APOE y de los pacientes que sufrieron de la enfermedad que sobrevivieron o no a la misma. No hay una diferencia estadísticamente significativa en la distribución por grupo de ambas subpoblaciones.
TABLA 3. Relación entre los grupos del gen APOE y la mortalidad de la Enfermedad de Membrana Hialina.
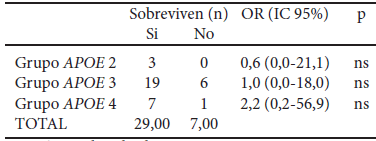
n= número de individuos
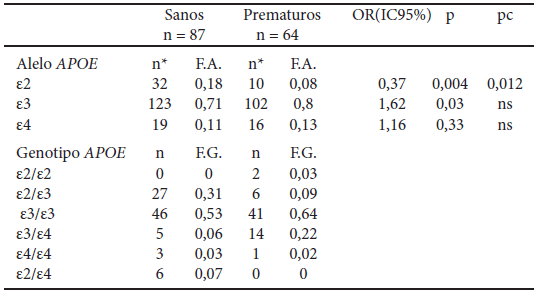
En el presente trabajo se compararon las frecuencias alélicas de dos sub-poblaciones; Prematuros Enfermos (con EMH) y Prematuros Sanos (sin EMH). No hayamos una asociación entre los polimorfismos del gen APOE y la Enfermedad de Membrana Hialina. No estaba prevista una población de “Nacidos a Termino” por ello, y en vista que no se halló ninguna asociación entre el polimorfismo del gen y la enfermedad de Membrana Hialina, se decidió comparar la distribución de frecuencias alélicas encontradas con las reportadas en un trabajo de Genética de Poblaciones (44) donde se muestran las frecuencias alélicas de este gen en diversas poblaciones venezolanas, entre ellas las de un grupo de usuarios del mismo Hospital Universitario de Caracas (población mestiza venezolana) pertenecientes al mismo estrato socioeconómico de los pacientes en estudio y que se tomó como “Población sana”. En la Tabla 4 se muestra una comparación de las distribuciones de las frecuencias alélicas y de las frecuencias genotípicas del gen APOE entre los niños prematuros de este trabajo y una muestra de habitantes de Caracas usuarios del HUC tomada como control sano. La frecuencia del alelo E2 del gen está muy incrementada entre los individuos sanos con respecto a los niños prematuros, con un valor de OR menor a 1, indicando que pudiera estar relacionado con un menor riesgo a ser prematuro, o tener un efecto protector a favor de que los embarazos lleguen a término.
TABLA 4. Comparación de la distribución de las frecuencias alélicas y genotípicas del gen APOE entre dos poblaciones de usuarios del HUC: Niños Prematuros, este estudio y una muestra de población de habitantes de Caracas tomada como Población Sana
Discusión
A diferencia de los hallazgos reportados en ratones ApoE knockout donde Ryan y colaboradores (10) encuentran que “la modificación de genes envueltos en el catabolismo de lipoproteínas, entre ellos ApoE , resultan en hipertrigliceridemia la cual esta asociada con una alteración de la síntesis del surfactante pulmonar, en el presente trabajo no se encontró ninguna asociación entre los polimorfismos del gen APOE de la Apolipoproteína E humana y la Enfermedad de Membrana Hialina.
La etiología de muchos casos de parto prematuro permanece desconocida. Diversas investigaciones han estudiado la relación existente entre parto prematuro y genes relacionados con el metabolismo del colesterol. Entre estas publicaciones se encuentra la realizada por Steffen KL y colaboradores (2007) donde se reporta la influencia de variables fisiopatológicas, ambientales y socioeconómicas (42). Recientemente se ha reportado una posible predisposición genética al parto prematuro asociada a mutaciones o al polimorfismo de genes que están relacionados con el metabolismo del colesterol: 1) DHCR7 (7-dehidrocolesterolreductasa). Locus 11q12-q13, relacionado con el Síndrome de Smith-Lemli-Opitz que consiste en retardo mental provocado por una acumulación tóxica de 7-dehidrocolesterol debida a la deficiencia de la enzima 7-dehidrocolesterol delta 7-reductasa. 2) HMGCR (3 α Hidroxi-3-metilglutaril-CoA-sintetasa). Locus 5p14-p13, relacionado con el control de la tasa de síntesis del colesterol. 3) APOA1 (Apolipoproteína A1, Apolipoproteína de las lipoproteínas de alta densidad). Locus 11q23-q24. 4) ABCA1 (ATP-Binding cassette, Subfamily A, Member 1). Locus 9q22-q31, Relacionado con el síndrome de Tangier, también conocido como deficiencia familiar de las alfa lipoproteínas que es una rara enfermedad hereditaria que se caracteriza por muy bajos niveles de HDL colesterol en sangre (28). 5) APOE (Apolipoproteina E), Locus 19q13.2, gen en estudio en el presente trabajo y cuyo alelo ε4 ha sido asociado con parto prematuro y/o bajo peso al nacer (46). Nuestro hallazgo sobre el efecto asociado al alelo ε2 se repite en un trabajo publicado recientemente donde Collazo y colaboradores, en enero de 2012, encuentran el mismo o parecido efecto protector del alelo ε2 sobre la interrupción de la gestación en pacientes con endometriosis (47).
La población de Venezuela como la de toda Latinoamérica, es producto de una gran mezcla de grupos étnicos, que se inició hace más de 500 años. En nuestro país, así como en el resto de América los estratos socioeconómicos se corresponden en cierto porcentaje con diferencias étnicas. El criterio de selección de las muestras está fuertemente afectado por estos hechos de genética de poblaciones, por lo que el origen de las muestras es muy importante a la hora de diseñar un estudio (48).
Debido a que en la presente investigación no se contaba con un grupo control “No prematuro” con la cual poder realizar las comparaciones de los hallazgos moleculares, se buscó en las bases de datos trabajos publicados relacionados con el gen APOE. Por lo que se encontró que hay pocos estudios publicados sobre la variabilidad del gen APOE en población venezolana, entre algunos de estos se encuentran: Estudio del Genotipo de la Apolipoproteína E (ApoE) en Escolares con Niveles Elevados de Colesterol y/o Triglicéridos Séricos de una Población Costera Venezolana (49), Genetic Variability of Apolipoprotein E in Different Populations from Venezuela (44); por lo que se decidió tomar de este último trabajo recientemente dado a conocer, una “población sana” para establecer comparaciones, asumiendo que pertenecen al mismo estrato socioeconómico en promedio, por cuanto que son usuarios del mismo hospital. Aun con todas las objeciones que se pueden hacer al respecto y asumiendo que nada garantiza que ninguno de los individuos del trabajo seleccionado hayan sido nacidos a termino fue considerada como una población sana, presentando como hallazgo importante una diferencia significativa en el análisis de los alelos del gen APOE cuando se comparan con el grupo control y los pacientes.
En la presente investigación se consideraron estos hallazgos como resultado preliminar que debe ser corroborado, de hecho se inició el estudio de la distribución de las frecuencias de los alelos del gen APOE en una población de recién nacidos sanos a termino del Servicio de Neonatología del Hospital Universitario de Caracas que serán comparados con los obtenidos con el grupo de pacientes analizados.
Se puede concluir que no fue hallada asociación estadísticamente significativa entre ninguno de los alelos del gen humano APOE y la Enfermedad de Membrana Hialina. Sin embargo al parecer si existe una posible relación, por lo menos estadística, del alelo E2 del gen APOE con un menor riesgo a ser prematuro o con un efecto protector de nacer a término, sobre se está desarrollando investigación a fin de corroborar o descartar la hipótesis propuesta.
Agradecimientos
Este trabajo se realizó en el Laboratorio de Patología Molecular de la Cátedra de Anatomía Patológica y fue Financiado por el CDCH. UCV Proyecto Nº PI 09-00-7068-2007.
Queremos agradecer a los Dres. Álvaro Rodríguez y Mercedes Fernández-Mestre de los laboratorios de Genética Humana y Fisiopatología del Centro de Medicina Experimental del Instituto Venezolano de Investigaciones Científicas IVIC su asesoría en el estudio estadístico de los resultados e invalorables recomendaciones en cuanto a la presentación de los mismos, igual reconocimiento le debemos a los editores de esta revista.
Referencias
- Anuario de Mortalidad en Venezuela año 2008. Ministerio Popular Para la Salud (MPPS), Dirección General de Epidemiología. Mayo 2010.
- Avery ME, Mead RJ. Surface properties in relation to atelectasis and hyaline membrane disease. Am J Dis Child 1959; 97:517-523.
- Kugelman A, Durand M. A comprehensive approach to the prevention of bronchopulmonary dysplasia. Pediatr Pulmonol 2011;46(12):1153-1165.
- Kumar P, Deorari A, Azad R, Chandra P, Agarwal R, Paul V. Risk factors for severe retinopathy of prematurity in preterm low birth weight neonates. Indian J Pediatr 2011;78(7):812-816.
- Perenyi A, Katz JS, Sklar T, Flom P. Neurodevelopmental outcome and risk factors for impaired development of African American infants in an underserved urban population: a population-based study. J Health Care Poor Underserved 2011;22(3):983-994.
- Sanchez R C, Torres T. Surfactante pulmonar. Rev Pediatría Electrónica 2004;1(1):718-728.
- González Armengod C, Omaña Alonso MF. Síndrome de distrés respiratorio neonatal o Enfermedad de membrana hialina. Bol Pediatry 2006;46(1):160-165.
- Griese M. Pulmonary surfactant in health and human lung diseases: State of the art. European Respir J 1999;13:1455-1476.
- Mallapalli RK, Salome RG, Bowen LS, Chappell DA. Very Low Density Lipoprotein Stimulate Surfactant Lipid Synthesis in Vitro. J Clin Invest 1997;99:2020-2029.
- Ryan AJ, Medh JD, McCoy DM, Salome RG, Mallampalli RK. Maternal loading with very low-density lipoproteins stimulates fetal surfactant synthesis. Am J Physiol Lung Cell Mol Physiol 2002;283:L310-L318.
- Lomnitski L, Oron L, Sklan D, Michaelson DM. Ditinct alterations in phospholipids metabolism in brains of apolipoprotein E deficient mice. J Neurosci Res 1999;58(4):586-592.
- Li X, Kypreos K, Zanni V. Domains of apoE required for binding to apoE receptor 2 and to phospholipids: implications for the function of the brain. Biochem. 2003;42(35):1046-1047.
- Han X. The role of apolipoprotein E in lipid metabolism in the central nervous system. Cell Mol Life Sci 2004;61(15):1896-1906.
- Voyno-Yasenetskaya TA, Dobbs LG, Ericsson SK, Hamilton RL. Low Density Lipoprotein and High Density Lipoprotein-Mediated Signal Transduction and Exocitosis in Aveolar Type II Cells. Proc Natl Acad Sci USA 1993;90:4256-4260.
- Mc Gowan SF, Doro MM, Jackson S. Expression of lipoprotein receptor and apolipoprotein E genes by perinatal rat lipid laden pulmonary fibroblasts. Experiment Lung Res 2001;27:47-63.
- Hallman M, Ataja R. Genetic basis of respiratory distress syndrome. Frot Biosci 2007;12:2670-2682.
- Andersen C, Ramsay JA, Nogee LM, Shah J, Pert SE, Paes B, Nowaczyk MJ. Recurrent familial neonatal deaths: hereditary surfactant protein B deficiency. Am J Perinatol 2000;17(4):219-224.
- Siest G, Pillot T, Régis-Bailly A, Leninger-Muller B, Steinmetz J, Galteau MM, Visvikis S. Apolipoprotein E: An Important Gene and Protein to Follow in Laboratory Medicine. Clin Chem 1995;41(8):1068-1086.
- Rall S. C. Jr., Weisgraber K. H. and Mahley R. W. Human Apolipoprotein E. The Complete Amino Acid Sequence. J Biol Chem 1982;257:4171-4178.
- Mac Lean J. W., Fukazawa C. and Taylor J. M. (). Rat Apolipoprotein E mRNA. Cloning and Sequencing of Double-Stranded cDNA. J Biol Chem 1983;258: 8993-9000.
- Mac Lean J. W. et al.. Human Apolipoprotein E mRNA. cDNA Cloning and Nucleotide Sequencing of a New Variant. J Biol Chem 1984;259:6498-6504.
- Bin L., Morrow A. J. and Weisgraber K. H. Conformational Reorganization of the Four Helix Bundle of Human Apolipoprotein E in Binding to Phospholipid. J Biol Chem 2000;275:20775-20781.
- Davignon J., Gregg R.E., and Sing C.F. Apolipoprotein E Polymorphism and Atherosclerosis. Atherosclerosis 1988;8:1-21
- Aslanidis C. and Schmitz G. High-Speed Apolipoprotein E Genotyping and Apolipoprotein B3500 Mutation Detection Using Real-Time Fluorescence PCR and Melting Curves. Clin Chem 1999;45:1094-1095
- Isasi C. R. et al. Apolipoprotein e2 Allele Is Associated With an Anti-atherogenic Lipoprotein Profile in Children: The Columbia University BioMarkers Study. Pediatrics 2000;106:568-575
- Corbo RM and Sacchi R. Apolipoprotein E (APOE) Allele Distribution in the World. Is APOE*4 a Thrifty Allele? Ann Hum Genet 1999;63:301-310.
- Weggemans RM, Zock PL, Ordovas JM, et al. Apoprotein E Genotype and the Response of Serum Cholesterol to Dietary Fat, Cholesterol and Cafestol. Atherosclerosis 2001. 154: 547-555
- Sacchi R. Corbo R.M., Rickards O., Mantuano E. Apolipoprotein B and E Genetic Polymorphism in the Cayapa Indians of Ecuador. Hum Biol 1997;69:375-382.
- Aguilar C.A. Talavera G. Ordovas J.M. et al. The Apolipoprotein E4 Allele is not Associated with Abnormal Lipid Profile in a Native American Population Following its Traditional Lifestyle. Atherosclerosis 1999;142:409-414
- Fullerton S.M. Clark A.G., Weiss K.M., Nickerson D.A. Apolipoprotein E Variation at the Sequence Haplotype Level: Implications for the Origin and Maintenance of a Major Human Polymorphism. Am. J Hum Genet 2000;67:881-900.
- Hanlon C.S. and Rubinsztein D.C. Arginine Residues at Codons 112 and 158 in the Apolipoprotein Gene E Correspond to the Ancestral State in Humans. Atherosclerosis 1995;112:85-90.
- Neel J.V. Diabetes Mellitus: a “Thrifty” Genotype Rendered Detrimental by “Progress”. Am J Hum Genet 1962;14:353-362.
- Davignon J, Gregg RE, Sing CF. Apolipoprotein E Polymorphism and Atherosclerosis. Atherosclerosis 1988;8:1-21.
- Welsh KI, Bunce M. Molecular Typing the MHC with PCR-SSP. Rev Immunogenet 1999;1:157-176.
- Mulligan CG, Bunce M, Fanning GC, Marshall SE, Welsh KL. A Rapid Method of Haplotyping HFE Mutations and Linkage Disequilibrium in a Caucasoid Population. Gut 1998;42:566-569.
- Miller SA, Dykes DD, Polesky HF. A Simple Salting Out Procedure for Extracting DNA from Human Nucleated Cells. Nucleic Acids Research 1988;16:1215.
- Tsukamoto K, Watanabe T, Matsushima T, Kinoshita M, Kato H, Hashimoto Y, et al. Determination by PCR-RFLP of Apo E genotype in a Japanese Population. J Lab Clin Med 1993;121:598-602.
- Molero AE. Modulation by age and gender of risk for Alzheimer’s disease and vascular dementia associated with the Apolipoprotein E- ε4 allele in Latinamericans: finding for the Maracaibo Agin Study. Neuroscience Letters 2001;307:5-8.
- De Franca E, Alves JG, Hutz MH. Apolipoprotein E Polimorphism and its Association with Serum Lipid Levels in Brazilian Children. Hum Biol 2004;76:267-275.
- Programa Estadístico EpiMAX. En línea: http://www.healthstrategy.com
- Wolf B. On estimating the relation between blood groups and disease. Ann Hum Genet. 1955;19:251-253
- Haldane J. The estimation and significance of the logarithm of a ratio of frecuencies. Ann Hum Genet 1956;20:309-311.
- Glas A. Lijmer J. Prins M et al. The diagnostic odd ratio : a single indicator of test performance. J Clin Epidemiol 2003;56:1129-1135
- Fernández-Mestre MT, Yehirobi C, Montagnani S, Balbas O, Layrisse Z. Genetic Variability of Apolipoprotein E in Different Populations from Venezuela. Dis Markers 2005;21(1):15-19.
- Steffen KL, Cooper ME, Shi M, Caprau D, Simhan HN, Dagle JM, et al. Maternal and fetal variation in genes of colesterol metabolismis associated with preterm delivery. J Perinatal 2007;27(11):672-680.
- Goodman C, Goodman CS, Hur J, Jeyendran RS, Coulman C. The Association of Apoprotein E polymorphisms with recurrent pregnancy loss. Am J Reprod Inmunol 2009;61(1):34-38.
- Collazo MS. Porrata-Doria T Flores I Acevedo SF. Apolipoprotein E polymorphisms and spontaneous pregnancy loss in patients whit endometriosis. 2012; Mol Hum Reprod 18(7):372-377.
- Martinez H, Rodríguez-Larralde A, Izaguirre MH, De Guerra DC. Admixture Estimates For Caracas, Venezuela, based on Autosomal, Y-chromosome, and mtDNA Markers. Hum Biol 2007;79(2):201-213.
- Marturet MR. Estudio del Genotipo de la Apolipoproteína E (ApoE) en Escolares con Niveles Elevados de Colesterol y/o Triglicéridos Séricos de una Población Costera Venezolana. Tesis de Grado, Licenciatura de Bioanálisis, Escuela de Bioanálisis, Facultad de Medicina UCV, 2001.