Introducción
La preeclampsia es un trastorno multisistémico del embarazo que ocurre en la mujer después de la semana veinte de gestación, asociada a diversos factores de riesgos y caracterizado por presentar hipertensión, edema y la presencia de proteinuria (Tabla 1) (1-3). Se estima que esta enfermedad puede complicar entre el 2-8% de los embarazos, siendo este trastorno una de las causas más frecuentes de morbilidad y mortalidad de la madre y/o el feto (4-13).
Tabla 1. Criterios clínicos y factores de riesgos asociados a la preeclampsia
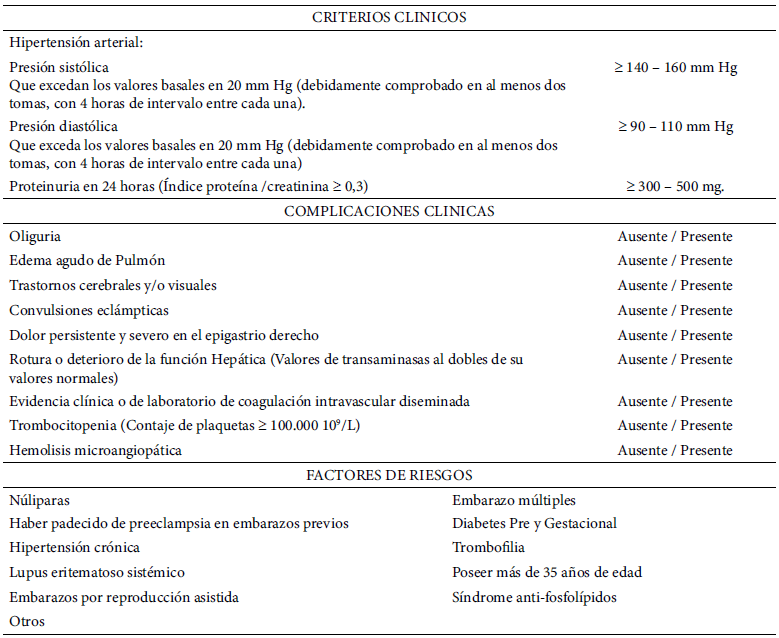
Adaptado de Pacheco, 2006; Proverbio et al., 2009; Turner, 2010; ACOG Practice Bulletin, 2019.
Hasta la fecha la etiología de la preeclampsia no ha sido establecida, se han propuesto varias hipótesis que han tratado de explicar la génesis de la misma. Datos provenientes de diferentes estudios, han demostrado que durante la preeclampsia se presenta una disfunción endotelial relacionada con la ausencia en la remodelación de las arteriolas espirales de la decidua al inicio del embarazo, lo que genera isquemia placentaria y la disminución del flujo útero feto-placentario. Adicionalmente, se ha observado una disfunción endotelial generalizada, por la pérdida del tono vascular con incremento de los tromboxanos en relación a prostaciclinas, así como un aumento en la permeabilidad de los capilares renales, además de alteraciones en la expresión de los factores de la coagulación, vasoconstricción e isquemias secundarias acompañado de disfunción hepática. Igualmente, se han relacionado depósitos de complejos inmunes (derivados del complemento: C3a, C4a, C5a) en las paredes de los vasos sanguíneos, como un factor quimioatrayente para los neutrófilos y otros leucocitos al sitio de deposición de los mismos, promoviendo la expresión de moléculas de adhesión en el endotelio vascular permitiendo que los leucocitos puedan adherirse a la pared interna de los vasos, resultando en la retracción endotelial con aumento de la permeabilidad vascular ocasionando un edema general. Actualmente, se conoce como la invasión placentaria deficiente y la posterior liberación de factores anti-angiogénicos tales como: la tirosina quinasa-1 soluble similar a fms (sFlt-1) y endoglina soluble (sEng) en la circulación materna, causan disfunción endotelial generalizada que conduce a una lesión multisistémica de los órganos vinculados con esta patología (4, 8, 9, 12, 15-21).
Durante el embarazo normal, los diferentes tipos de células en la interfase materno-fetal secretan diversos patrones de citocinas a lo largo de la gestación, siendo estas secreciones cruciales en el mantenimiento y desarrollo de un embarazo exitosos. Se ha descrito que durante el embarazo debe existir un balance entre las citocinas producidas por las células Th1/Th2. La Th1 agrupan las células T de ayuda que secretan IL-2 e IFN-ɣ (inmunidad mediada por células), mientras que las Th2 producen IL-4, IL-6 e IL-10 (inmunidad humoral). En un embarazo exitoso las citocinas producidas por las células Th2 deben predominar sobre la producción de las citocinas Th1. Sin embargo, en la preeclampsia este balance se rompe y las citocinas producidas por las Th1 son mayores que las Th2 (9, 22).
En obstetricia, el sulfato de magnesio (MgSO4) se ha mantenido como el medicamento de elección desde 1920 en el tratamiento de las pacientes con preeclampsia y en la prevención de las convulsiones en pacientes que desarrollan cuadros de eclampsia (23, 24). Sin embargo, su empleo en esta área ha sidode forma empírica, debido a que hasta la fecha no se conoce con exactitud el mecanismo de acción por el cual el MgSO4 actúa en el organismo (20, 25). Diversos estudios han vinculado la acción anti-inflamatoria del MgSO4 con la reducción de la producción y secreción de citocinas y quimiocinas pro-inflamatoria en la interfase materno-fetal. Además, la administración del sulfato de magnesio ha demostrado ser un potente supresor de la producción de mediadores inflamatorios tanto en la madre como en el feto, lo que ha permitido reducir el riesgo de nacimientos prematuros y sus complicaciones clínicas (26-28).
En el feto, se ha propuesto al sulfato de magnesio se comporta como un agente neuroprotector de la parálisis cerebral de neonatos a través de diferentes mecanismos, entre los que señalan: a) estabilización hemodinámica: se propone que el MgSO4 es un estabilizador de la presión arterial, reduciendo la constricción de las arterias cerebrales y restaurando la perfusión cerebral en el neonato prematuro; b) prevención de las lesiones excitatorias y fomento de la estabilidad neuronal: en la fase aguda de encefalopatías hipóxico-isquémica, el oxígeno se agota y el feto pasa a un metabolismo anaeróbico, generando acumulación intracelular de sodio, calcio, cloruro, agua y ácido láctico (edema citotóxico), lo que origina la liberación de neurotransmisores excitatorios (glutamato) causando un aumento de calcio y sodio en las neuronas post-sinápticas, desestabilizando las membrana de las misma, en estos casos, se ha demostrado que el MgSO4 estabiliza las membranas evitando el flujo de estos iones y actúa como un antagonista en los receptores de glutamato (NMDA), c) como agente antioxidante: debido a la acción antagonista que posee con el calcio, el magnesio promueve la inhibición de lipasas, proteasas, endonucleasas y fosfolipasas, las cuales en su forma activa ocasionan daño neuronal y cerebral irreversible en los fosfolípidos de membrana, con la formación de radicales libres. Y por último, d) se propone al MgSO4 como agente anti-inflamatorio: ya que promueve la
disminución de factores pro-inflamatorios (IL-1β, TNF-α) y productos secundarios de la activación de los mismos, que causan daño a nivel cerebral en los bebes prematuros (29-33). Por tales motivos, el objetivo de este estudio fue evaluar el efecto del MgSO4 en los cultivos de explantes de placenta bajo condiciones de hipoxia y en un ambiente pro-inflamatorio.
Materiales y métodos
Los explantes fueron obtenidos a partir de siete placentas obtenidas por cesárea o parto natural provenientes de mujeres sin historial clínico o patologías asociadas al embarazo, de la sección de Ginecología-Obstetricia de la Sala de Partos del Hospital Universitario de Caracas, las cuales consintieron de forma voluntaria a participar en este estudio. Este contó con la aprobación del Comité de Ética de la Universidad Simón Bolívar y del Hospital Universitario de Caracas, bajo las condiciones planteadas en esta investigación.
Los explantes fueron cultivados en placas del Tipo NUNCTM (Greiner Bio-one, N° 142475) colocando un solo explantes por pozo, en un volumen de 1,5 mL del medio de cultivo RPMI-1640 (GIBCO BRL, N°31800-014) suplementado de la siguiente manera: 10% de suero fetal bovino inactivado, 1% de penicilina/estreptomicina, 0,1% de gentamicina; 1% de amfotericina B; 1% de L-glutamina; 1% de aminoácidos no esenciales y 1% de piruvato de sodio, con recambios del mismo cada 24 horas. Estos fueron mantenidos en una incubadora marca Fisher Scientific a 37°C, en un ambiente húmedo en presencia de una mezcla de gases del 5% CO2, 10% O2 y balanceado con Nitrógeno.
Transcurridas las primeras veinticuatro (24) horas, tiempo necesario para la estabilización inicial de los tejidos, estos fueron sometido a diferentes condiciones experimentales dividiendo los mismos en dos (2) grupos: el primero manteniendo los tejidos de explantes bajo la condición de normoxia: 5% CO2; 10% O2 y balanceado con Nitrógeno. Mientras que, un segundo grupo se colocó en una condición de hipoxia: 5% CO2; 2-3% O2 y balanceado con Nitrógeno, ambos grupos de tejidos de explantes se mantuvieron en estufas independientes a 37°C en cámara húmeda y estabilizados bajos estas condiciones por veinticuatro (24) horas. Posterior a las etapas de estabilización, se les realizó a todos los explantes un recambio del medio de cultivo y se sub-dividieron los mismos en los siguientes sub-grupos (manteniendo su condición de normoxia e hipoxia), un grupo de explantes se mantuvieron con medio basal, un segundo grupo se les adicionó junto al medio de cultivo suplementado una solución de sulfato de magnesio (Sigma-Aldrich, N° M2643) a una concentración de 2 mM y a otro grupo una solución de Lipopolisacáridos de Escherichia coli 055:B5 (Sigma-Aldrich, N° L2880) (LPS) en una concentración de 2 μg/mL, posteriormente los cultivos expuestos inicialmente con sulfato de magnesio se adiciono en su recambio del medio una solución de LPS más sulfato de magnesio y viceversa. Los sobrenadantes del medio de cultivo, se recolectaron diariamente y posteriormente se centrifugaron (3.500 rpm) durante quince minutos, con el fin de eliminar cualquier material celular que pudiera estar presente en el medio. Se almacenaron a -20 °C hasta su utilización posterior.
La integridad de los cultivos se determinó mediante la medición de la actividad enzimática del Lactato Deshidrogenasa (LDH) presente en los sobrenadantes del medio de cultivo obtenidos diariamente (Sigma-Aldrich, DG1340-K). Mientras que, la diferenciación celular, se evaluó por la capacidad de sintetizar y secretar la hormona Gonadotrofina Coriónica humana. La concentración de la Gonadotrofina Coriónica humana fracción beta (hCG-β) se determinó en los sobrenadantes del medio recolectado mediante ensayo inmunométrico de quimioluminiscencia en fase sólida (Equipo-Siemens Immulite 1000). Los resultados sereportaron en mUI/mg/proteínas (datos no mostrados) (34).
A partir de los sobrenadantes recolectados diariamente se determinaron las siguientes citocinas: Interleucina 1 beta (IL-1β), Factor de Necrosis Tumoral alfa (TNF-α) e Interleucina 10 (IL-10). Los niveles de citocinas se midieron empleando un Kit comercial de micro-ELISA ultrasensible (Thermo Scientific), específico para cada tipo de citocinas. Los resultados fueron expresados según las recomendaciones técnicas del kit a utilizar. Cada determinación se realizó por duplicado.
Todos los resultados fueron analizados empleando el paquete de software SPSS versión 10.0 para Windows. Las comparaciones entre las diferentes condiciones se analizaron estadísticamente empleando la prueba de Mann-Whitney estableciendo como diferencia estadísticamente significativa a p <0,05. Todos los datos se presentan como las medias ± desviación estándar. Las n representan el número de placentas que fueron estudiadas durante cada fase.
Resultados
A continuación se muestra los resultados de los niveles de TNF-α, IL-10 e IL-1β medidos en los sobrenadantes de los cultivos de explantes de placentas en condiciones de normoxia e hipoxia en las diferentes condiciones de cultivos descritos en materiales y métodos. La Figura 1, muestra las concentraciones del Factor de Necrosis Tumoral alfa (TNF-α) expresados en picogramo por mL (pg/mL). Los niveles de TNF-α se encontraron en menor concentración en la condición de normoxia para aquellos cultivos incubados en medio solo (*p<0.01), mientras que aquellos cultivos tratados con MgSO4 mostraron niveles de TNF-α aumentados en comparación con los encontrados en la condición de hipoxia (*p<0.01). Por otro lado, se observó que los cultivos tratados con LPS, mostraron niveles de TNF-α similares entre ambas condiciones experimentales. El análisis estadístico demostró una diferencia estadísticamente significativa entre estas condiciones (**p<0.02). Los explantes tratados con MgSO4 y posteriormente expuestos a LPS, mostraron niveles aumentados de TNF-α bajo condición de normoxia, arrojando diferencia estadísticamente significativa al compararlo con la condición de hipoxia (*p<0.01). Por otra parte, los cultivos expuestos previamente a LPS y luego tratados con MgSO4, mostraron niveles inferiores de TNF-α bajo condición de normoxia, mostrando diferencia estadísticamente significativa cuando se comparó con la condición de hipoxia (*p<0.01). Los niveles de TNF-α entre los cultivos que se encontraban en condición de normoxia para las diferentes condiciones, mostraron diferencia estadísticamente significativa entre todas las comparaciones, a excepción de la comparación hecha entre los cultivos que solo contenía medio de cultivo y aquellos tratados con LPS y luego expuestos con MgSO4. En los cultivos obtenidos bajo condiciones de hipoxia, se encontró que aquellas comparaciones que mostraron diferencia estadísticamente significativa fueron entre los cultivos que solo contenían medio de cultivo y aquellos cultivos tratados con LPS, con MgSO4 y LPS y en los cultivos que presentaban LPS y los tratados inicialmente con LPS y luego expuestos con MgSO4. En los cultivos obtenidos bajo condiciones de hipoxia, se encontró que aquellas comparaciones que mostraron diferencia estadísticamente significativa fueron entre los cultivos que solo contenían medio de cultivo y aquellos cultivos tratados con LPS, con MgSO4 y LPS y en los cultivos que presentaban LPS y los tratados inicialmente con LPS y luego expuestos con MgSO4.
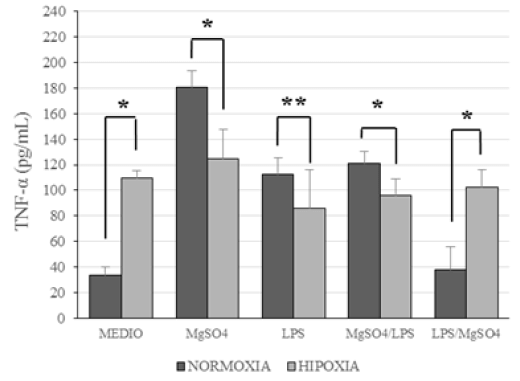
Figura 1. Niveles de TNF-α determinados en los sobrenadantes de los cultivos de explantes de placenta en condiciones de normoxia e hipoxia en diferentes medios
de cultivos: basales (Medio), en presencia de MgSO4 (2 mM), LPS (2 µg/mL), con LPS previa presencia de MgSO4 (MgSO4/LPS) y viceversa (LPS/MgSO4).
Los datos fueron expresados como las medias ± las desviaciones estándar. La comparación estadística entre las condiciones de normoxia e hipoxia para cada tratamiento fue realizada empleando el método Mann-Whitney (n=7),
*p<0.01 y **p<0.02.
En la Figura 2, se muestra las concentraciones de interleucina tipo 10 (IL-10) expresadas en picogramo por mL (pg/mL), determinadas en los sobrenadantes de los cultivos de explantes de placenta en condiciones de normoxia e hipoxia para los diferentes medios de cultivos. Los niveles de IL-10 se encontraron en mayor concentración en la condición de hipoxia, siendo la diferencia estadísticamente significativa en los medios tratados con MgSO4 (*p<0.01) y con LPS (*p<0.01). El aumento en los niveles de IL-10 encontrados en las condiciones de hipoxia se mantuvo en aquellos cultivos tratados con MgSO4 y posteriormente con LPS, y viceversa, la diferencia fue estadísticamente significativa en aquellos cultivos tratados previamente con LPS y que posteriormente expuestos con MgSO4 (*p<0.01).
Al realizar la comparación estadísticas entre los diferentes medios de cultivos obtenidos, no se encontró diferencia estadísticamente significativa en ninguno de los medios comparados bajo condiciones de normoxia. Mientras, que en condición de hipoxia si se encontró diferencia estadísticamente significativa cuando se comparó los cultivos que solo contenían medio de cultivo y los tratados con LPS, así como aquellos cultivos con que contenían LPS y los que fueron tratados con LPS y luego expuestos con MgSO4.
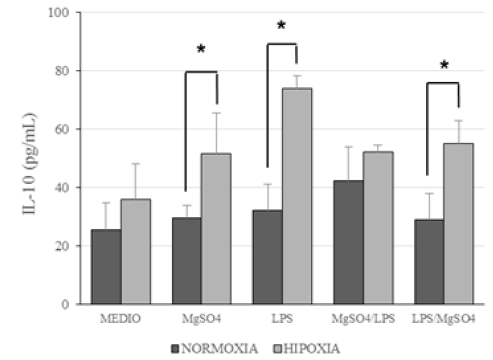
Figura 2. Niveles de IL-10 determinados en los sobrenadantes de los cultivos de explantes de placenta en condiciones de normoxia e hipoxia en diferentes medios de cultivos: basales (Medio), en presencia de MgSO4 (2 mM), LPS (2 mg/mL), con LPS previa presencia de MgSO4 (MgSO4/LPS) y viceversa (LPS/MgSO4). Los datos fueron expresados como las medias ± las desviaciones estándar. La comparación estadística entre las condiciones de normoxia e hipoxia para cada tratamiento fue realizada empleando el método Mann-Whitney (n=7), *p<0.01 y **p<0.02.
En la Figura 3, se muestra las concentraciones de interleucina uno tipo beta (IL-1β) expresado en picogramo sobre mL (pg/mL), determinadas en los sobrenadantes de los cultivos de explantes de placenta en condiciones de normoxia e hipoxia para los diferentes medios de cultivos. Los niveles de IL-1β se encontraron en mayor concentración en la condición de normoxia, con una diferencia estadísticamente significativa en los cultivos que solo contenían medio de cultivo (**p<0.02), MgSO4 (*p<0.01) y LPS (*p<0.01). Igualmente, se observó un incremento en aquellos cultivos que habían sido tratados con MgSO4 y posteriormente LPS, y viceversa, mostrando en ambos casos diferencia estadísticamente significativa (*p<0.01).
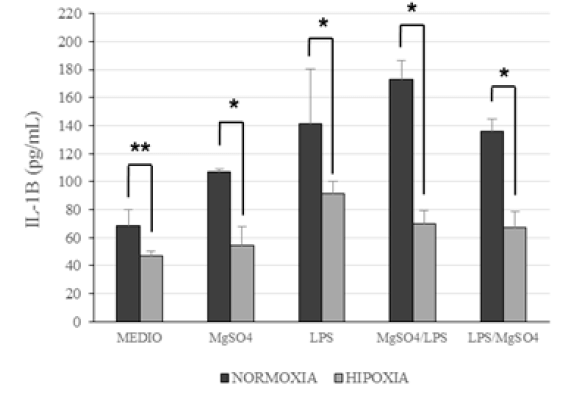
Figura 3. Niveles de IL-1b determinados en los sobrenadantes de los cultivos de explantes de placenta en condiciones de normoxia e hipoxia en diferentes medios de cultivos: basales (Medio), en presencia de MgSO4 (2 mM), LPS (2 mg/mL), con LPS previa presencia de MgSO4 (MgSO4/LPS) y viceversa (LPS/MgSO4). Los datos fueron expresados como las medias ± las desviaciones estándar. La comparación estadística entre las condiciones de normoxia e hipoxia para cada tratamiento fue realizada empleando el método Mann-Whitney (n=7), *p<0.01 y **p<0.02
Cuando se realizaron las comparaciones de los diferentes medios en condiciones de normoxia las únicas comparaciones que no mostraron diferencia estadísticamente significativa fueron aquellas que se realizaron al comparar los cultivos tratados con MgSO4 y LPS y los cultivos tratados con LPS y los tratados con LPS inicialmente y posteriormente MgSO4. Mientras que en condiciones de hipoxia, las comparaciones estadísticas que no mostraron diferencia significativa fueron aquellas donde se comparó los cultivos que solo contenían medio de cultivo y MgSO4; así como los cultivos que solo contenían MgSO4 y aquellos que tratados con MgSO4 y posteriormente LPS.
Discusión
La determinación de citocinas pro y anti-inflamatorias en el desarrollo de la presente investigación, reveló como la presencia de sulfato de magnesio en condiciones de normoxia incrementa la producción de TNF-α e IL-1β en los cultivos de explantes de placenta del tercer trimestre de gestación, originando una respuesta inflamatoria localizada. Por otra parte, se evidenció una respuesta anti-inflamatoria del sulfato de magnesio en los cultivos de explantes de placentas previamente estimulados con LPS, al disminuir los niveles de TNF-α e IL-1β, tanto en condiciones de normoxia como de hipoxia. Esto permite inferir que la presencia del sulfato de magnesio en condiciones normales no posee un efecto protector sobre el tejido placentario, efecto que si es evidente en condiciones de respuesta inflamatoria. Resultados similares fueron encontrados por Holcberg et al., (2006) (35), utilizando técnicas de perfusión en placentas normales en presencia de sulfato de magnesio, demostraron que la placenta materna tiene capacidad de secretar TNF-α e IL-6, generando una acción inflamatoria local, lo cual puede ocasionar efectos adversos en la madre si persiste durante largos períodos de tiempo. Por lo que la utilización de dicho fármaco como tratamiento profiláctico no debe ser empleada en mujeres embarazadas del último trimestre en condiciones sanas.
En el presente estudio se demostró como el sulfato de magnesio incrementa los niveles de TNF-α e IL-1β en condiciones de normoxia, sin embargo no se observó un efecto directo sobre la secreción de la IL-10, al no evidenciarse diferencias en la secreción de esta interleucina en los cultivos de explantes de placenta del tercer trimestre de gestación en condiciones de normoxia. La IL-10 posee un efecto anti-inflamatorio y una capacidad de inhibir la síntesis de citocinas pro-inflamatorias dadas por los linfocitos T y los macrófagos. Además, se ha descrito como la decidua, trofoblasto y membranas coriónicas son la principal fuente de producción de esta citocinas, por lo que su síntesis y secreción en los tejidos placentarios parece estar vinculada a una activación endotelial en las vellosidades placentarias y no a daños del tejido placentario per se (36-39).
Estudios previos han señalado a la IL-10 como una citocinas clave para el mantenimiento del embarazo (Hanna et al., 2006) (40), así como un potente inhibidor de la acción del TNF-α e IL-1 en condiciones de hipoxia (Royle et al., 2009) (41). Al analizar la presencia del sulfato de magnesio en condiciones de hipoxia, observamos un aumento en la secreción de IL-10 y TNF-α, sin afectar la producción de IL-1β. Estudios realizados por Peltier et al., (2011) (42), demostraron una disminución en la acción anti-inflamatoria de la IL-10 en cultivos de explantes de placenta a baja presión de oxígeno. Estos hallazgos permiten vincular al sulfato de magnesio como un mediador clave en la liberación de IL-10 en condiciones de hipoxia, apoyando la hipótesis de que el sulfato de magnesio posee un efecto anti-inflamatorio al estimular la producción de IL-10 por parte de las células placentarias, la cual modula principalmente la liberación de la IL-1β e TNF-α por parte del sistema inmune placentario, reduciendo los efectos adversos que pudieran estar presentándose a causa de la disfunción endotelial, como se ha descrito en algunas patologías como la preeclampsia (41, 43). Estudios previos realizados en cultivos de explantes de placenta del tercer del tercer trimestre proveniente de mujeres con preeclampsia, mostraron un incremento en la expresión de TNF-α, IL-1β e IL-10 en comparación con placentas provenientes de mujeres sanas, atribuyendo el aumento de TNF-α e IL-1β al daño encontrado en las células endoteliales observados durante la preeclampsia (44).
La utilización de Lipopolisacáridos de E. coli (LPS) en los cultivos de explantes de placenta del tercer trimestre de gestación en condiciones de normoxia e hipoxia, mostró un incremento en los niveles de TNF-α e IL-1β. Laham et al., (1997) (45), demostraron como la presencia de LPS en cultivos de explantes de placentas estimula la secreción de TNF-α e IL-1β y que esta ocurre después de 1 y 4 horas de incubación respectivamente. Ma et al., (2006) (46), demostraron en cultivos de células aisladas de citotrofoblasto y sincitiotrofoblasto estimulados en concentraciones crecientes con LPS, la presencia de patrones similares de secreción de IL-8 entre ambos tipos de células, evidenciando la sensibilidad de estas células a responder agentes patógenos bacterianos. Estos hallazgos permiten validar la utilización de los cultivos de explantes de placenta como un modelo in vitro útil en el estudio de los procesos inflamatorios reportados en algunas patologías como: parto prematuro, preeclampsia, etc., y el estudio de la acción del sulfato de magnesio sobre dicho tejido en presencia de cuadros inflamatorios.
Diversas investigaciones han descrito como la secreción y liberación del TNF-α responde a diferentes estímulos como: antígenos bacterianos, virus, parásitos, disminución de oxígeno, disfunción endotelial, isquemia y por acción de otros mediadores celulares como la IL-1 e IFN-ɣ, así como por la acción autocrina del TNF-α , entre otros (36, 37, 44, 47-49). Se conoce que la respuesta del TNF-α depende directamente de la unión a sus receptores, describiéndose hasta la fecha dos tipos de receptores estructurales diferentes para TNF-α denominados: a) receptor tipo I (TNF-RI; p55 o p60) el cual presenta una amplia distribución y tiene una expresión constitutiva en diversos tipos de células y b) el receptor tipo II (TNF-RII; p80 o p75), el cual presenta una alta promiscuidad a su ligando y su expresión se genera de forma inducida. La función principal del receptor tipo I está dada en la defensa de los tejidos debido a que regula los procesos pro-inflamatorios y apoptótico, junto a diversos factores de transcripción como: NFKB, proteínas quinasas activadas por mitógenos (MAPK), entre otros. Mientras que el receptor tipo II, su acción está ligada principalmente a los efectos beneficiosos locales sin que estos lleguen a generar efectos perjudiciales en los tejidos. Sin embargo, se ha observado que estímulos constante por patógenos exógenos, estrés oxidativo, disfunción endotelial o reducción de los niveles de oxígeno favorecen que el TNF-RII se comporte como un transportador del TNF-α hacia el receptor TNF-I, el cual presenta alta afinidad por su ligando, lo que potencia la acción pro-inflamatoria del TNF-α (50, 51). Algunos estudios han demostrado la expresión e incremento de TNF-RI en repuesta a cuadros inflamatorios sobre los componentes celulares de la interfase materno-fetal tanto al inicio como al final del embarazo, sin que esta expresión sea evidenciada a nivel sistémico en la madre (52).
Por otro lado, la IL-1β es una citocinas que se produce de forma inmediata tras el contacto de las células implicadas en una respuesta inmune innata con un agente extraño o LPS, generando un aumento a la permeabilidad vascular, respuesta inflamatoria local o generalizada, síntesis de proteína de fase aguda, proliferación de fibroblastos, activación de linfocitos T y B, producción de plaquetas, entre otros. Esta citocinas es producida por diferentes tipos de células dentro de las que se destacan: monocitos, macrófagos, células endoteliales, células dendríticas y células NK. Los macrófagos presentes en las vellosidades placentarias es una de las fuentes más importantes de este tipo de citocinas durante el embarazo (37, 51). En reacciones inflamatorias localizadas, tanto la IL-1β como el TNF-α actúan sobre los macrófagos y células endoteliales del tejido placentario, permitiendo la producción de quimiocinas que contribuyen a la entrada de los neutrófilos a los tejidos placentarios y su acción frente a los patógenos presentes. Además, el TNF-α, la IL-1β induce un aumento en la expresión de moléculas de adherencia sobre las células endoteliales (ICAM-1 y VCAM-1), las cuales son reconocidas por linfocitos y monocitos de la circulación sanguínea, esto ocasiona la extravasación de estas células a los espacios tisulares de la placenta favoreciendo una reacción inflamatoria localizada (37).
En esta investigación se evidenció la respuesta anti-inflamatoria del sulfato de magnesio en los cultivos de explantes de placentas previamente estimulados con LPS, al disminuir los niveles de TNF-α e IL-1β, tanto en condiciones de normoxia como de hipoxia. Rochelson et. al., (2006) (53), demostraron una acción anti-inflamatoria del sulfato de magnesio en cultivos de células endoteliales humanas del cordón umbilical (HuVECs) en presencia antes, durante y después de un estímulo con LPS. También, observaron una reducción en la expresión de ICAM-1 y la inhibición de la degradación del factor IkBα y translocación de NFKB, cuando se adiciona el sulfato de magnesio en los cultivos de HuVECs. A su vez, Dowling et al., (2012) (28), empleando dos modelos experimentales, demostraron como la administración de sulfato de magnesio atenúa la producción de mediadores pro-inflamatorios (CCL-2 o MCP-1; TNF-α e IL-6) dentro de la placenta humana en presencia de LPS. Demostraron además, como el sulfato de magnesio genera la supresión en la activación del factor NFKB dentro del tejido placentario.
Aun cuando los hallazgos obtenidos en este estudio no permiten confirmar el mecanismo de acción por el cual el sulfato de magnesio posee un efecto anti-inflamatorio en los procesos inflamatorios por LPS, todo parece señalar que una de las vías por la cual el sulfato de magnesio genera dicha acción, es a través de la inhibición de la degradación de IKBα y por ende la translocación del factor NFKB en los tejido placentarios, por lo que nuevas investigaciones deberán ser realizadas con el fin de demostrar estos hallazgos.
Por otra parte, la acción anti-inflamatoria descrita para el sulfato de magnesio también ejerce una acción protectora sobre el feto. Tam Tam et al., (2011) (27), empleando modelos de rata preñadas a las cuales se inocularon con LPS demostraron un aumento tanto en el compartimento materno como fetal de los niveles de secreción de: TNF-α, IL-6 y MCP-1 y GRO-KC, los cuales se redujeron de forma significativa luego de la administración de sulfato de magnesio en ambos compartimientos. Burd et. al., (2010) (30), igualmente investigaron el efecto del sulfato de magnesio en la prevención de lesiones cerebrales fetales presentes en los partos prematuro asociados con inflamación, concluyendo que aunque no encontraron diferencias en la expresión de citocinas pro-inflamatorias y marcadores de muerte celular, si evidenciaron como el sulfato de magnesio impide cambios morfológicos celular a nivel neuronal causados por la presencia de LPS.
Los hallazgos encontrados en investigaciones previas juntos con los valorados en este estudio permiten afirmar al sulfato de magnesio como un potente protector y supresor de los efectos perjudiciales encontrados en los cuadros inflamatorios dados durante el embarazo tanto para la madre como para el feto. Además, estos resultados permiten sugerir la administración del sulfato de magnesio por cortos períodos de tiempo, en aquellas madres que durante el embarazo presentaran cuadros infecciosos, con el fin de disminuir los efectos perjudiciales encontrados durante dichos trastornos.
Declaración financiamiento y conflictos de interés
Este trabajo fue parcialmente apoyado por la subvención PG 09-6579-2006 de CDCH-UCV y por una subvención de Decanato de Post-grado USB. Los autores reportan ningún conflicto de intereses. Los autores solo son responsables del contenido y la redacción del documento.
Referencias
- El-Sayed AAF. Preeclampsia: A review of the pathogenesis and possible management strategies based on its pathophysiological derangements. Taiwan J Obstet Gynecol 2017;56:133-138. https://doi.org/10.1016/j.tjog.2017.08.004
- Pacheco-Romero J. Introducción al Simposio sobre Preeclampsia. Rev Peru Ginecol Obstet 2017;63(2):199-206. [citado agosto 2019] Disponible en: http://www.scielo.org.pe/scielo.php?script=sci_arttext&pid=S2304-51322017000200007
- ACOG Practice Bulletin No. 202. Gestational Hypertension and Preeclampsia. Obstet Gynecol 2019;133(1):e1-e25. https://doi.org/10.1097/AOG.0000000000003018.
- Bolte AC, Van Geijn HP, Dekker GA. Management and monitoring of severe preeclampsia. Eur J Obstet Gynecol Reprod Biol 2001;96(1):8-20. https://doi.org/10.1016/S0301-2115(00)00383-3
- Núñez-González J, Sanabria-Vera Ch, Romero-Adrián T, Núñez L, Montiel I, Boscán F et al. Óxido nítrico, malondialdehído, perfil lipídico, factor de necrosis tumoral alfa y sus receptores solubles en mujeres no embarazadas, gestantes normales y preeclámpticas. Gac Med Caracas 2001;109(3):352-360.
- Aban M, Cinel L, Arslan M, Dilek U, Kaplanoglu M, Arpaci R, et al. Expression of nuclear Factor-Kappa B and placental apoptosis in pregnancies complicated with intrauterine growth restriction and preeclampsia: a immunohistochemical study. Tohoku J Exp Med 2004;204:195-202. [citado agosto 2019] Disponible en: http://www.journal.med.tohoku.ac.jp/2043/TJ2043_04.pdf
- Duley L, Meher S, Abalos E. Management of pre-eclampsia. BMJ 2006;332:463. https://doi.org/10.1136/bmj.332.7539.463
- Feinberg BB. Preeclampsia: The death of goliath. Am J Reprod Immunol 2006;55(2):84-98. https://doi.org/10.1111/j.1600-0897.2005.00362.x
- Pacheco J. Preeclampsia/eclampsia: Reto para el ginecoobstetra. Acta Med Per 2006; 23(2):100-111. [citado agosto 2019] Disponible en: http://www.scielo.org.pe/pdf/amp/v23n2/v23n2a10.pdf
- Yegüez FA, Castejón OC. Etiopatogenia de la preeclampsia. Gac Med Caracas 2007;115(4):271-273.
- Briones VCG, Meneses CJ, Moreno SA, González DJ, Díaz de León PM, Briones GJ. Preeclampsia: Una nueva teoría para un viejo problema. Rev Aso Mex Med Crit y Ter Int 2008;22(2):99-104. [citado agosto 2019]. Disponible en: https://www.medigraphic.com/pdfs/medcri/ti-2008/ti082h.pdf
- Reyna-Villasmil E, Mayner-Tresol G, Herrera-Moya P, Briceño-Perez C. Marcadores clínicos, biofísicos y bioquímicos para la predicción de preeclampsia. Rev Peru Ginecol Obstet 2017;63(2):227-233. [citado agosto 2019]. Disponible en: https://www.redalyc.org/pdf/3234/323451873011.pdf
- Redman CW, Sargent IL. Immunology of pre-eclampsia. Am J Reprod Immunol 2010;(63):534–543. https://doi.org/10.1111/j.1600-0897.2010.00831.x.
- Proverbio F, Abad C, Proverbio T, Piñero S, Botana D, Chiarello DI, Marín R. Preeclampsia, peroxidación lipídica y Ca-ATPasa. Acta Cient Venez 2009;60(4):196-201.
- Turner JA. Diagnosis and management of pre-eclampsia: an update. Int J Womens Health 2010;2:327-337. https://doi.org/10.2147/IJWH.S8550
- Aranda P, Planells E, Llopis J. Magnesio. Ars Pharmaceutica 2000;41(1):91-100.
- Simon J, Gray A, Duley L. Cost-effectiveness of prophylactic magnesium sulphate for 9996 women with pre-eclampsia from 33 countries: economic evaluation of the Magpie Trial. BJOG An Intern J Obstet Gynaec 2005;113(2):144-151. https://doi.org/10.1111/j.1471-0528.2005.00785.x.
- Cnossen JS, Ter Riet G, Mol BW, Van Der Post JA, Leeflang MM, Meads CA, et al. Are tests for predicting pre-eclampsia good enough to make screening viable? A review of reviews and critical appraisal. Acta Obstet Gynec Scand 2009;88(7):758-765. https://doi.org/10.1080/00016340903008953.
- Euser AG, Cipolla MJ. Magnesium sulfate treatment for the prevention of eclampsia: A brief review. Stroke 2009;40(4):1169-1175. https://doi.org/10.1161/STROKEAHA.108.527788
- Duley L, Gülmezoglu AM, Henderson-Smart DJ, Chou D. Magnesium sulphate and other anticonvulsants for women with pre-eclampsia. Cochrane Database Sys Rev 2010; (11):CD000025. https://doi.org/10.1002/14651858.CD000025.pub2.
- Hannan NJ, Brownfoot FC, Cannon P, Deo M, Beard S, Nguyen TV, et al. Resveratrol inhibits release of soluble fms-like tyrosine kinase (sFlt-1) and soluble endoglin and improves vascular dysfunction–implications as a preeclampsia treatment. Scientific Reports 2017;7(1):1819. https://doi.org/10.1038/s41598-017-01993-w.
- Kämmerer U, Von Wolff M, Markert UR. Immunology of human endometrium. Inmunobiology 2004;209(7):569-574. https://doi.org/10.1016/j.imbio.2004.04.009
- Duley, L. Evidence and practice: the magnesium sulphate story. Best Pract Res Clin Obstet Gynaec 2005;19(1):57-74. https://doi.org/10.1016/j.bpobgyn.2004.10.010.
- Recomendación de la OMS para la prevención y el tratamiento de la preeclampsia y eclampsia. [homepage on the internet] The WHO Reproductive Health Library. Ultimo actualization Octubre 2011. Disponible: RHL (https://extranet.who.int/rhl).
- Roy J, Kumar Mitra J, Pal A. Magnesium sulphate versus phenytoin in eclampsia–Maternal and foetal outcome. A comparative study. Australas Med J 2013;6(9):483-495. https://doi.org/10.4066/AMJ.2013.1753.
- Bittar, R. E., Zugaib, M. Tratamento do trabalho de parto prematuro. Rev Bras Ginecol Obstet 2009;31(8):415-422. https://doi.org/10.1590/S0100-72032009000800008.
- Tam Tam HB, Dowling O, Xue X, Lewis D, Rochelson B, Metz CN. Magnesium sulfate ameliorates maternal and fetal inflammation in a rat model of maternal infection. Am J Obstet Gynec 2011;204(4):364 e1-364e8. https://doi.org/10.1016/j.ajog.2010.11.006.
- Dowling O, Chatterjee PK, Gupta M, Tam Tam HB, Xue X, Lewis D, et al. Magnesium sulfate reduces bacterial LPS-induced inflammation at the maternal-fetal interface. Placenta 2012;33(5):392-398. https://doi.org/10.1016/j.placenta.2012.01.013.
- Alday E, Uña R, Redondo FJ, Criado A. Magnesium in anesthesia and postoperative recovery care. Rev Esp Anestesiol Reanim 2005;52(4):222-234. [citado agosto 2019]. Disponible en: https://pesquisa.bvsalud.org/portal/resource/pt/ibc-036969?lang=en.
- Burd I, Breen K, Friedman A, Chai J, Elovitz MA. Magnesium sulfate reduces inflammation-associated brain injury in fetal mice. Am J Obstet Gynecol 2010; 202(3):292.e1-292.e9. https://doi.org/10.1016/j.ajog.2010.01.022.
- Costantine MM, Drever N. Antenatal exposure to magnesium sulfate and neuroprotection in preterm infants. Obstet Gynecol Clin North Am 2011;38(2):351-366. https://doi.org/10.1016/j.ogc.2011.02.019.
- Meller CH, Izbizky G, Otaño L. Actualización sobre el uso de sulfato de magnesio como neuroprotector en el parto prematuro. Arch Argent Pediatr. 2015;113(4):345-352. [citado agosto 2019]. Disponible en: https://www.sap.org.ar/docs/publicaciones/primero/2015/AE%20 Meller_anticipo_6-7-15.pdf
- Chiarello D, Marín R, Fulgencio P, Coronado P, Toledo F, Salsoso R, Gutiérrez J, Sobrevia L. Mechanisms of the effect of magnesium salts in preeclampsia. Placenta 2018;69:134-139. https://doi.org/10.1016/j.placenta.2018.04.011.
- Goncalves J, Méndez Y, Casart YC, Camejo MI. Estandarización de condiciones de cultivos para explantes de placenta humana. XXI Reunión Bienal de la Asociación Latinoamericana de Investigadores en Reproducción Humana (ALIRH). San Pablo, Brasil. Del 22 al 24 de Abril, 2009.
- Holcberg G, Amash A, Sapir O, Hallak M, Sheiner E, Ducler D, et al. Different effects of magnesium sulfate and angiotensin II on the capacity of the fetal and maternal compartments of normal human placenta to secrete TNF-a and IL-6. J Reprod Immunol 2006;69(2):115-125. https://doi.org/10.1016/j. jri.2005.09.005
- Benyo DF, Miles TM, Conrad KP. Hypoxia stimulates cytokine production by villous explants from the human placenta. J Clin Endocrinol Metab 1997;82(5):1582-1588. https://doi.org/10.1210/jcem.82.5.3916.
- Goldsby RA, Kindt TJ, Osborne BA, Kuby J. 2004. Inmunología. México, D.F.: McGraw-Hill Interamericana.
- Makris A, Thornton CE, Xu B, Hennessy A. Garlic Increases IL-10 and Inhibits TNF alfa and IL-6 production in Endotoxin-stimulated Human Placental Explants. Placenta 2005; 26(10):828-834. https://doi.org/10.1016/j.placenta.2004.10.019
- Sharma A, Satyam A, Sharma JB. Leptin, IL-10 and inflammatory markers (TNF-alpha, IL-6 and IL-8) in pre-eclamptic, normotensive pregnant and healthy non-pregnant women. Am J Reprod Immunol 2007;58(1):21-30. https://doi.org/10.1111/j.1600-0897.2007.00486.x.
- Hanna N, Bonifacio L, Weinberger B, Reddy P, Murphy S, Romero R, Sharma S. Evidence for interleukin-10-mediated inhibition of cyclo-oxygenase-2 Expression and prostaglandin production in preterm human placenta. Am J Reprod Immunol 2006; 55(1):19-27. https://doi.org/10.1111/j.1600-0897.2005.00342.x.
- Royle C, Lim S, Xu B, Tooher J, Ogle R, Hennessy A. Effect of hypoxia and exogenous IL-10 on the pro-inflammatory cytokine TNF-alpha and the anti-angiogenic molecule soluble Flt-1 in placental villous explants. Cytokine 2009;47(1):56-60. https://doi.org/10.1016/j.cyto.2009.04.006.
- Peltier, MR, Gurzenda EM, Murthy A, Chawala K, Lerner V, Kharode I, et al. Can Oxygen Tension Contribute to an Abnormal Placental Cytokine Milieu? Am J Reprod Immunol 2011;66(4):279-285. https://doi.org/10.1111/j.1600-0897.2011.00998.x.
- Denison FC, Kelly RW, Calder AA, Riley SC. Cytokine secretion by human fetal membranes, decidua and placenta at term. European Society of Hum Reprod 1998;13(12):3560-3565. https://doi.org/10.1093/ humrep/13.12.3560.
- Rinehart BK, Terrone DA, Lagoo-Deenadayalan S, Barber WH, Hale EA, Martin JN, et al. Expression of the placental cytokines tumor necrosis factor alfa, interleukin 1b, and interleukin 10 is increased in preeclampsia. Am J Obstet Gynecol 1999;181(4):915-920. https://doi.org/10.1016/s0002-9378(99)70325-x.
- Laham N, Brennecke SP, Rice GE. Interleukin-8 release from human gestational tissue explants: the effects of lipopolysaccharide and cytokines. Biol Reprod 1997;57(3):616-620. https://doi.org/10.1095/biolreprod57.3.616.
- Ma Y, Mor G, Abrahams VM, Buhimschi IA, Buhimschi CS, Guller S. Alterations in Syncytiotrophoblast Cytokine Expression Following Treatment with Lipolysaccaharide. Am J Reprod Inmunol 2006;55(1):12-18. https://doi.org/10.1111/j.1600-0897.2005.00347.x.
- Malek A, Sager R, Schneider H. Effect of Hypoxia, Oxidative Stress and Lipopolysaccharides on the Release of Prostaglandins and Cytokines from Human Term Placental Explants. Placenta 2001;22(15):S45–S50. https://doi.org/10.1053/plac.2001.0635.
- Crocker IP, Tansinda DM, Jones CJ, Baker PN. The influence of oxygen and tumor necrosis factor-alfa on the cellular kinetics of term placental villous explants in culture. J Histochem Cytochem 2004;52(6):749-757. https://doi.org/10.1369/jhc.3a6176.2004
- Hung TH, Charnock-Jones DS, Skepper JN, Burton GJ. Secretion of tumor necrosis factor-alpha from human placental tissues induced by hypoxia-reoxygenation causes endothelial cell activation in vitro: A potential mediator of the inflammatory response in preeclampsia. Am J Pathol 2004;164(3):1049-1061. https://doi.org/10.1016/s0002-9440(10)63192-6.
- Williams MA, Mahomed K, Farrand A, Woelk GB, Mudzamiri S, Madzime S et al. Plasma tumor necrosis factor-alpha soluble receptor p55 (sTNFp55) concentrations in eclamptic, preeclamptic and normotensive pregnant Zimbabwean women. J Reprod Inmunol 1998;40(2):159-173. https://doi.org/10.1016/s0165-0378(98)00074-6
- Anaya J. Descripción molecular del TNF-a. Reumatología 2003;19(2):112-120.[citado agosto 2019]. Disponible en: https://www.yumpu.com/es/document/read/40592567/descripcian-molecular-del-tnf-i
- Carpentier PA, Dingman AL, Palmer TD. Placental TNF-a Signaling in Illness-Induced Complications of Pregnancy. Am J Pathol 2011; 178(6):2802-2810. https://doi.org/10.1016/j.ajpath.2011.02.042.
- Rochelson B, Dowling O, Schwartz N, Metz CN. Magnesium sulfate suppresses inflammatory responses by human umbilical vein endothelial cells (HuVECs) through the NFkappaB pathway. J Reprod Immunol 2006;73(2):101-107. https://doi.org/10.1016/j. jri.2006.06.004