Introducción
Recientemente se ha descrito que en las enfermedades infecciosas, las biopelículas (biofilms) están implicadas en un 65% de los casos (1). Las biopelículas crecen como comunidades o grupos microbianos estructurados en superficies de material sintético, inmersas en una matriz polimérica extracelular de naturaleza polisacárida, con un fenotipo alterado que puede ser menos susceptible a los agentes antimicrobianos (2). Las biopelículas se unen a un sustrato de manera irreversible, y las células sésiles que la conforman presentan características fenotípicas diferentes a sus correspondientes células de vida libre o planctónicas (1,3).
Las infecciones por biopelículas pueden ser causadas por uno o varios microorganismos, encontrándose involucradas especies de hongos y bacterias. Las biopelículas de las bacterias y su papel en las enfermedades infecciosas han sido investigadas con detalle en cuanto a su estructura y propiedades, pero no se sabe mucho sobre las biopelículas en los hongos (3). Muchas de las micosis más perseverantes al tratamiento se asocian a la colonización y la formación de biopelículas (4, 5, 6). Inicialmente se describió la formación de biopelículas asociadas a procesos infecciosos causados por especies de Candida como el Complejo C. albicans, Complejo C. glabrata, Complejo C. parapsilosis, C. guilliermondii, C. krusei, C. tropicalis, entre otras, Cryptococcus neoformans, Cryptococcus laurentii y Aspergillus (1,3).
Estudios describen que la formación de biopelículas por Candida se relaciona con una alta tasa de morbilidad y mortalidad en pacientes con candidemia, seguramente porque impide la erradicación completa de este microorganismo del torrente circulatorio (7). Esto conlleva a tratamientos costosos, incremento de la estadía hospitalaria y el índice de mortalidad (2). Se estima que las causas de neumonías nosocomiales al colocar tubo endotraqueal y las infecciones del tracto urinario al colocar sondas, oscilan entre 10 y 30% en la formación de biopelículas, de un 3 al 8% de fungemias al colocar catéteres intravasculares y la inserción de implantes de válvulas cardíacas, prótesis articulares, bucales y marcapasos de 1 a 7% (1, 8-12). La formación de biopelículas causadas por estos microorganismos se puede detectar y demostrar en estos dispositivos como también en los tejidos relacionados con estos cuerpos implantados, a través de la microscopia electrónica, la cual puede ser de transmisión (MET) o de barrido (MEB) (13,14).
Referencias recientes suministradas por la Red de Vigilancia de Infecciones Nosocomiales de los Estados Unidos, colocan al género Candida como la cuarta causa más común de infecciones del torrente sanguíneo. En varios estudios el Complejo C. parapsilosis se ha convertido en el segundo organismo fúngico más frecuente y a veces el principal debido a su asociación en recién nacidos críticamente enfermos, pacientes con enfermedades oncológicas, cirugías de gran alcance y estadías prolongadas en unidades de cuidados intensivos, todo esto relacionado con el uso de catéteres intravasculares y la manipulación del personal de salud hacia el paciente (6).
Con lo anteriormente expuesto se propone hacer una revisión acerca de la formación de biopelículas, mecanismos de resistencia y evaluación de los antifúngicos más estudiados en el Complejo C. parapsilosis como agente etiológico de infecciones nosocomiales.
Formación de biopelículas
El Complejo Candida parapsilosis se ha convertido en un importante agente causal de candidemias en los últimos años, los mecanismos por los cuales estas especies de Candida evaden las defensas del huésped y colonizan los tejidos es muy poco conocida, por lo que ciertos investigadores buscan nuevas estructuras que representen la virulencia y mejoren la comprensión del proceso de infección (15). Las biopelículas del Complejo C. parapsilosis están constituidas por conglomerados de células levaduriformes y pseudohifas, pero menos densas y complejas que las de C. albicans. Algunas cepas de C. parapsilosis producen en menor cantidad estructuras de biofilms que C. albicans, mientras ciertos fenotipos pseudohifales de C. parapsilosis generan más biofilms, siendo más invasivas en agar que las especies donde predomina la forma de levadura (16-18). De acuerdo a la especie del Complejo, existe una gran variabilidad, la matriz posee gran cantidad de carbohidratos de carbono en una proporción de 611 mg/g de biopelícula seca y escasas proteínas en un aproximado de 50,9 mg/g de biopelícula seca (19, 20). C. parapsilosis es la que presenta mayor variabilidad de producción de biopelículas, seguida de C. orthopsilosis y C. metapsilosis, esta última produce biopelículas con poca masa Fig. 3, (21, 22).
El Complejo C. parapsilosis al igual que otras especies de Candida, se ha asociado a altas tasas de mortalidad, y esto viene dado por la capacidad de producir biopelículas. En pacientes de un hospital italiano donde se comparó la capacidad e incapacidad de formar biopelículas reportaron 70 % frente a 45,7% respectivamente, y al aplicar la tasa de mortalidad por estos aislamientos con formación de biopelículas in vitro, reportaron 71,4% de formación de biopelículas en comparación con 28% que producían deficiencia de las mismas (7). Un estudio a gran escala documentó que C. parapsilosis tuvo un 20,6% de mayor avidez de adhesión que C. albicans en células del epitelio bucal y 143,7% de mayor adherencia al acrílico (23); un segundo estudio encontró que un 59% de los aislamientos en sangre producían biopelículas frente a 39% de aislados provenientes de piel. Mientras que otro estudio solo encontró un 21,8% formando biopelículas en sangre (22).
Un grupo de investigadores encontraron que 86% de los aislados en sangre del Complejo C. parapsilosis formaban más biopelículas en comparación con otros lugares anatómicos con un 47% (24). Dos estudios más recientes describen una generación mutante de C. parapsilosis libre de homocigotos deficientes de lipasa, con menor capacidad para formar biopelículas donde el gen BCR1 es necesario para la formación adecuada de biopelículas, por lo tanto, estas especies de C. parapsilosis fueron menos virulentas en cultivos de tejido durante la infección en murinos (25,26).
En las células eucariotas, la fosforilación de la proteína regula la clave de los sucesos biológicos como es el ciclo celular, la transcripción de genes y el apareamiento, y es controlada por las proteínas quinasas y fosfatasas (27). La fosfatasa puede existir en forma soluble o permanecer unida a la superficie de la membrana interna o a la pared celular (28). La presencia de fosfatasas en la superficie de diferentes microorganismos es llamada ectocitoplasmática o extracitoplasmática. En los hongos la ectofosfatasa se ha descrito como componente de la superficie de especies de Candida, Saccharomyces cerevisiae, Sporothrix schenckii, Aspergillus fumigatus, Cryptococcus neoformans y Fonsecaea pedrosoi (14). Ensayos sobre la ectofosfatasa en el Complejo Candida parapsilosis mediante MET, manifiestan que la naturaleza bioquímica y la distribución celular de esta enzima podrían proteger a las células de las condiciones ácidas, el almacenamiento del buffer y el entorno inmediato de las células fúngicas con el fosfato inorgánico Fig. 1 (14, 15). Las ectofosfatasas como enzimas pueden influir en la patogénesis fúngica favoreciendo la adhesión del hongo a las células epiteliales y los fibroblastos infectados (29, 30), elementos claves en la interacción de las especies de Candida con las células del huésped. Por consiguiente la actividad de la enzima ectofosfatasa presente en la superficie de la pared celular del Complejo Candida parapsilosis, su adhesión al entorno por factores como el flujo del medio que las rodea (orina, sangre, saliva, moco), el pH, la temperatura y la osmolaridad entre otros; favorecen la maduración de la biopelícula aumentando la patogénesis de la infección (3, 31, 32). La biopelícula madura está formada por una red muy consistente de blastoconidias, hifas y pseudohifas, que a la vez están recubiertas por una matriz extracelular (3), donde juega un papel muy importante el circuito quorum sensing, el cual se define cuando una célula microbiana percibe la proximidad de otras células y genera señales químicas que corresponden con metabolitos secundarios creando un sistema de estímulos y respuestas correlacionadas con la densidad de la población en estudio. El tirosol y el farnesol son moléculas componentes del quorum sensing, donde el tirosol favorece la formación de biopelículas en las etapas iniciales e intermedias del desarrollo, mientras que el farnesol controla el desarrollo excesivo de las mismas (21).
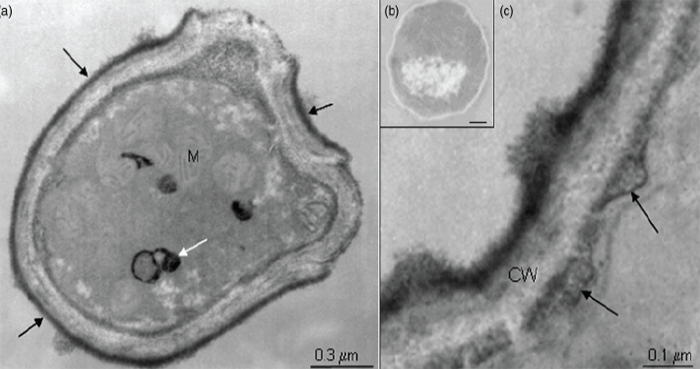
Figura 1. Tomada de Kiffer-Moreira y col. (15). Distribución de las fosfatasas (ectofosfatasas) en la pared celular y membrana plasmática de Candida parapsilosis, que demuestran la presencia de depósitos de fosfato de cerio. (a: pared celular y c: membrana plasmática) flechas en negro. Estructuras intracelulares parecidas a vesículas, flecha en blanco, donde también se observan precipitados de fosfato de cerio, que no se observaron en células de levaduras que fueron preparadas para microscopía electrónica de transmisión sin la incubación con cloruro de cerio en la figura (b). Escala 0,4 mm.
Biopelículas y microscopía Electrónica
La microscopía electrónica ha sido una herramienta poderosa para el estudio de diferentes procesos biológicos. Un grupo de investigadores evaluaron la morfología y aspectos estructurales de Candida parapsilosis por MEB donde observaron variantes morfológicas (fenotipos) que afectan aspectos de la fisiología celular, crecimiento, adhesión, producción de fango extracelular y formación de biopelículas, correlacionando las condiciones de cultivo y superficie de contacto en pelos humanos y uñas Fig. 2. Las células del fenotipo crepé o corrugadas son pseudohifas predominantemente alargadas, mientras que las células del fenotipo suave o lisas se presentan como blastoconidias numerosas en forma agrupada, ya sea en cultivos líquidos o en las uñas humanas y las superficies de pelo (33).
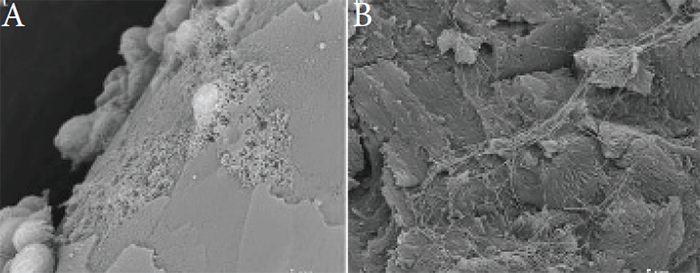
Figura 2. Tomado de Oliveira y col. (33). Micrografía electrónica de C. parapsilosis con variante morfológica aislada de muestras clínicas en diferentes superficies.
A) Interacción de C. parapsilosis con las células del pelo humano donde se exhibe delgado material amorfo extracelular floculante. B)Interacción C. parapsilosis con uñas de humanos que muestran un material extracelular fibrilar que une las células adyacentes con la superficie de la uña.
Conociendo la existencia de las 3 clases genéticas que conforman el complejo C. parapsilosis: C. parapsilosis sensu stricto, C. orthopsilosis y C. metapsilosis y de la poca información disponible de estas nuevas especies para formar biopelículas en sustratos biomédicos, un grupo de investigadores caracterizaron 10 aislamientos de cada una de las especies en discos de elastómero de silicona, cuantificados por el 2,3-bis (2-metoxi-4-nitro-5-sulfonatofenil)-2H -tetrazolio-5-carboxanilida (XTT), mediante MEB y microscopía láser confocal respectivamente. Este estudio reveló que las tres especies fueron capaces de producir biofilms. Los análisis por MEB de estas especies mostraron biopelículas con racimos de células de levaduras adheridas a la superficie del catéter. Además, la microscopía confocal de los análisis mostraron la presencia de células que van incrustadas en las biopelículas con un espesor entre 62 y 85 micras (34).
Un estudio categorizo 30 muestras clínicas provenientes de diferentes lugares anatómicos correspondientes a 7 C. parapsilosis, 8 C. orthopsilosis, 5 C. metapsilosis y las restantes, otras especies de Candida. Utilizando MEB, mediante las técnicas de cuantificación con coloración cristal violeta y XTT encontraron un gran número de blastoconidias, pero una cantidad limitada de pseudohifas para C. parapsilosis y C. orthopsilosis, mientras que C. metapsilosis presentó un número muy limitado de blastoconidias, Fig. 3 (35).
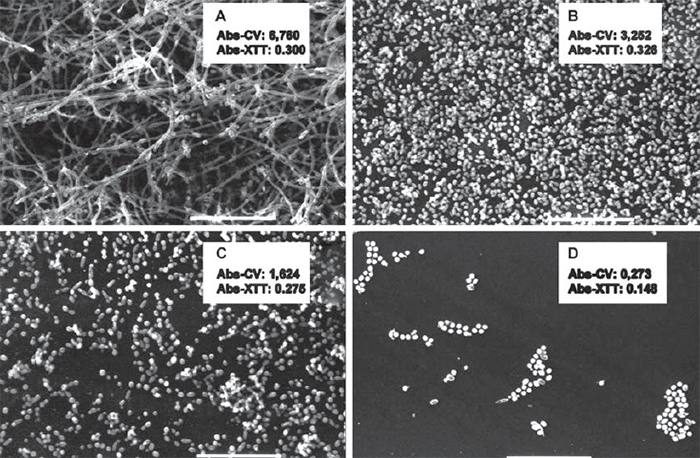
Figura 3. Tomado de Melo y col. (35). Micro imágenes por microscopía de barrido. A) C. tropicalis. B) C. parapsilosis. C) C. orthopsilosis. D) C. metapsilosis. Los números en cada imagen representan los valores de absorbancia obtenidos por tinción de cristal violeta (CV) y método de cuantificación XTT, para cada cepa respectivamente. Escala de barras: 50 μm.
A través de un método barato, sencillo y reproducible para el estudio de catéteres y prótesis sobre elastómeros de silicona, un grupo de investigadores tilizó XTT y peso seco. Este estudio fue visualizado por microscopía de fluorescencia y confocal de barrido láser con blanco de Calcoflúor, demostraron que C. parapsilosis produjo una mínima formación de biopelículas visible en la matriz, mientras que otra cepa produjo solo blastoconidias basales, comparándolas con C. albicans quien produjo más y diferentes biopelículas (17). La utilización de láminas planas para estudios microbiológicos permite la cuantificación fácil, y por primera vez, produce imágenes reproducibles de vida intacta. Por otra parte, este sistema permite la producción de un alto volumen de biopelículas (cantidades gramo), lo que facilitará en el futuro estudios genéticos y proteómicos para comprender la biología y resistencia a los medicamentos de las biopelículas. Trabajos similares debería llevarse a cabo por cada especie de Candida (2).
Las diferencias observadas entre los resultados cuantificados por XTT y peso seco tienen implicaciones importantes para los estudios de biopelículas. El XTT puede ser usado para monitorear la formación de biopelículas o progresión de una cepa en particular. El peso seco y análisis microscópicos son fundamentales para la comparación de cepas y especie. Una hipótesis es que dada la abundancia o escases de la producción de biopelículas, estas células pueden estar cambiando el metabolismo de las funciones de rutina. Por lo tanto, las cepas productoras de bajos niveles o ausencia de biopelículas, se esperaría un mayor nivel de expresión en los marcadores de rutina de la actividad metabólica como es el XTT. El uso de este modelo, ha demostrado que las cepas invasivas de especies de Candida parecen ser superiores en la formación de biopelículas con respecto a las no invasoras, sin embargo, deberían hacerse más trabajos que impliquen más muestras clínicas para determinar la validez de esta observación (2).
En tiempos pasados era raro que sucediera una endocarditis cuyo agente causal fuese un hongo, pero con el advenimiento y excesivo uso de antibióticos, la administración de esteroides y las cirugías cardiovasculares se han incrementado los casos. El primer caso de endocarditis por hongos se reportó en 1939, posteriormente el primer caso de endocarditis por hongos después de una cirugía de corazón abierto fue descrito en 1956 y la primera prótesis valvular causando endocarditis por agentes fúngicos fue detallada en 1964 (36). Diez años más tarde, un grupo de investigadores, hicieron una revisión sobre 67 casos de endocarditis cuyas prótesis vasculares estaban infectadas por hongos. C. albicans representó el 54% mientras que C. parapsilosis obtuvo un 16% en el respectivo estudio (37).
Otros investigadores estudiando la ultraestructura vegetativa en los seres humanos mediante MET, encontraron que C. parapsilosis estuvo presente en 5 válvulas protésicas. Todas las zonas de vegetación mostraron células levaduriformes con una matriz intercelular muy compacta y ausencia de interconexión de las fibrillas. Las blastoconidias de C. parapsilosis fueron vistas aproximándose a la superficie de la válvula e invadiendo los tejidos. No observaron hifas en la válvulas y tejidos por esta misma técnica, Fig. 4 (38).
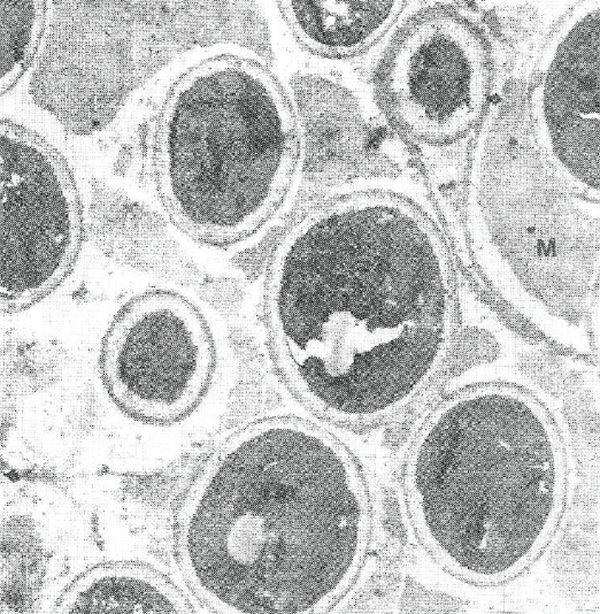
Figura 4. Tomado de Marrie y col. (38). Micrografía electrónica de transmisión de material vegetativo de uno de los pacientes en estudio, donde se observa el compacto de la matriz intercelular (M) y la ausencia de la interconexión de las fibrillas.
El dispositivo más comúnmente usado, el cual es implantado quirúrgicamente, es el catéter venoso central, que se utiliza para administrar los líquidos y nutrientes, así como los fármacos citotóxicos. Las infecciones pueden surgir en cualquier momento durante el uso del catéter, donde la mayoría de las veces este dispositivo es mantenido por largo tiempo. A veces, la infusión del líquido en sí, o el tubo del catéter se contamina, por la introducción de los microorganismos que componen la microbiótica de los pacientes o las manos del personal que los manipula (22). La colonización y la infección por C. parapsilosis son dependientes de la capacidad del hongo para adherirse a las células huésped y tejidos, especialmente en superficies mucosas. La adhesión a los catéteres facilita la formación de biofilms promoviendo severos daños, la hidrofobicidad de la superficie celular se ha relacionado con la adhesión inicial de C. parapsilosis a la misma y la producción de material baboso o secretante. (23).
Mecanismos de resistencia de las biopelículas
La resistencia de las biopelículas en Candida a los antifúngicos se presenta como un hecho multifactorial en el que intervienen diversos mecanismos (21):
- Restricción en la penetración del antibiótico a través de la matriz de la biopelícula.
- Presencia de enzimas catalizadoras del fármaco-antifúngico.
- Existencia de sistemas de señalización intercelular (quorum sensing) capaces de generar respuestas de estrés.
- Desarrollo de respuestas de estrés a condiciones ambientales hostiles.
- Generación de microambientes hostiles a la acción antifúngica en el interior de la biocapa, con baja tensión superficial de oxígeno, capaces de inactivar los fármacos antifúngicos.
- Presencia de una tasa de crecimiento alterada (fase de crecimiento cero, estado estacionario, estado latente o células persistentes).
Estudios han sugerido que la resistencia puede estar relacionada con la barrera que propicia la composición de la matriz extracelular que dificultad la difusión del fármaco activo por su alta densidad dentro de la biopelícula (42). Investigaciones describieron como la velocidad de difusión de los fármacos ensayados en el Complejo C. parapsilosis y C. tropicalis fue más lenta respecto al Complejo C. glabrata y C. krusei, además que la sustancia polimérica extracelular al interactuar con los fármacos era inactivada (2, 4, 21). La velocidad de crecimiento en el estado fisiológico de las células sésiles pareciera ser un factor clave en la modulación de la actividad de los antifúngicos (43). Estudios recientes describen que hay subpoblaciones que persisten en el interior de una biopelícula a pesar de la presencia de los antifúngicos lo cual sugiere que no son mutantes sino variantes fenotípicas de la cepa salvaje (44).
Un ejemplo claro se presenta en aislamientos de C. parapsilosis y C. tropicalis que producen biopelículas sensible, menos sensibles y resistentes a las equinocandinas (5), pues su acción se relaciona con el β-1,3-D-glucano, que es indispensable en la pared celular de las Candidas y desarrolla un papel importante en la adhesión de este microorganismo a las superficies (5, 45, 46).
Resistencia a los antifúngicos
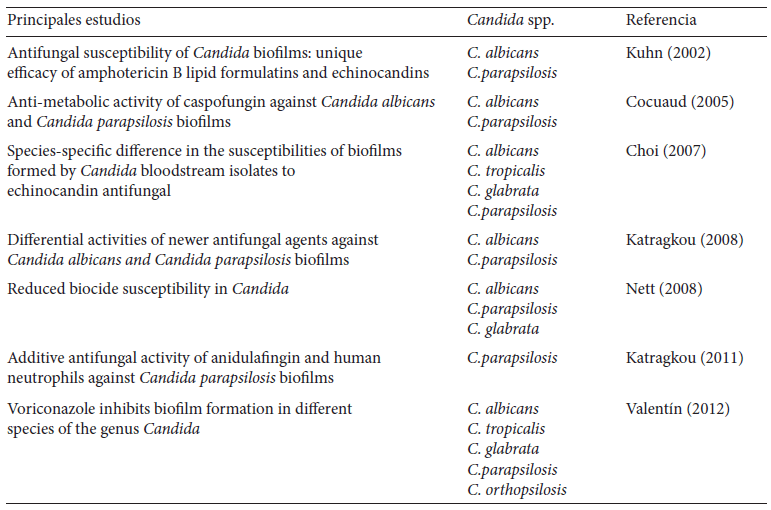
Existen datos que exponen la resistencia a tratamientos antimicóticos de especies de Candida productoras de biopelículas, Tabla 1. La resistencia viene dada de acuerdo a la manera en que se desarrollan la biopelículas, la cual desaparece cuando estos microorganismos vuelven a desarrollarse en fase planctónica (21,27). Sin embargo, formulaciones lipídicas de anfotericina B y las equinocandinas son más activas sobre las biopelículas que la anfotericina B desoxicolato, azoles y flucitosina (39). Aunque los nuevos azoles como voriconazol y ravuconazol han demostrado poca eficacia frente a biopelículas de Candida. Pero también se ha descrito que el uso de voriconazol a 0,25 g/ml reduce un 79% la formación de biopelículas en el Complejo Candida parapsilosis (40). Sin embargo, un estudio realizado en placas de poliestireno para la formación de biopelículas frente a voriconazol, mostraron la capacidad de reducir la formación de biopelículas cuando el antifúngico estaba presente desde el comienzo del proceso de formación de la misma (41).
Cuadro 1. Estudios sobre el comportamiento de los antifúngicos frente a biopelículas formadas por el Complejo Candida parapsilosis.
Dos factores han contribuido a esta resistencia como es el uso de azoles y el incremento de dispositivos intravasculares, trayendo como consecuencia un incremento de especies comensales como los Complejos C. parapsilosis y C. glabrata, pero hasta la fecha no se ha descrito un mecanismo específico que explique la resistencia asociada de especies de Candida a biopelículas.
Otros estudios describieron el efecto inhibitorio de las equinocandinas en el metabolismo de las biopelículas de C. albicans y C. parapsilosis que eran resistentes a anfotericina B desoxicolato, fluconazol, nistatina, ravuconazol y voriconazol (47,48).
Investigaciones con caspofungina y micafungina ejercieron un efecto reductor del 80% de la actividad metabólica de reducción del XTT, con concentraciones entre 0.25 y 1 μg/ml contra biopelículas de C. albicans y C. glabrata; sin embargo su mecanismo de acción es mucho menor frente a las biopelículas del Complejo C. parapsilosis. La micafungina se muestra como la más activa sobre el Complejo C. parapsilosis, seguida de la anidulafungina y la caspofungina (con una media geométrica (MG) de CIM de 4, 32 y 64 g/ml, respectivamente) (5).
Ciertos autores han descrito un efecto paradójico sobre el crecimiento de las biopelículas formadas por C. albicans, C. parapsilosis, C. metapsilosis y C. orthopsilosis, con concentraciones de caspofungina superiores a la concentración inhibitoria mínima (CIM) (35); contrastando con otros investigadores donde caspofungina y anidulafungina presentaron una CIM menos elevada respecto a voriconazol y posaconazol (48). Estas CIM contra el Complejo C. parapsilosis también la han descrito otros investigadores (17). Estudios han comprobado que son necesarias concentraciones más altas de equinocandinas para inhibir las biopelículas de 7 asilamientos de C. parapsilosis con una MG de 9,1 μg/ml; una MG de 4 μg/ml para 8 aislamientos de C. orthopsilosis y una MG de 2 μg/ml para 5 aislamientos de C. metapsilsosis (35, 48). Mientras que otros estudios describen que caspofungina es activa en diferentes fases de crecimiento en la formación de biopelículas (49, 50); y que anidulafungina no interactúa de manera antagónica con los neutrófilos, mostrando acción aditiva contra biopelículas de C. parapsilosis (51).
Conclusiones
Las biopelículas en la actualidad han tomado importancia clínica, debido a su estrecha relación con las infecciones fúngicas, asociándose de forma directa con los problemas de resistencia a los antifúngicos, específicamente cuando está de por medio el uso de material protésico y catéteres intravasculares. Por lo tanto, el Complejo Candida parapsilosis debido a su afinidad con este tipo de factores predisponentes se convierte en un Complejo productor de biopelículas a ser tomado en cuenta para realizar estudios con nuevos antifúngicos y sitios de acción, además de esquemas terapéuticos que permitan evitar o disminuir la formación de biopelículas, para tratar de minimizar las infecciones nosocomiales relacionadas por este Complejo.
Referencias
- Douglas LJ. Medial importance of biofilms in Candida infections. Rev Iberoam Micol 2002;19:139-143.
- Kuhn DM, Chandra J, Mukherjee PK, and Ghannoum MA. Comparison of biofilms formed by Candida albicans and Candida parapsilosis on on bioprosthetic surfaces. Infect Immun 2002;70:878-888.
- Castrillón L, Palma A, Padilla M. Biopelículas fúngicas. Dermatol Rev Mex 2013;57:350-361.
- Al-Fattani MA, Douglas LJ. Biofilm matrix of Candida albicans and C. tropicalis: chemical composition and role in drug resistance. J Med Microbiol 2006;55:999-1008.
- Choi HW, Shin JH, Jung SI, Park KH, Cho D, Kee SJ, et al. Species-specific differences in the susceptibilities of biofils formed by Candida bloodstream isolates to echinocandin antifungals. Antimicrob Agents Chemother 200751:1520-1523.
- Wisplinghoff H, Bischoff T, Tallent SM, Seifert H, Wenzel RP, and Edmon MB. Nosocomial bloodstream infections in US hospitals: analysis of 24,179 cases from a prospective nationwide surveillance study. Clin Infect Dis 2004;39:309-317.
- Tumbarello M, Posteraro B, Trecarichi EM, Fiori B, Rossi M, Porta R, et al. Biofilm production by Candida species and inadecuate antifungal therapy as predictors of mortality for patients with candidemia. J Clin Microbiol 2007; 45:1843-1850.
- Lewis, K. Riddle of biofilm resistance. Antimicrob. Agents Chemother 2001; 45:999-1007.
- Nikawa H, Nishimura H, Makihara S, Hamada T, Sadamori S, and Samaranayake, LP. Effect of serum concentration on Candida biofilm formation on acrylic surfaces. Mycoses 2000;43:139-143.
- Donelli G. Vascular catheter-related infection and sepsis. Surg Infect Larchmt 2006;Suppl 2:S25-S27.
- Opilla M. Epidemiology of bloodstream infection associated with parenteral nutrition. Am J Infect Control 2008;36:S173-S178.
- Song JW, Shin JH, Jung SI, Cho D, Kee SJ, Shin MG, et al. Differences in biofilm production by three genotypes of Candida parapsilosis from clinical sources. Med Mycol 2005;43:657-661.
- Blankenship JR., Mitchell AP. How to Build a biofilm: a fungal perspective? Curr Opin Microbiol 2006;9:588-594.
- Chandra J, Zhou G, Ghanoum MA. Fungal biofilms and antimycotics. CurrDrug Targets 2005;6:887-894.
- Kiffer-Moreira T, Acacia A, Alviano WS, Barbosa FM, Souto-Padron T, Nimrichter L, et al. 2007. An ectophosphatase activity in Candida parapsilosis influences the interaction of fungi with epitelial cells. FEMS Yeast Res 2007;7:621-628.
- Hawser SP, Douglas LJ. Biofilm formation by Candida species on the surface of catheter materials in vitro. Infect Immun 1994;62:915-921.
- Kuhn DM, George T, Chandra J, Makherjee PK, Ghannoum MA. Antifungal susceptibility of Candida biofilms: unique efficacy of amphotericin B lipid formulations and echinocandins. Antimicrob Agents Chemother 2002;46:1773-1780.
- Laffey SF, Butler G. Phenotype switching affects biofilm formation by Candida parapsilosis. Microbiology 2005;1073-1081.
- Dorko E. Pilipcinec E, Mahel M, Viragova S, Bracokova I, Dorko F, et al. Yeast-like microorganisms in eye infections. Folia Microbiol 2001;46:147–150.
- Ellis D. Amphotericin B: spectrum and resistance. J Antimicrob Chemother 2002;49(1):7–10.
- Pozo JL, Cantón E. Candidiasis asociada a biopelículas. Rev Iberoam Micol 2015;33:176-183.
- Trofa D, Gácser A, and Nosanchuk JD. Candida parapsilosis, and Emerging Fungal Pathogen. Clin Microbiol Rev 2008;21:606-625.
- Barret-Bee K, Hayes Y, Wilson RG, and Ryley JF. A comparision of phospoliphasa activity, cellular adherence and pathogenicity of yeast. J Gen Microbiol 1985;131:1217-1221.
- Shin JH, Kee SJ, Shin MG, Kim SH, Shin DH, Lee SK, et al. Biolfilm production by isolates of Candida species recovered from nonneutropenic patient: comparison of bloodstream isolates with isolates from other sources. J Clin Microbiol 2002; 40:1244-1248.
- Ding C, Butler G. Development of a gene knockout system in Candida parapsilosis reveals a conserved role for BCR1 in biofilm formation. Eukaryot Cell 2007;6:1310–1319.
- Gacser A, Trofa D, Schafer W, and Nosanchuk JD. Targeted gene deletion in Candida parapsilosis demonstrates the role of secreted lipase in virulence. J Clin Investig 2007;117:3049–3058.
- Hunter T. Protein kinases and phosphatases: the yin and yang of protein phosphorylation and signaling. Cell 1995;80:225-236.
- González FJ, Fauste C, Burguillo FJ, and Dominguez A. Kinetic behavior of a repressible acid phosphatase from yeast Yarrowia lipolytica: a comparative study between the solubilized enzyme bound to intact cells. Biochim Biophys Acta 1993;1162:17-27.
- Kneipp LF, Palmeira VF, Pinheiro AAS, Alviano CS, Rozental S, Travassos LR, et al. Phosphatase activity on the cell of Fosecaeae pedrosoi. Med Mycol 2003;41:707-717.
- Kneipp LF, Rodrigues ML, Holandino C, Esteves FF, Souto-Padrón T, Alviano CS, et al. Ectophosphatase activity in conidial forms of Fosecaea pedrosoi is modulated by exogenous phosphate and influences fungal adhesión to mammalian cells. Microbiol 2004;150:3355-3362.
- Flemming HC, Wingender J. The biofilm matrix. Nat Rev Microbiol 2010;8:623-633.
- Mavor AL, Thewes S, and Hube B. Systemic fungal infections caused by Candida species: epidemiology, infection process and virulence attributes. Curr Drug Targets 2005;6:863-874.
- Oliveira MT, Franca EJG, Costa VG, San-Martin JAB, Andrade CGTJ, and Furnaleto MC. Study of Candida parapsilosis Morphological colonies variants and colonization of the coffee berry borer by Beauveria bassiana. Disponible en: www.escavador.com/sobre/5302847/marcia-cristina-furlaneto. [Citado 25 septiembre 2016].
- Lattif A, Mukherjee P, Chandra J, Swindell K, Lockhart S, Diekema DJ, et al. Characterization of biofilms formed by Candida parapsilosis, C. metapsilosis, and C. orthopsilosis. Int J Med Microbiol 2010;300(4):265-70.
- Melo AS, Bizerra FC, Freymuller E, Arthington-Skaggs BA and Colombo AL. Biofilm production and evaluation of antifungal susceptibility amongst clinical Candida spp. Isolates, including strains of the Candida parapsilosis complex. Med Mycol 2010; Early Online:1-10.
- Chaudhuri MR. Fungal endocarditis after valve replacements. J Thorac Cardiovasc 1970;60:207-214.
- Seelig MS, Speth CP, Kozinn PJ, Toni EF, and Taschdjian CL. Candida endocarditis after cardiac surgery. Clues to early detection. J Thorac Cardiovasc 1973;65:583-601.
- Marrie TJ, Cooper JH, and Costerton JW. Ultraestructure of Candida parapsilosis. Endocarditis Infection and Immunity 1984; 45:390-398.
- d´Enfert C. Biofilms and their role in the resistance of pathogenic Candida to antifungal agents. Curr. Drug Targets 2006;7:465-470.
- Jabra-Rizk MA, Falker WA and Meiller TF. Fungal biofilms and Drugs Resintance. E Infect Dis 2004;10:14-19.
- Cateau E, Berjeaud JM, Rodier MH, Imbert C. Fungal biofilm inhibition by a component naturally produced by Candida albicans yeast growing as a biofilm. Int J Antimicrob Agents 2008;31:166-170.
- Douglas LJ. Candida biofilms and their role in infection. Rev T Microbiol 2003;11(1):30-36.
- Stewart PS. New ways to stop biofilm infections. Lancet 2003;361-97.
- Quindós G, Villar-Vidal M y Eraso E. Actividad de micafungina contra las biopelículas de Candida. Rev Ibero Micol 2009;26(1):49-55.
- Nett EJ, Lincoln L, Marchillo K, Ades D. Beta - 1, 3 glucans as a test for central venous catheter biofilm infection. J Infect Dis 2007;195:1705-1712.
- Nett EJ, Lincoln L, Marchillo K, Massey R, Holoyda K, Hoff B, et al. Putative role of beta – 1,3 glucans in Candida albicans biofilm resistance. Antimicrob Agents Chemother 2007;51:510-520.
- Katragkou A, Chatzimoschou A, Simitsopoulou M, Dalakiouridou M, Za-Mataftsi E, Tsantali C, et al. Differential activities of newer antifungal agents against Candida albicans and Candida parapsilosis biofilms. Antimicrob Agents Chemother 2008;52:357-360.
- Cocuaud CH, Rodier MH, Daniault G, Imber Ch. Anti-metabolic activity of caspofungina against Candida albicans and Candida parapsilosis biofilms. J Antimicrob Chemother 2005;56:507-512.
- Bachmann S, VandeWalle K, Ramage G, Patterson T, Wickes B, Graybill J, et al. In Vitro Activity of Caspofungin against Candida albicans Biofilms. Antim Agents and Chemot 2002;46(11):3591-3596.
- Katragkou A, Chatzimoschou A, Simitsopoulou M, Georgiadou E, et al. Additive antifungal activity of anidulafungin and human neutrophils against Candida parapsilosis biofilms. J Antimicrob Chemother 2011;66:588-591.