Introducción
Las amibas de vida libre (AVL) son protozoarios que se encuentran ampliamente distribuidos en la naturaleza, animales y humanos. Son de interés en el área clínica y diagnóstica, debido a que han demostrado ser causantes de una variedad de enfermedades de curso diverso, tanto en pacientes inmunosuprimidos como inmunocompetentes (1).
Las AVL del género Acanthamoeba, son las que producen mayor número de casos de afección en el hombre y se han descrito varias especies que pueden producir principalmente tres patologías distintas: Encefalitis Granulomatosa Amibiana (EGA), Dermatitis Acanthamebiana (DA) y Queratitis Acanthamebiana (QA), siendo esta última la entidad de mayor prevalencia, principalmente en pacientes inmunocompetentes usuarios de lentes de contacto (2,3).
El cultivo de las muestras ha sido considerado como el procedimiento diagnóstico más sensible y específico por muchos años. Sin embargo, hoy se conoce que la identificación morfológica a partir de cultivos, a pesar de su gran utilidad carece de rapidez y su sensibilidad es limitada para realizar un diagnóstico oportuno (4,5).
Hoy día, con el advenimiento de las técnicas moleculares, el diagnóstico se convirtió en un procedimiento mucho más sensible, específico y rápido. En adición a ésto, dichas técnicas permiten realizar un diagnóstico de género y de especie a partir de cualquier aislado (proveniente de muestras biológicas y no biológicas) extendiendo aún más el conocimiento del agente causal, su incidencia y vías de transmisión. Es por esto que nos propusimos caracterizar molecularmente el gen de la subunidad ribosomal 18S de algunos de los aislados de Acanthamoeba spp. que se han mantenido en el LAEBIOUCV desde que fueron diagnosticados en pacientes de con distintas afecciones y de diferentes muestras.
materiales y métodos
Aislados de estudio
Se utilizaron 14 aislados provenientes de muestras biológicas (heces, raspados corneales, lentes de contacto y aspirado cerebral) y previamente identificados según su morfología como Acanthamoeba spp., mantenidos en cultivo en medio Pagé modificado desde su diagnóstico hasta la fecha. La nomenclatura empleada para su identificación fue acordada por los miembros de este Laboratorio, empleando la letra “A” precediendo a un numero asignado. Los aislados analizados fueron: A1, A2, A10, A13, A14, A15, A16, A17, A19, A21, A22, A29, A30, A31.
Clasificación Morfológica
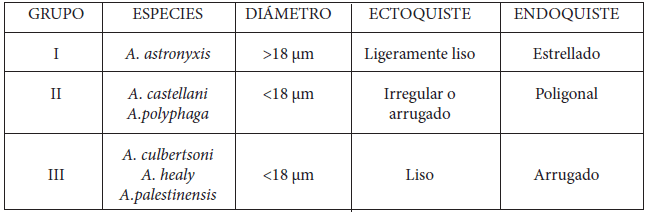
Se realizó siguiendo los criterios propuestos por Pussard y Pons, 1977 (6) quienes registraron la existencia de tres grupos, sobre bases morfológicas referentes al tamaño y morfología de los quistes. Las especies fueron distribuidas en tres grupos que se presentan en la Tabla I.
TABLA I
Agrupación del género Acanthamoeba spp. según la morfología de los quistes por microscopía óptica
Clasificación Molecular PCR-RFLP
Se realizó la amplificación por PCR de una región del gen que codifica la Subunidad Ribosomal menor 18S (ARNr SU 18S, empleando los iniciadores (primers) descritos previamente por Kong y Chung (7), esperando obtener un amplificado entre 910-930 pb.
Acantha-for
(5’TTTGAATTCGCTCCAATAGCGTATATTAA 3’)
Acantha-rev
(5’TTTGAATTCAGAAAGAGCTATCAATCTGT 3’)
Posteriormente se realizó la digestión de estos productos con las enzimas de restricción (RFLP) HinfI, HhaI y HaeIII tomando como referencia los patrones de digestión publicados por Kong y Chung (7).
Los controles utilizados en esta investigación fueron dos aislados (C1=A27 y C2=A9) previamente identificados por Conde y Machado, 20108, como A. castellani y A. polyphaga, respectivamente.
Análisis Estadístico
El análisis estadístico que se empleó para esta investigación fue de tipo no paramétrico debido al tamaño de la muestra implicada. Dependiendo de las comparaciones a realizar se empleó la prueba de Mann-Whitney U o la Prueba exacta de Fisher. Se consideró como estadísticamente significativo un valor de p≤0,05.
Resultados
Caracterización morfológica de los quistes
El 100% de los aislados evaluados morfométricamente, fueron excluidos del Grupo I según los criterios propuestos por Pussard y Pons (6), por presentar diámetros inferiores a 18µm. El 50% de los aislados fue incluido en el Grupo II (A2, A13, A14, A15, A29, A30 y A31) y el 50% restante fue incluido en el Grupo III (A1, A10, A16, A19, A21 y A22). El diámetro de los quistes de los aislados pertenecientes al Grupo II fue en promedio 11,31 µm (9,0-14,2 µm), siendo estos significativamente más grandes (p=0,026) que los quistes de los aislados del Grupo III, los cuales presentaron un promedio de 8,4µm (6,9-10,1 µm).
También se tomó en cuenta el número de puntas del endoquiste y la cantidad de éstas que contactan el ectoquiste. Los aislados del Grupo II presentaron mayor número de puntas en el endoquiste, en promedio 2,4 (1,6-3,9 puntas) y mayor número de puntas que contactan con el ectoquiste en promedio 2,0 (0,6-3,6 puntas). Respecto al Grupo III, presentaron escasas puntas en el endoquiste en promedio 0,4 (0,1-0,6 puntas) y ninguna contactaba con el ectoquiste. Se observó una diferencia estadísticamente significativa entre la morfología de los quistes de ambos grupos para las variables mencionadas (p=0,017 y p=0,004, respectivamente).
Caracterización morfológica de los trofozoítos
Para la caracterización morfológica de los trofozoítos de Acanthamoeba spp. se tomó en cuenta criterios morfológicos tales como el número de vacuolas contráctiles, diámetro de las vacuolas contráctiles, longitud mayor y menor de los trofozoítos, número de pseudópodos emitidos y número de acantopodios. Para el Grupo II, los criterios de número y diámetro de las vacuolas contráctiles, longitud mayor del trofozoíto y número de acantopodios, fueron significativamente mayores respecto al Grupo III ( p= 0,022; 0,001; 0,002; 0,001, respectivamente).
Clasificación molecular PCR
Dentro de los resultados obtenidos mediante esta técnica se pudo verificar la existencia de dos grupos de acuerdo al tamaño del producto de PCR obtenido: los aislados que amplificaron a 700 pb, (Grupo III y A22) y los que amplificaron a 900 pb, (GrupoII).
Al relacionar la morfología de los quistes (según Pussard y Pons (6)) con el tamaño de los productos de PCR obtenidos, se observó que existe concordancia entre la presencia de quistes lisos (Grupo III) con un producto de 700 pb y la presencia de quistes festoneados o plegados (Grupo II) con la amplificación de un producto de 900 pb (p=0,005).
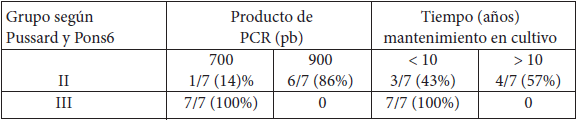
En cuanto a la morfología de los quistes y el tiempo de mantenimiento en cultivo de los aislados de Acanthamoeba spp. no se observó relación entre estas variables (p=0,192). Cuando se evaluó la relación entre el tiempo de mantenimiento en cultivo y el tamaño del producto de PCR obtenido de los aislados de Acanthamoeba spp., se observó una tendencia (p= 0,055) a que los aislados que tengan un periodo ≥ 10 años de mantenimiento en cultivo, presentarán productos de PCR de 700 pb, mientras que aquellos aislados que tengan un tiempo de mantenimiento <10 años, presentarán un producto de PCR de 900 pb utilizando los primers publicados por Kong y Chung (7) (TABLA II).
TABLA II
Relacion entre los resultados moleculares (PCR), el Grupo morfológico y el tiempo de mantenimiento en cultivo de los aislados de Acanthamoeba spp.
RFLP
Después de la digestión de los productos de PCR con las enzimas de restricción HinfI, HhaI y HaeIII, se pudo identificar el 71% de los aislados pertenecientes al Grupo II comparando los resultados obtenidos con los patrones de digestión publicados por Kong y Chung (7) (Figura 1). Mientras que los aislados pertenecientes al Grupo III no pudieron ser identificados, por no presentar relación con los patrones de digestión publicados por Kong y Chung (7). En la TABLA III se puede observar los aislados, producto de PCR e identificación a nivel de especie del Grupo II.
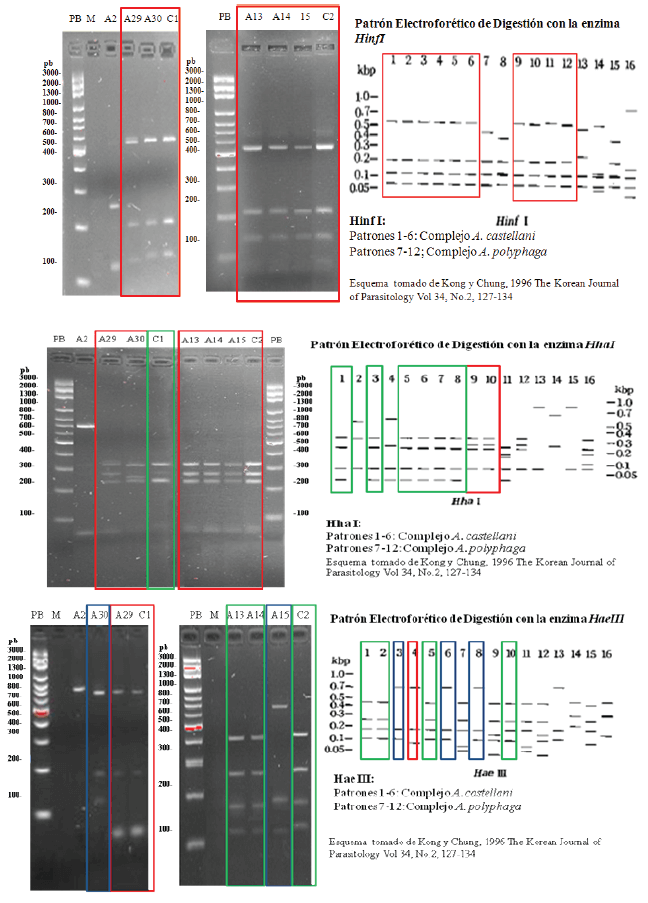
Figura 1: Electroforesis de los productos de digestión de Acanthamoeba spp. de Grupo II según Pussard y Pons (6) con HinfI, HhaI y HaeIII y Esquema de patrón electroforético de digestión de Acanthamoeba spp. con HaeIII realizado por Kong y Chung 1996 (8)
Electroforesis en gel de agarosa al 2,5% teñido con SYBR safe.
PB: marcador de 100 pares de bases. M: mezcla: pb: pares de bases producto RFLP. CI: A. castellani, C2: A. polyphaga. Conde y Machado, 2012 10
TABLA III
Resultados moleculares de aislados de Acantnamoeba spp. mantenidos en el LAEBIOUCV
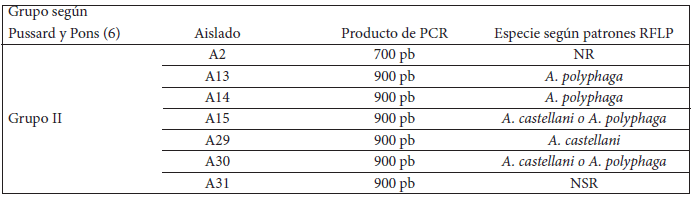
NR: No hubo relación; pb: pares de bases; NSR: No se pudo relacionar
Discusión
Los miembros del género Acanthamoeba son individuos ubicuos, por lo que no debe sorprender el hecho de que estudios han puesto en evidencia, la presencia de anticuerpos específicos contra Acanthamoeba spp. en más del 50% de la población estudiada (9,10), demostrando la continua exposición y frecuencia del contacto del humano con estos protozoarios.
En las últimas décadas, con el aumento del número de usuarios de lentes de contacto, se ha incrementado la prevalencia de la QA en pacientes inmunocompetentes (11), sin embargo hay entidades patológicas de menor prevalencia que la QA pero de alto índice de mortalidad debido al rápido progreso y gravedad del proceso infeccioso tal como es el caso de la EGA y la DA.
Para esta investigación, se analizaron 14 aislados previamente identificados como del género Acanthamoeba spp., a los cuales se les realizó un análisis morfológico y molecular con la finalidad de establecer la especie de cada uno de ellos.
Al analizar los 14 aislados de Acanthamoeba, se determinó que ninguno pertenecía al Grupo I según Pussard y Pons(6), por no presentar quistes de diámetro mayor a 18µm. Los aislados A2, A13, A14, A15, A29, A30 y A31 se incluyeron en el Grupo II según Pussard y Pons6 por presentar quistes con ectoquistes irregulares, pudiendo inferir que las posibles especies, según lo publicado (6) son A. castellani o A. polyphaga. Mientras que los aislados A1, A10, A16, A17, A19, A21 y A22, se incluyeron en el Grupo III según Pussard y Pons (6) por presentar ectoquistes lisos, pudiendo inferir que las posibles especies, según lo publicado (6) son A. culbertsoni, A. healy o A. palestinensis. Entre estos dos Grupos, se observó que hay diferencia estadísticamente significativa en cuanto al tamaño y la morfología de los quistes, tal como se esperaba, debido a que según la metodología de diagnóstico morfológico, los quistes son la forma evolutiva empleada para la identificación de género. Al analizar los trofozoítos de todos los aislados, se observó que los pertenecientes al Grupo II, fueron más alargados y con un número mayor de acantopodios emitidos que los del Grupo III cuyos trofozoítos presentaron menor longitud y pseudópodos de tipo lobopodios en lugar de acantopodios. Se observó diferencia estadísticamente significativa entre el Grupo II y el Grupo III en cuanto a la morfología de los trofozoítos, ésto se pudiera explicar debido a que durante su fase vegetativa los aislados incluidos dentro del Grupo III no presentaron morfología tan típica del género Acanthamoeba spp. Pudiéndose constatar que se trata de una tendencia al mantenerlos durante periodos mayores a 10 años en medio de cultivo.
De acuerdo con el diseño de la investigación, en cuanto a los primers seleccionados y las publicaciones tomadas como referencia, los miembros del género Acanthamoeba spp. deben mostrar productos de PCR entre 910 y 930 pb7, sin embargo, los resultados obtenidos para los aislados pertenecientes al Grupo III, presentaron productos de menor tamaño en pb que lo esperado, posiblemente debido a una alteración de la región altamente conservada que pudo haber modificado las características fenotípicas de estos aislados. Estadísticamente, se pudo observar una tendencia a presentar productos de PCR de 700 pb en aislados mantenidos en cultivo durante periodos mayores a 10 años, excepto el aislado A2, el cual se clasificó en el grupo II, pero amplificó un producto de 700 pb y se ha mantenido 21 años en cultivo.
Una de las hipótesis que podría explicar la obtención de productos de PCR de 700 pb en los aislados de Acanthamoeba estudiados, es el proceso de transposición. Una de las consecuencias de este proceso, es el denominado polimorfismo en regiones codificantes con alteración del fenotipo, pudiendo afectar su funcionalidad(12). Aunque el gen de la SU ARNr 18S, es una estructura altamente conservada que sufre solo pequeños cambios estructurales que permiten la identificación de especies del género Acanthamoeba spp.13,14,15, numerosos estudios han demostrado que la SU ARNr 18S posee intrones (ADN no codificante) lo que puede alterar la estructura genética, modificar el tamaño de los amplificados por PCR y por tanto afectar la interpretación del mismo (7,13). Esto representa una limitación importante al momento de comparar con los patrones de RFLP de referencia para la identificación de las especies.
La identificación de las especies mediante RFLP se logró en un 36% del total de los aislados seleccionados mantenidos en el LAEBIOUCV. Las especies identificadas fueron A. castellani para A29, A. polyphaga para A13 y A14, y se obtuvo patrones solapados, para A15 y A30 impidiendo su identificación definitiva, siendo compatible con los patrones de A. castellani y A. polyphaga. Por otra parte, estos resultados se corresponden muy bien con las especies agrupadas por Pussard y Pons (6) que indican que las posibles especies para el género Acanthamoeba que exhiban características morfológicas compatibles con miembros del Grupo II pueden ser A. castellani y/o A. polyphaga.
El 57% de los aislados seleccionados para este proyecto, no presentó productos de digestión similares a los patrones de digestión con cada una de las enzimas publicados por Kong y Chung, 1996 (7). Sin embargo, la comparación entre los productos de digestión obtenidos para los aislados que obtuvieron productos de PCR de 700 pb, permitió observar que el 36% obtuvo patrones de digestión similares entre sí con las enzimas de restricción HinfI y HaeIII. Así mismo, se observo una similitud del 50 – 75% entre estos aislados y 3 de los aislados estudiados por Conde y Machado 2010 (8), por lo que se puede inferir que se trata de las mismas especies. Cabe destacar, que los aislados utilizados en la investigación realizada por Conde y Machado, 2010 (8), pertenecían al Grupo III según Pussard y Pons (6), presentaban productos de 700 pb, y tenían un tiempo ≥ a 10 años de mantenimiento en medio de cultivo.
En el caso puntual de A31, a pesar de que obtuvimos un producto de PCR de 900 pb, el rendimiento de RFLP no logró ajustarse tras varios intentos, habiendo esto impedido la posibilidad de identificación.
No se logró relacionar la procedencia del material biológico y la especie identificada, debido a que el porcentaje de aislados identificados es muy bajo (36%). Sin embargo, las especies identificadas tienen congruencia con lo descrito en la literatura ya que se trata de las especies más comunes y más patógenas (13).
Conclusiones y recomendaciones
Se clasificó según los criterios de Pussard y Pons, 1977, a los aislados A2, A13, A14, A15, A29, A30 y A31 como pertenecientes al Grupo II, y a los aislados A1, A10, A16, A17, A19, A21 y A22 como pertenecientes al Grupo III.
La amplificación del ADN mediante PCR de los aislados se correlaciona con la agrupación morfológica: los productos de amplificación para el grupo II fueron de 900 pb, (excepto A2) y para el grupo III fueron de 700 pb.
Se observó una tendencia que relaciona el tiempo de mantenimiento de los aislados en cultivo con los productos de PCR de 700 pb.
Se identificó sólo el 36% de los aislados seleccionados mediante RFLP. Se pudo determinar que la especie de los aislados A13 y A14 es Acanthamoeba polyphaga. La especie de A29 corresponde a A. castellani. Se presume que la especie de A15 y A30 es A. castellani o A. polyphaga.
Los aislados A16, A17 y A10 pertenecientes al Grupo III y con 700 pb, presentaron polimorfismos similares con las enzimas HinfI y HaeIII por lo pudiera ser sugestivo de que se trate de las mismas especies de Acanthamoeba spp.
Considerar la criopreservación para evitar la influencia del tiempo de mantenimiento sobre el cambio en la morfología.
Realizar la identificación de los aislados que amplificaron productos de PCR de 700 pb mediante el empleo de otros primers, otras enzimas y/o secuenciación de los aislados.
Realizar pruebas biológicas de patogenicidad de los aislados que amplificaron en 700 pb.
Referencias Bibliográficas
- Oddó, B.D. Infecciones por amebas de vida libre. Comentarios históricos, taxonomía y nomenclatura, protozoología y cuadros anátomo-clínicos. Rev Chil Infect 2006; 23: 200-214.
- Mathers, W.D. Acanthamoeba A difficult to evaluate and treat. Cornea 2004; 3:325.
- Pérez de Galindo, M.V. Actualización en el conocimiento de Amibas de Vida Libre potencialmente patógenas. Aportes a su estudio en Venezuela, particularmente de los géneros Acanthamoeba y Naegleria. [Trabajo presentado ante la Facultad de Medicina, UCV, para optar al ascenso en el escalafón universitario a Profesor Asociado]. Universidad Central de Venezuela, Facultad de Medicina, Escuela de Bioanálisis; 2005.
- Bermúdez, A., Pérez de Galindo, M.V., Martínez, Y., Pérez de Suarez, E., Nieto, T. Identificación de Acanthamoeba spp. en 3 pacientes con conjuntivitis. Ann Inst Barraquer (Barc) 1998; 27:157-163.
- Pereira, L., Domínguez, M., Ortiz, N., Torres, L., Placencio, A., Bermúdez, A.Clorhexidina y Poliheximetil Biguanida Tópica para el manejo de queratitis por Acanthamoeba. Servicio de Oftalmología del Hospital Universitario de Caracas. Rev Oftalmol Venez 2003; 59:79-84.
- Pussard, M. & Pons, R. Morphologie de la paroi kystique et taxonomie du genre Acanthamoeba. Protistologica 1977; 13: 557-598.
- Kong H.H., & Chung D.I. PCR and RFLP variation of conserved region of small subunit ribosomal DNA among Acanthamoeba isolates assigned to either A. castellanii or A. polyphaga. Korean J Parasitol 1996; 34: 127-134.
- Conde, C. y Machado, R. Caracterización molecular por PCR-RFLP de la subunidad ribosomal 18S, de aislados de Acanthamoeba spp. mantenidos en el laboratorio de amibiaisis de la Escuela de Bioanálisis UCV provenientes de muestras oculares de pacientes. [Trabajo presentado para optar por el título de licenciado en Bioanálisis]. Mayo 2010.
- Cursons, R.T.M., Brown, T.J., Keys, E.A., Moriarty, K.M. & Till, D. Immunity to pathogenic free-living amoeba: role of humoral antibody. Infect Immun 1980; 29: 401-407.
- Cerva, L. Acanthamoeba culbertsoni and Naegleria fowleri. Occurrence of antibodies in man. J Hyg Epidemiol Microbiol Immunol 1989; 33: 99-103.
- Stehr-Green, J.K., Bailey, T.M. & Visvesvara, G.S. The epidemiology of Acanthamoeba keratitis in the United States. Am J Ophthalmol 1989; 107: 331-336.
- Cabrera, J.L., Herraes, A. Biología Molecular e Ingeniería Genética. Conceptos, técnicas y aplicaciones en ciencias de la Salud. Elsevier, España 2008; 1: 367-369.
- Kong H.H., Chung D.I. Mitochondrial DNA Restriction Fragment Length Polymorphism (RFLP) and 18S Small-Subunit Ribosomal DNA PCR-RFLP Analyses of Acanthamoeba Isolated from Contact Lens Storage Cases of Residents in Southwestern Korea. J Clin Microbiol 2002; 40: 1119-1206.
- Stothard, D.R., Schroeder-Diedrich, J.M., Awwad, M.H., Gast, R.J., Ledee, D.R., Rodriguez-Zaragosa, S., Dean, C.L., Fuerst, P.A.& Byers, T.J.The evolutionary history of the genus Acanthamoeba and the identification of eight new 18S rRNA gene sequence types. J Eukaryot Microbiol l998; 45: 45–54.
- Kong H.H, & Chung D.I. A riboprinting scheme for identification of unknown Acanthamoeba isolates at species level. J Parasitol 2002; 40: 25-31.