Introducción
El síndrome de inmunodeficiencia adquirida (SIDA) constituye la primera pandemia de la segunda mitad del siglo XX(1). En 1981, se diagnosticaron los primeros casos de SIDA en jóvenes varones homosexuales. En 1983, Francoise Barré-Sinoussi y colaboradores del Instituto Pasteur de París y en 1984, un grupo encabezado por Robert C. Gallo, del Instituto Nacional del Cáncer de los Estados Unidos, lograron independientemente identificar el agente causal de la enfermedad, un retrovirus. Los investigadores franceses lo de-nominaron LAV (siglas en inglés, virus asociado a la linfoadenopatía) y el grupo norteame-ricano lo denominó HTLV-III (por virus linfotrópico T humano tipo III), relacionado con dos retrovirus linfotrópicos T humanos HTLV-I y HTLV-II, desencadenantes del proceso que causan la leucemia de linfocitos T(1,2). Más tarde, en 1986 un comité internacional de taxonomía viral sugirió la denominación de virus de la inmunodeficiencia humana (VIH), para designar a LAV y HTLV-III, dado que ambos virus correspondían al mismo agente(1). El VIH ataca diversos tipos de células del organismo humano infectado con predilección por los linfocitos T CD4+, provocando el descalabro de su sistema inmunitario(3). La consecuente disminución de esta subpoblación linfocitaria confiere al paciente vulnerabilidad ante cualquier infección “oportunista” causada por agentes que en circunstancias normales no dañarían a una persona sana(4).
Se estima que aproximadamente 52,5 millones de personas en el mundo entero son portadoras del VIH y cerca de 22 millones de pacientes han muerto a causa del SIDA(3). Más de las dos terceras partes de la población mundial infectada vive en el Africa Sub-Sahariana (3,5).
En América Latina, se estima que aproximadamente 1,5 millones de personas (adultos y niños) se encuentran infectadas por el VIH (6). En general, estas cifras revelan que a partir de su primera identificación, hace más de veinte años, la incidencia de VIH/SIDA se ha elevado vertiginosamente en la población mundial, excediendo las expectativas de su impacto en cuanto a número de pacientes infectados y severidad de la enfermedad.
A continuación se tratarán aspectos fundamentales sobre la biología molecular del VIH con especial énfasis en las características estructurales del virus, su modo o estrategia de replicación y el influjo de su variabilidad genética en el control de la infección viral.
Características estructurales y organización genómica del VIH
El VIH pertenece a una familia de virus ARN designada Retroviridae(1). El virión infeccioso del VIH se observa al microscopio electrónico como una partícula esférica de aproximadamente 80 a 100 nm de diámetro. En la estructura del virión se distinguen tres capas concéntricas: una envoltura lipoproteica externa constituida por las dos glicoproteínas de la envoltura viral: la gp120 o glicoproteína de superficie y la gp41, unida a la anterior y embebida en la membrana lipídica del virus; una nucleocápside formada por una cubierta intermedia o matriz compuesta por la proteína p17 en estructura icosahédrica, localizada a muy poca distancia de la envoltura externa (a diferencia del HTLV-I y HTLV-II) y una cápside interna, constituida por la proteína p24 en disposición helicoidal y la proteína P9 (proteína de la nucleocápside), la cual encierra al genoma viral y a las enzimas transcriptasa reversa, integrasa y proteasa, formando un nucleoide central cuya estructura semeja a un cono truncado (Figura 1) (7).
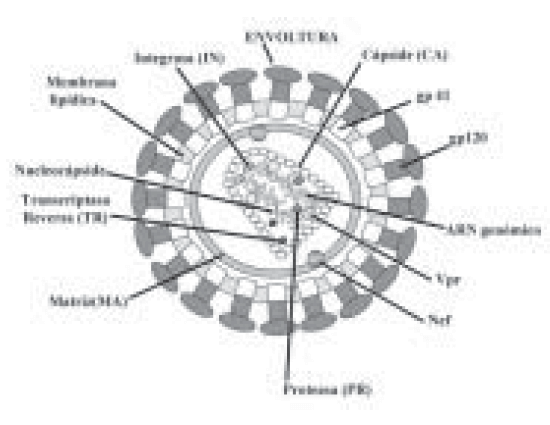
Figura 1. Estructura del Virus de Inmunodeficiencia Humano.
El genoma viral consiste en dos hebras de ARN de 9,8 kb de longitud y polaridad positiva, el cual contiene al menos 9 genes diferentes que codifican proteínas estructurales, reguladoras y accesorias (Figura 2)(7). Los genes virales estructurales son: el gen gag, el cual codifica la proteína precursora denominada p55 de cuyo clivaje producido por la proteasa viral se originan las proteínas estructurales de la cápside o CA (p24), matriz o MA (p17), nucleocápside o NC (p9) y la proteína p6, la cual media la incorporación de la proteína accesoria Vpr en el ensamblaje viral y es requerida para la gemación de viriones a partir de la célula infectada(8), los genes gag/pol en conjunto codifican una poliproteína precursora de 160 Kd (p160), la cual es clivada durante la maduración del virión para dar origen a las enzimas: proteasa o PR (p10), transcriptasa reversa o TR (p50), Rnasa H (p15) e integrasa o IN (p31). Este clivaje no se produce de manera eficiente, ya que el 50% de la proteína RT permanece unida a Rnasa H, formando un polipéptido simple (p65)(9); el gen env codifica a la poliproteína gp160, la cual es luego clivada por una proteasa de la célula hospedera en las glicoproteínas de envoltura: gp120 o SU (superficie) y gp41 o TM (transmembrana)(7). Así mismo, existen los siguientes genes reguladores en el genoma del VIH: el gen tat que codifica una proteína transactivadora transcripcional, denominada Tat (p14)(10) y el gen rev (regulador de la expresión de las proteínas del virión) codifica la proteína Rev (27 Kd) de unión de secuencia específica al ARN, la cual actúa como procesadora del ARNm y su transporte selectivo en el citoplasma (11). Las proteínas Tat y Rev son esenciales para la replicación del virus. En adición, se han descrito genes codificantes de proteínas accesorias. Tal es el caso de los genes: nef que codifica la proteína Nef (p27) un factor de regulación negativa que actúa post-traduccionalmente, disminuyendo la expresión en la superficie de la célula infectada de moléculas CD4 (receptor primario del VIH) y de moléculas clase I del Complejo Principal de Histocompatibilidad (CMH)(12,13); vif codifica la proteína Vif (factor de infectividad del virión, p23) la cual solventa los efectos inhibitorios de factores celulares del organismo infectado, produciendo la formación de complejos de TR más estables (14); vpu codifica la proteína Vpu (proteína viral U o p16), la cual promueve la degradación de las moléculas CD4 acomplejadas con Env en el retículo endoplasmático celular e incrementa la liberación del virión(15); vpr codifica a la proteína Vpr (proteína R viral o p15), la cual promueve el detenimiento del ciclo celular G2, facilitando además la infección por VIH en los macrófagos(16).
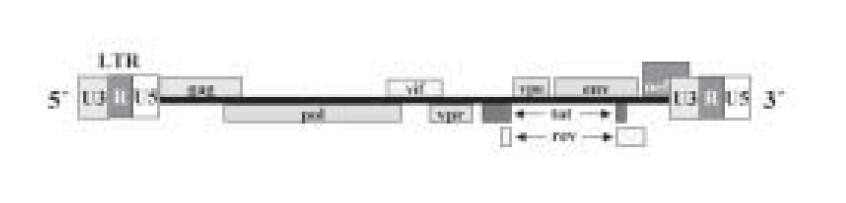
Figura 2. Organización del genoma proviral del Virus de Inmunodeficiencia Humano.
Ciclo infeccioso del VIH
El VIH infecta principalmente células del sistema inmunitario, tales como los linfocitos T CD4+, monocitos y macrófagos tisulares. Sin embargo, otras células que expresen en su superficie moléculas CD4 igualmente pueden ser infectadas(17). En adición, se han encontrado otros posibles receptores, lo cual sugiere que el número de células susceptibles sea especialmente elevado(18).
Adsorción y penetración
Las dos glicoproteínas de envoltura forman unidades triméricas funcionales cuyos monómeros están constituidos cada uno por dos subunidades, gp120 (proteína de superficie) y gp41 o proteína transmembrana (Figura 3). Cómo parte del complejo trimolecular, la glicoproteína gp120 interactúa con su receptor específico, la molécula CD4 presente en la membrana celular, induciendo cambios conformacionales en la glicoproteína gp41, lo cual permite la unión del virión a receptores de membrana acoplados a la proteína G de la célula, estabilizando el proceso de adhesión y facilitando la fusión virus-célula. Estos coreceptores del VIH consisten en al menos doce receptores de quimoquinas de los cuales se ha demostrado que CCR5 y CXCR4 son importantes coreceptores primarios en la entrada de diversas cepas del VIH tanto in vitro como in vivo(19,20).
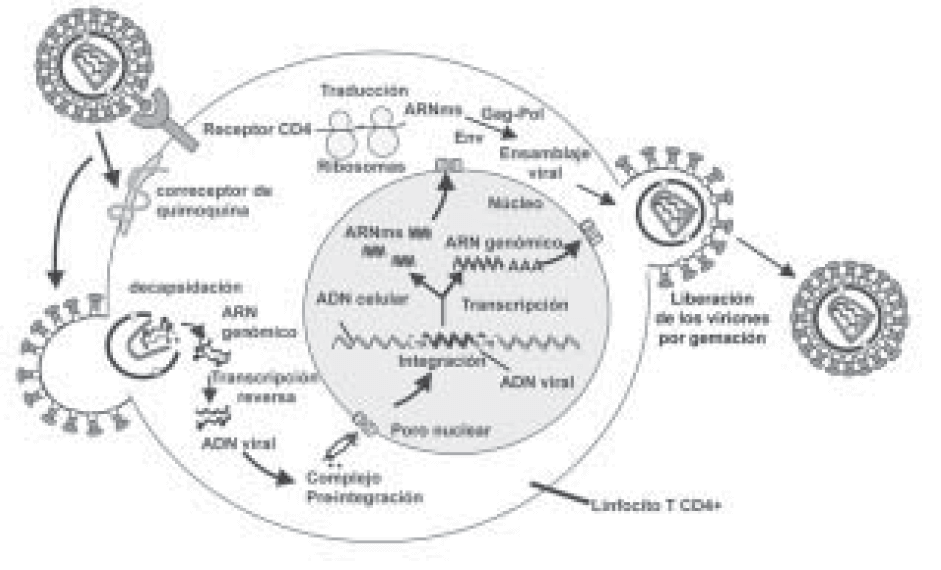
Figura 3. Ciclo infeccioso del VIH.
El cambio conformacional de la glicoproteína transmembrana gp41 y su disociación de gp120 en la unidad trimérica permite la proyección de tres dominios de fusión que se insertan en la bicapa lipídica de la célula hospedera, lo cual promueve el proceso de fusión, permitiendo la liberación de la cápside viral en el interior de la célula. Así mismo, los viriones del VIH pueden entrar a las células por endocitosis. Por lo general, no se produce la infección productiva por esta vía, lo cual permite suponer la inactivación de estos viriones dentro de los endosomas(21).
Transcripción y replicación viral
En el citoplasma de la célula se produce la decapsidación del virión, liberando el ARN genómico viral, el ARN de transferencia lisina, el cual actúa como un cebador para la transcripción reversa, la transcriptasa reversa, la integrasa, las proteínas de la matriz y la nucleocápside, la Vpr y diversas proteínas del hospedero (Figura 3). Posteriormente, se produce la transcripción reversa del ARN genómico a ADN viral por acción de la transcriptasa reversa y se forma el complejo de preintegración del VIH (CPI), constituido por el ADN viral de doble cadena, proteínas de la matriz, Vpr, las enzimas transcriptasa reversa e integrasa y el grupo de proteínas celulares de unión al ADN de elevada movilidad (en inglés, HMGI) (22). A diferencia de la mayoría de los retrovirus animales, el VIH puede infectar células que no se encuentran en estado de división, tales como macrófagos diferenciados, lo cual requiere de la capacidad de cruzar la membrana nuclear intacta(23).
El CPI es transportado al interior del núcleo a través de un proceso mediado probablemente por las proteínas de la matriz, Vpr y/o integrasa(22 24,25).
El ADN viral se incorpora al genoma de la célula infectada para formar un provirus integrado mediante la acción de la integrasa viral. Las proteínas celulares HMGI(Y) y BAF (“barrier to autointegration”, en inglés) son requeridas para la integración eficiente, aunque no se conocen sus funciones precisas(26). La integración puede permitir formas transcripcionalmente activas o latentes de la infección(27).
La transcripción del genoma viral resulta en más de una docena de diferentes transcriptos específicos. El proceso de transcripción es mediado por un promotor simple en la secuencia repetida terminal (LTR, en inglés) situada hacia el extremo 5’. La expresión del LTR 5’ genera un ARN primario de 9 kb, el cual puede ser procesado para originar más de treinta ARNms alternativos o bien puede permanecer sin procesar y ser empaquetado dentro de los viriones como ARN genómico. Algunos transcriptos procesados en forma múltiple son transportados rápidamente al citoplasma en ausencia de secuencias de ARN inhibitorias (IRS, en inglés). Estos ARNms codifican las proteínas Nef, Tat y Rev. Otros transcriptos procesados de manera simple o no procesados permanecen en el núcleo y son relativamente estables. Estos transcriptos virales codifican las proteínas estructurales, enzimáticas y accesorias y representan los ARNs genómicos virales necesarios para el ensamblaje de los viriones infecciosos(28).
La regulación de la expresión genética del VIH es efectuada por una combinación de factores virales y celulares, siendo regulada a nivel transcripcional y posttranscripcional. Los genes del VIH pueden ser divididos en genes tempranos y genes tardíos. Los genes tempranos: tat, rev y nef son expresados de una manera independiente de la proteína Rev. Los ARNms codificantes de los genes tardíos: gag, pol, env, vpr, vpu y vif requieren a Rev para ser localizados en el citoplasma y expresados(29).